

WYBRANE ZJAWISKA BIOLOGII KWITNIENIA RÓŻNYCH GATUNKÓW I MIESZAŃCÓW LIPY (Tilia L.) ORAZ OBLOTU ICH PRZEZ PSZCZOŁY
tekst: Kazimiera Szklanowska, Dariusz Teper, Bolesław Jabłoński, Zbigniew Kołtowski
Pszczelnicze Zeszyty Naukowe, Rok XLIII, 1999 — Kazimiera Szklanowska, Dariusz Teper, Bolesław Jabłoński, Zbigniew Kołtowski
strona 263PSZCZELNICZE ZESZYTY NAUKOWE Rok XLIII 1999
Kazimiera Szklanowska, Dariusz Teper, Bolesław Jabłoński*, Zbigniew Kołtowski*
Akademia Rolnicza, Katedra Botaniki, ul. Akademicka 15, 20-950 Lublin *Instytut Sadownictwa i Kwiaciarstwa, Oddział Pszczelnictwa, ul. Kazimierska 2, 24-100 Puławy
Streszczenie
W latach 1995-1998 w Puławach badano przebieg i obfitość kwitnienia, (w zależności od warunków pogody) 12 gatunków i mieszańców drzew lipy w wieku około 30 lat. W kolejności zakwitania były to: Tilia platyphyllos Scop., T. x moltkei Spaeth., T. hybrida I Lip., T. x europea L., T. cordata Mill., T. hybrida III Lip., T. x euchlora K. Koch., T. mongolica Maxim., T. x zamoyskiana Wróbl., T. tomentosa Moench., T. japonica I i II Simonk., T. insularis Nakai.
Stwierdzono, że trwające około 2 tygodni okresy kwitnienia badanych taksonów silnie się ze sobą zazębiają i dostarczają owadom pszczołowatym nieprzerwanego pożytku nektarowego i pyłkowego od około połowy czerwca do końca lipca. Stosunkowo równomierną z roku na rok obfitością kwitnienia charakteryzowała się lipa szerokolistna, Moltkego, holenderska i srebrzysta, a pozostałe kwitły przemiennie, co drugi rok obficie. Średnia w ciągu 4 lat liczba kwiatów na drzewie lipy szerokolistnej, holenderskiej i srebrzystej mieściła się w granicach 200-300 tys., drobnolistnej, krymskiej, Moltkego, mongolskiej i Lipińskiego I od 500 do 700 tys., a wonnej, japońskiej, Zamoyskiego i Lipińskiego III około 1 miliona i więcej.
Słowa kluczowe: lipa, biologia kwitnienia, obfitość kwitnienia, przemienność kwitnienia.
WPROWADZENIE
Rodzaj lipa obejmuje około 30 gatunków rosnących w strefie umiarkowanej półkuli północnej. Są to drzewa osiągające 20-30 (40) m wysokości i dożywające 300 (500) lat. W Polsce w stanie dzikim występują dwa gatunki lipy: drobnolistna (T. cordata Mill.) i szerokolistna (T. platyphyllos Scop.). Pierwsza rośnie na obszarze całego kraju (w górach do wysokości 600-800 npm). Druga występuje rzadko w południowej części niżu, na Wyżynie Lubelskiej i Małopolskiej, w Górach Świętokrzyskich, na Dolnym Śląsku oraz Podkarpaciu i w niższych położeniach górskich (J a r o s 1952,
strona 264Ł u k a s z e w i c z 1997). Oba gatunki są wysadzane w parkach, przy drogach i na osiedlach. Oprócz rodzimych lip w nasadzeniach spotyka się gatunki pochodzenia obcego, jak lipa srebrzysta (T. tomentosa Moench.), amerykańska (T. americana L.) oraz mieszańce, jak lipa warszawska (T. x varsoviensis R. Kob.), krymska (T. x euchlora K. Koch), holenderska (T. x europea L.) oraz bardzo rzadko inne.
Wszystkie lipy dostarczają owadom pszczołowatym nektaru, pyłku i spadzi oraz są naszymi najważniejszymi drzewami miododajnymi. Wykazują jednak dużą zmienność pod względem systematycznym i obfitości kwitnienia, co z pszczelarskiego punktu widzenia jest bardzo ważne i wymaga bliższego poznania.
Celem niniejszej pracy było zbadanie przebiegu wybranych zjawisk biologii kwitnienia kilkunastu gatunków i mieszańców lipy, w zależności od panujących w sezonie wegetacyjnym warunków pogody.
MATERIAŁ I METODA
Badania przeprowadzono w latach 1995-1998 w Puławach, na około 30-letnich drzewach 12 następujących taksonów: lipa drobnolistna (Tilia cordata Mill., syn. T. parvifolia Ehrh.), szerokolistna (T. platyphyllos Scop., syn. T. grandifolia Ehrh.), srebrzysta (T. tomentosa Moench., syn. T. argentea DC.), mongolska (T. mongolica Maxim.), japońska (T. japonica Simonk., syn. T. cordata var. japonica Miq.), wonna (T. insularis Nakai), holenderska (T. x europea L., syn. T. intermedia DC.), Moltkego (T. x moltkei Spaeth.., syn. T. spectabilis Dipp.), krymska (T. x euchlora K. Koch.), Zamoyskiego (T. x zamoyskiana Wróbl.) oraz Lipińskiego I (T. hybrida I Lip. = T. platyphyllos? x T. cordata?) i Lipińskiego III (T. hybrida III Lip. = T. americana? x T. sp.). W sumie badano 26 drzew, w tym 10 egzemplarzy lipy drobnolistnej, 4 szerokolistnej, 2 mongolskiej, 2 japońskiej i po jednym z pozostałych. Z powodu przemienności kwitnienia niektórych taksonów nie wszystkie one mogły być szczegółowo badane każdego roku. Drzewa rosły na średniowilgotnej, lekkiej glebie bielicowej kl. IV.
Określano porę i długość kwitnienia poszczególnych taksonów, dzienną i sezonową dynamikę rozkwitania ich kwiatów oraz ustalano liczbę kwiatów na drzewach. Obserwowano też intensywność oblotu lip przez pszczoły w ciągu dnia.
Za początek kwitnienia przyjmowano datę, kiedy szacunkowo w kilku procentach kwiatostanów rozwinęły się już pierwsze kwiaty, a za koniec kwitnienia – kiedy kończyły rozkwitanie ostatnie pąki.
strona 265W celu określenia tzw. sezonowej dynamiki rozkwitania kwiatów wyznaczano na każdym drzewie doświadczalnym, tuż przed rozpoczęciem kwitnienia, po dwie gałęzie (jedną od strony południowej, drugą od strony północnej), które miały po 500-1500 kwiatów. Następnie codziennie w godzinach 19-21 liczono na każdej gałęzi wszystkie rozkwitłe w ciągu doby kwiaty, zaznaczając je początkowo przez usuwanie płatków, a następnie przez obrywanie ich całych. (Wcześniej ustalono, że obrywanie kwiatów nie ma większego wpływu na rozkwitanie pozostałych pąków na gałęziach doświadczalnych).
Dla ustalenia dobowej dynamiki rozkwitania kwiatów, w ciągu 3-4 dni pogodnych okresu pełni kwitnienia liczono na wytypowanych gałęziach nowo rozkwitłe kwiaty co godzinę, bez przerwy za dnia i w nocy.
Liczbę kwiatów na drzewach określano metodą opisaną przez Z. D e m i a n o w i c z a i in. (1960). Polega ona na wybraniu na drzewie jakiejś przeciętnej wzorcowej gałęzi, na której liczy się (najlepiej zrywając) wszystkie kwiatostany. Następnie co najmniej 3 osoby (u nas było ich 4-5) liczy jednocześnie ile takich wzorcowych gałęzi znajduje się na danym drzewie i ustala wartość średnią. Uzyskaną daną tę mnoży się przez liczbę kwiatostanów ustaloną na gałęzi wzorcowej, co w rezultacie daje w przybliżeniu liczbę kwiatostanów na drzewie. Uzyskaną wartość mnoży się z kolei przez średnią liczbę kwiatów w kwiatostanie (określaną na podstawie 30-100 kwiatostanów – w tej pracy brano ich 60) i otrzymuje dość zbliżoną do rzeczywistej liczbę kwiatów na drzewie.
Chcąc określić tzw. dzienną dynamikę oblotu lip przez pszczoły, wyznaczano na kwitnących drzewach za pomocą sznurka część korony o powierzchni kilku m2 i w godzinnych odstępach czasu liczono jednocześnie pracujące tam zbieraczki.
Zarówno sezonową jak i dzienną dynamikę rozkwitania kwiatów oraz oblotu ich przez pszczoły przedstawiono w liczbach względnych, tzn. dane z poszczególnych dni czy godzin obserwacji wyrażono w procentach w stosunku do sumy uzyskanej w ciągu całego okresu kwitnienia, bądź doby czy dnia. W ten sposób poszczególne wyniki badań jest łatwiej ze sobą porównywać i rozpatrywać na tle zmieniających się warunków pogody.
Zdecydowano, że zebrany materiał doświadczalny nie wymaga opracowania statystycznego.
CHARAKTERYSTYKA POGODY
Kwitnienie drzew w danym roku zależy od przebiegu pogody także w drugiej połowie lata i jesieni roku poprzedniego, kiedy zawiązują się pąki kwiatowe. Dlatego dwa najważniejsze czynniki meteorologiczne (średnie miesięczne temperatury i sumy opadów) podano w okresach rocznych od
strona 266początku sierpnia do końca lipca (tab. 1). Jak widać, pogoda decydująca o kwitnieniu lip w roku 1995 charakteryzowała się wyższą od średniej wieloletniej temperaturą i większymi opadami. W drugim roku (1996) temperatura i opady były niższe od wzorcowych średnich z wielu lat, a tym bardziej niższe od danych roku poprzedniego. Trzeci rok (1997) był znowu bogaty w opady, a średnia temperatura sięgała normy. W roku czwartym (1998) opady były przeciętne, a temperatura wyższa od średniej wieloletniej. Miesiące zimowe (grudzień, styczeń, luty, marzec) ujemną średnią temperaturę miały tylko w latach 1995/96 i 1996/97. Były to zimy bardziej mroźne od przeciętnych, zaś zimy dwu pozostałych lat – cieplejsze. W ciągu omawianych 4 lat majowy przymrozek (do –1,6°C na wysokości 1,5 m nad gruntem) wystąpił tylko w roku 1995 na początku miesiąca.
T a b e l a 1 Niektóre dane meteorologiczne ze Stacji Meteorologicznej IUNG w Puławach Some meteorological data from IUNG Meteorological Station in Puławy
| Lata Years | Miesiące – Months: 8 | 9 | 10 | 11 | 12 | 1 | 2 | 3 | 4 | 5 | 6 | 7 | Średnie i sumy roczne Annual average or sum |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Średnia temperatura powietrza w °C – Average temperature of air in °C | |||||||||||||
| 1994/95 | 18,6 | 15,6 | 6,8 | 3,8 | 0,4 | -1,7 | 2,9 | 3,1 | 8,3 | 13,2 | 17,9 | 20,7 | 9,1 |
| 1995/96 | 18,4 | 13,5 | 10,0 | 0,2 | -4,9 | -5,7 | -5,6 | -1,8 | 8,4 | 16,0 | 17,4 | 17,0 | 6,9 |
| 1996/97 | 18,3 | 10,5 | 9,2 | 6,4 | -5,0 | -5,0 | -1,3 | -2,8 | 5,3 | 14,6 | 17,3 | 18,4 | 7,2 |
| 1997/98 | 18,7 | 12,9 | 5,9 | 3,2 | 0,7 | 0,2 | 3,2 | 1,5 | 10,5 | 14,7 | 18,3 | 18,4 | 9,0 |
| Średnia wieloletnia* Many years’ average | 17,3 | 13,2 | 7,9 | 2,7 | -1,4 | -3,5 | -2,5 | 1,5 | 7,7 | 13,4 | 16,7 | 18,3 | 7,6 |
| Sumy opadów w mm – Sum of precipitation in mm | |||||||||||||
| 1994/95 | 81 | 86 | 86 | 26 | 49 | 17 | 43 | 36 | 50 | 36 | 73 | 62 | 645 |
| 1995/96 | 69 | 94 | 7 | 21 | 15 | 9 | 29 | 21 | 12 | 108 | 40 | 69 | 494 |
| 1996/97 | 121 | 100 | 41 | 46 | 7 | 12 | 19 | 22 | 37 | 59 | 92 | 150 | 706 |
| 1997/98 | 58 | 40 | 47 | 37 | 28 | 28 | 29 | 31 | 77 | 66 | 58 | 100 | 599 |
| Średnia wieloletnia* Many years’ average | 75 | 49 | 45 | 39 | 38 | 31 | 29 | 30 | 39 | 57 | 71 | 85 | 599 |
- – Średnie z lat 1871 – 1990
- – Averages since 1871 to 1990
WYNIKI
Pora kwitnienia badanych lip. Kwitnienie wszystkich badanych lip łącznie trwało średnio od około 10 (15) czerwca do początków sierpnia (ryc. 1). W latach o wcześniejszych wiosnach, a zwłaszcza z wyższą temperaturą w maju (1996, 1998) kwitnienie zaczynało się około 2 tygodnie wcześniej niż w latach o chłodnym maju (1995, 1997).
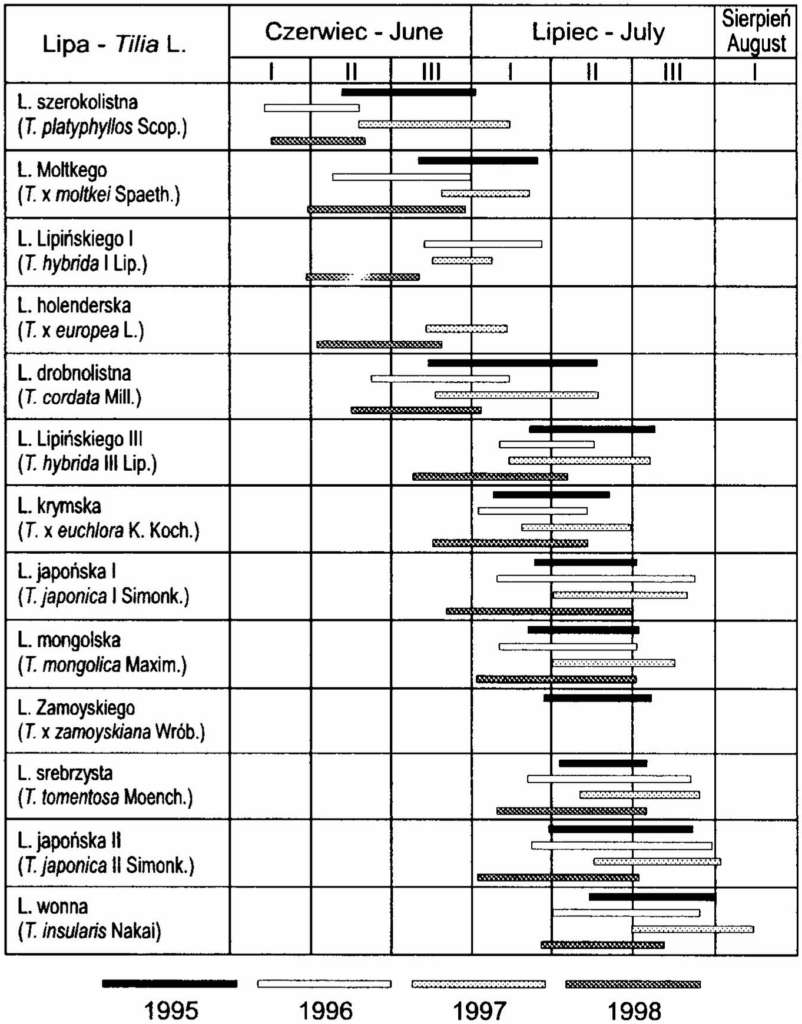
Poszczególne taksony różniły się między sobą średnią długością okresu kwitnienia zaledwie o kilka dni. Większe różnice występowały jednak w porze kwitnienia badanych egzemplarzy między latami. Poza tym jedne z nich wykazywały dłuższy okres kwitnienia w lata nieparzyste (np. lipa szerokolistna i także drobnolistna), inne zaś w parzyste (np. lipa Moltkego, japońska I, mongolska, srebrzysta). Wszystko to można wiązać z pogodą panującą podczas kwitnienia. Średnia długość okresu kwitnienia badanych gatunków i mieszańców mieściła się w granicach 12-18 dni. Wzajemne zazębianie się ich kwitnienia okazało się bardzo silne, a słabsze było tylko lipy szerokolistnej z kolejno i krótko po sobie zakwitającą lipą Moltkego, Lipińskiego I, holenderską i drobnolistną.
Dobowa dynamika rozkwitania kwiatów lip i oblotu ich przez pszczoły. Stwierdzono, że dobowy rytm rozkwitania kwiatów wszystkich badanych taksonów lipy ma charakter podobny. Pąki ich rozkwitają w ciągu całej doby, wykazując jedno nasilenie w porze rannej (godz. 4-9), a drugie wieczorem (w godz. 18-21).
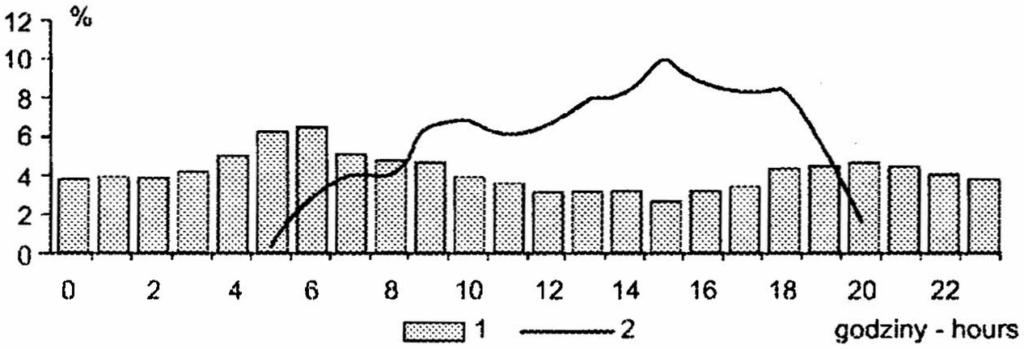
Zjawisko to ilustruje wykres (ryc.2), wykonany na podstawie wartości średnich ze wszystkich taksonów i lat badań. Linia krzywa na tym wykresie przedstawia dzienną dynamikę zagęszczenia pszczół miodnych na kwiatach lip. Z przebiegu jej wynika, że owady te pojawiają się na lipach już około godziny 5, a ostatnie odlatują około godziny 20 (21). W niektórych dniach obserwowano pracujące pszczoły jeszcze około godziny 22. Dość częstymi owadami odwiedzającymi kwiaty lipy były różne gatunki trzmieli oraz pszczoły samotnice.
strona 269Sezonowa dynamika rozkwitania lip.
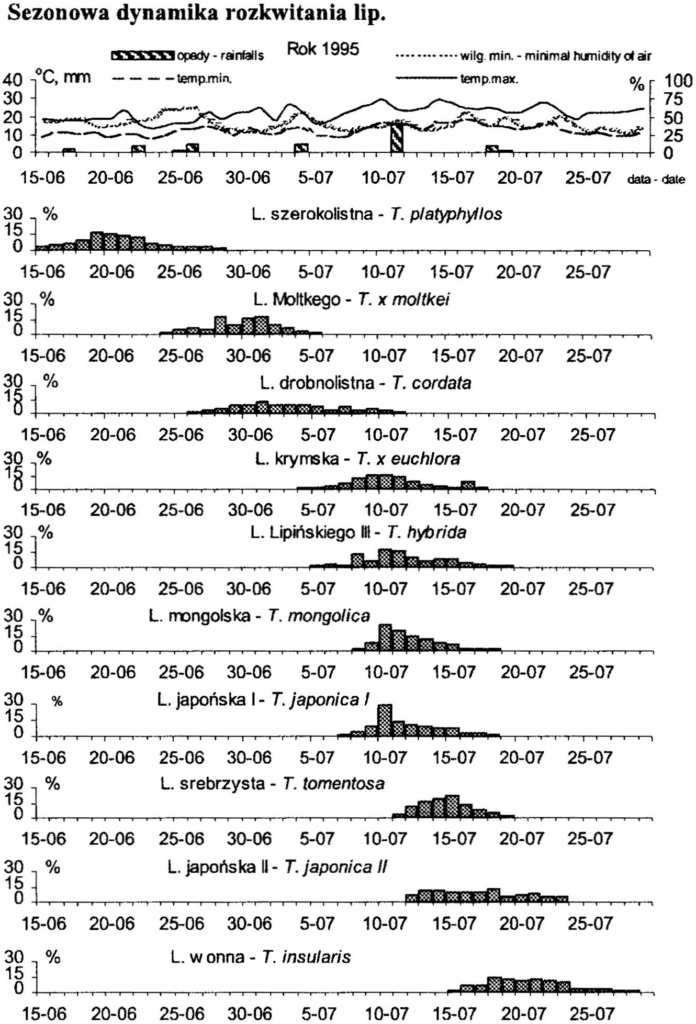
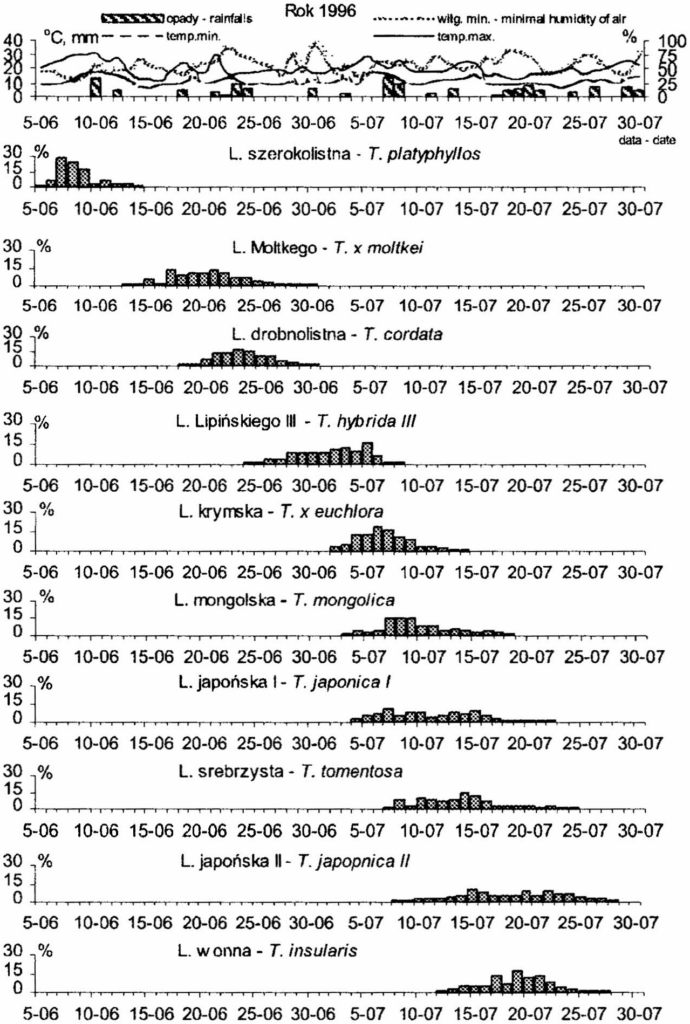
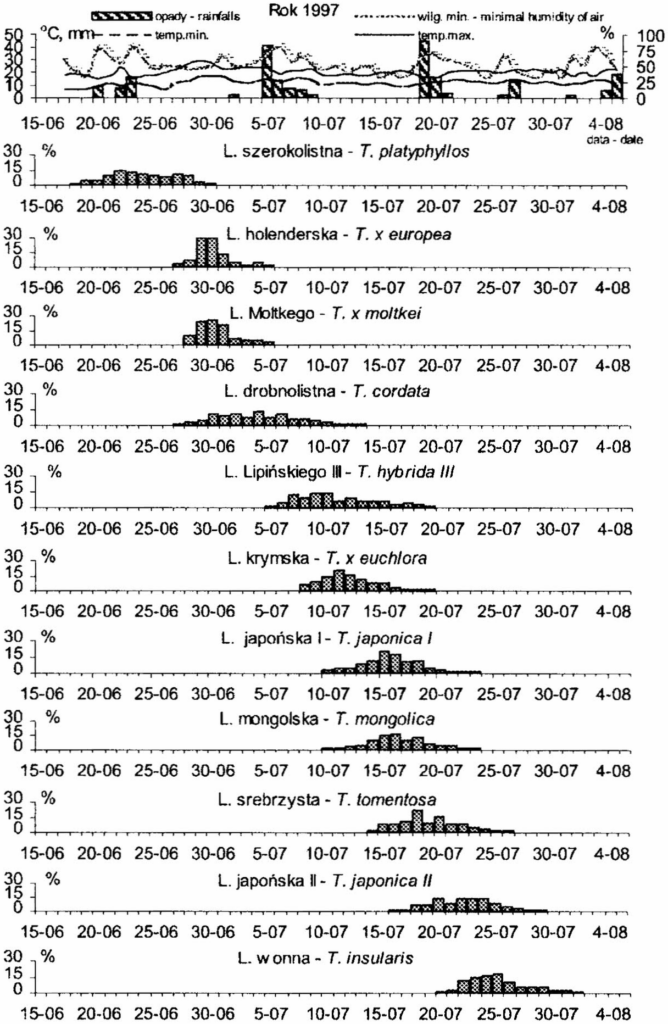
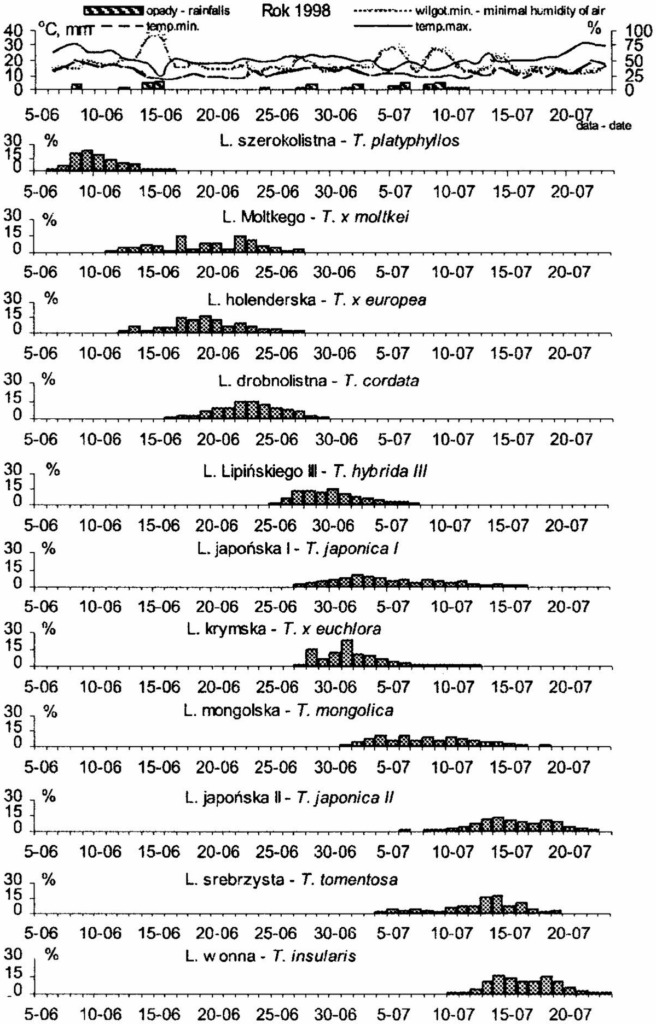
Wykresy na ryc.3 ilustrują czteroletnie wyniki szczegółowych obserwacji pory i dynamiki rozkwitania badanych taksonów, na tle panujących warunków pogody w danym roku. Jak widać, począwszy od pierwszego dnia liczba rozkwitających w ciągu doby kwiatów na gałęziach doświadczalnych (a więc i na drzewach) stopniowo wzrastała, a po osiągnięciu szczytu w fazie pełni kwitnienia równomiernie malała aż do zera. Ciepła pogoda wpływała zawsze na wzmożenie procesu rozkwitania pąków i na skrócenie okresu kwitnienia drzew (przykład: lipa srebrzysta w roku 1995 i szerokolistna w latach 1996, 1998), a pogoda chłodna odwrotnie – hamowała tempo rozkwitania kwiatów i wydłużała kwitnienie drzew (przykład: lipa japońska, krymska i mongolska w roku 1998). W szczytowej fazie rozkwitania rozwijało się w ciągu doby przy pogodzie chłodnej do 10% wszystkich kwiatów na drzewie, a przy pogodzie ciepłej ponad 20%.
Obfitość kwitnienia badanych lip. Około 30-letnie drzewa lipowe wykazały w ciągu 4 lat dużą zmienność w obfitości kwitnienia, na co wpływ miały cechy dziedziczne danego taksonu (tab.2). Biorąc pod uwagę wartości średnie z lat, najmniejszą liczbę kwiatów na jednym drzewie (210-270 tys.) wytworzyła lipa holenderska, srebrzysta i szerokolistna, 2-krotnie więcej mieszaniec Lipińskiego I i lipa mongolska (średnio 400-500 tys.), natomiast lipa Moltkego, krymska i drobnolistna 710-750 tys., a Lipińskiego III, Zamoyskiego, japońska i wonna nawet około 1000 tys. i więcej. Najbardziej wyrównaną z roku na rok obfitość kwitnienia wykazała lipa szerokolistna oraz Moltkego, a następnie Lipińskiego I, holenderska i srebrzysta. Pozostałe taksony, wśród nich drobnolistna, kwitły wyraźnie przemiennie: w lata nieparzyste – bardzo obficie, a w parzyste słabo lub w ogóle nie kwitły.
Dość trudno jest dopatrzyć się jednoznacznie związku obfitości kwitnienia lip z warunkami pogody w ciągu roku. Jeżeli jednak wziąć pod uwagę okres od początku sierpnia do końca lipca roku następnego, to lata obfitego kwitnienia charakteryzowały się znacznie wyższą sumą opadów oraz niższą temperaturą miesiąca maja (chłody do małych przymrozków włącznie w roku 1995). Możliwe, że takie warunki sprzyjały lepszemu wykształcaniu się pąków kwiatowych oraz całych kwiatostanów. W latach obfitszego kwitnienia lipy wytwarzały nie tylko więcej kwiatostanów na drzewach, ale i na ogół także kwiatów w kwiatostanach (tab.2).
W miarę upływu wieku drzewa kwitły one coraz obficiej z wyjątkiem lipy holenderskiej, u której występowało zasychanie młodych gałązek zwłaszcza w znacznym procencie w ostatnim roku. Podobnie słabo kwitła rokrocznie lipa amerykańska, dlatego nie uwzględniono jej w badaniach.
strona 274T a b e l a 2 Obfitość kwitnienia badanych gatunków i mieszańców lipy Blooming abundance of examined species and hybrids of lime-tree
| Lipa Tilia L. | Liczba kwiatów na 1 drzewie w tys. – Number of flowers per 1 tree in thousand: 1995 | 1996 | 1997 | 1998 | Średnio Average |
|---|---|---|---|---|---|
| L. szerokolistna | 294 | 249 | 231 | 323 | 274 |
| (T. platyphyllos Scop.) | 4,3 | 3,7 | 4,3 | 4,8 | 4,3 |
| L. Moltkego | 572 | 543 | 716 | 900 | 683 |
| (T. x moltkei Spaeth.) | 7,5 | 7,8 | 7,4 | 7,5 | 7,6 |
| L. Lipińskiego I | 393 | 195 | 290 | 768 | 412 |
| (T. hybrida I Lip.) | 4,0 | 4,9 | 4,6 | 5,0 | 4,6 |
| L. holenderska | 394 | 184 | 238 | 24 | 210 |
| (T. x europea L.) | 6,2 | 4,4 | 4,5 | 3,8 | 4,7 |
| L. drobnolistna | 908 | 121 | 1473 | 510 | 753 |
| (T. cordata Mill.) | 7,3 | 6,8 | 7,8 | 7,6 | 7,4 |
| L. Lipińskiego III | 400 | 317 | 1561 | 1731 | 1000 |
| (T. hybrida III Lip.) | 19,6 | 12,6 | 24,5 | 21,2 | 19,5 |
| L. krymska | 565 | 309 | 1438 | 545 | 714 |
| (T. x euchlora K. Koch) | 4,6 | 3,9 | 4,8 | 3,7 | 4,3 |
| L. japońska I * | 23 | 39 | 59 | 49 | 42 |
| (T. japonica I Simonk.) | 19,6 | 20,7 | 27,5 | 19,6 | 21,8 |
| L. mongolska | 454 | 32 | 1533 | 34 | 513 |
| (T. mongolica Maxim.) | 15,5 | 13,3 | 19,6 | 16,4 | 16,2 |
| L. Zamoyskiego | 1999 | 5 | 1909 | 259 | 1043 |
| (T. x zamoyskiana Wróbl.) | 22,7 | 18,5 | 18,6 | 16,0 | 18,9 |
| L. srebrzysta | 77 | 212 | 223 | 327 | 210 |
| (T. tomentosa Moench.) | 6,4 | 6,4 | 5,9 | 6,0 | 6,2 |
| L. japońska II | 1054 | 92 | 2435 | 787 | 1092 |
| (T. japonica II Simonk.) | 46,9 | 33,8 | 59,6 | 46,5 | 46,7 |
| L. wonna | 1617 | 473 | 2892 | 357 | 1335 |
| (T. insularis Nakai) | 68,5 | 43,9 | 58,4 | 40,6 | 52,8 |
| Średnio | 727 | 228 | 1244 | 567 | 687 |
| Average | 17,1 | 13,9 | 19,0 | 13,8 | 16,0 |
Uwaga: Wartości zapisane drobnym drukiem dotyczą liczby kwiatów w kwiatostanie
- – Drzewo 10-13 letnie (odrośl złamanego drzewa przy ziemi) Attention: The values written by small characters concern to the number of flowers per inflorescence
- – The tree 10-13 years old (sprout of the broken tree)
DYSKUSJA
Obserwowane w Puławach długości okresów kwitnienia lip, jak też ich charakter zazębiania się oraz rozbieżności w porze kwitnienia między latami zgadzają się z tym, co stwierdzili D e m i a n o w i c z i H ł y ń (1960) w Kórniku k. Poznania przed 40 laty, choć dotyczy to tylko kilku tych samych taksonów. Na przykład lipa Moltkego w Puławach zakwitała wcześniej niż w Kórniku (przed drobnolistną) i bardziej zazębiała się okresem kwitnienia z lipą szerokolistną, zgodnie z informacjami B i a ł o b o k a (1955), B u g a ł y (1991) i L i p i ń s k i e g o (1982). Lipa japońska i wonna kwitły natomiast w Puławach później niż w Kórniku, co także jest zgodne z danymi wyżej wymienionych autorów.
Ogólne dane dotyczące dobowej dynamiki rozkwitania kwiatów lip znaleźć można tylko w pracy C z u b a c k i e g o (1996), który wykonywał obserwacje w Zamościu. Nasze dane są identyczne tylko co do tego, że proces rozkwitania lip odbywa się całą dobę, jednak nocą nie jest on słabszy niż w dzień i wykazuje poza tym jeden wyraźniejszy szczyt rano (w godz. 5-6), a drugi mniej wyraźny wieczorem (w godz. 18-21). Rozbieżności te można tłumaczyć odmiennymi warunkami pogody w czasie badań.
Prezentowane w pracy wyniki obserwacji sezonowej dynamiki rozkwitania kwiatów lip nie mają odpowiedników w literaturze, poza danymi C z u b a c k i e g o (1996), z którymi są zgodne. Wypada tu wspomnieć, że ze względu na kilkudniowy czas życia kwiatów lip, okresy ich kwitnienia ustalane na zasadzie oceny wzrokowej są normalnie przesunięte na porę nieco późniejszą, w porównaniu z okresami wynikającymi z danych sezonowej dynamiki rozkwitania.
Duże wahania występujące w liczbie kwiatów na drzewach lipowych w Puławach (od kilku tysięcy do ponad 2 milionów) są w swym charakterze podobne do stwierdzonych przez D e m i a n o w i c z a i H ł y ń (1960) oraz przez M a k s y m i u k (1960). Określone przez nas liczby kwiatów na drzewach są jednak większe od danych Maksymiuk, która badała lipę drobnolistną w warunkach leśnych. Bardziej zbliżone są one do danych Demianowicz i Hłynia, uzyskanych dla drzew rosnących w warunkach parku. W Puławach, podobnie jak w Kórniku, najwięcej kwiatów wytworzyły drzewa lipy wonnej i japońskiej.
Stwierdzona przemienność kwitnienia większości badanych taksonów, wyrażająca się u nas obfitym kwitnieniem drzew w latach nieparzystych, a słabym w parzystych, jest zgodna z obserwacjami pszczelarzy i także z doniesieniami w literaturze (m.in. G ł u c h o v 1955, M i l e w s k i i Z a j ą c z k o w s k i 1966, S z y m a n o w s k i 1970, M i l e w s k i 1975, K r y s z t o f i k 1976, L i p i ń s k i 1982). Drzewa skłonne do obfitego kwitnienia w jednym roku, w drugim kwitną słabo, gdyż duża liczba wytwarzanych owoców ogranicza zawiązywanie pąków kwiatowych na rok
strona 276następny. Poza tym istnieje wyraźna zmienność w obfitości i przemienności kwitnienia poszczególnych egzemplarzy. Niezależnie od tego warunki siedliskowe (jak rodzaj gleby, stan jej wilgotności, czynniki pogody, a szczególnie wiosenne przymrozki niszczące pąki kwiatowe) mogą powodować nawet kilkuletnie okresy słabego kwitnienia lip. W trakcie naszych badań szkód od wiosennych przymrozków nie było. Wydaje się, że stwierdzone przez nas dość równomierne rokroczne kwitnienie jednych taksonów (lipa szerokolistna, Moltkego, Lipińskiego I, holenderska, japońska II i srebrzysta) i przemienne, co drugi rok obfite innych (lipa drobnolistna, Lipińskiego III, krymska, mongolska, Zamoyskiego, japońska I i wonna) można uznać za cechy dziedziczne. Z pszczelarskiego i ogólnoekologicznego punktu widzenia równomierne w każdym roku kwitnienie drzew jest korzystniejsze od przemiennego. Może więc warto, jak radzą niektórzy (m.in. G ł u c h o v 1955, K r y s z t o f i k 1976), te co drugi rok bogato kwitnące lipy zmuszać do corocznego kwitnienia, np. przez stosowanie odpowiedniego nawożenia lub innych zabiegów.
Fakt obfitego kwitnienia lip w Puławach w latach o częstych opadach potwierdza dane z literatury, że dla tych drzew bardzo ważny jest dostatek wilgoci w glebie.
PODSUMOWANIE I WNIOSKI
Kwiaty lip rozkwitają w ciągu całej doby, ze zwiększonym nieco nasileniem rano i pod wieczór. Są odwiedzane przez owady pszczołowate zbierające nektar i pyłek, od wczesnego rana do późnego wieczora, niekiedy nawet o zmroku.
Pod względem liczby wytwarzanych kwiatów na drzewie na pierwszym miejscu uplasowały się lipa wonna, japońska, Zamoyskiego i Lipińskiego III (powyżej 1 miliona kwiatów), na drugim lipa drobnolistna, krymska, Moltkego, mongolska i Lipińskiego I (500-700 tys.), a na trzecim lipa szerokolistna, holenderska i srebrzysta (200-300 tys.).
Okres kwitnienia określonego gatunku czy mieszańca trwa przeciętnie około dwóch tygodni. Odpowiedni dobór taksonów do nasadzeń, począwszy od lipy szerokolistnej, poprzez Moltkego, drobnolistną, krymską, japońską do wonnej, może zapewnić nieprzerwany pożytek pszczole miodnej i ciągłość taśmy pokarmowej także dziko żyjącym owadom pszczołowatym od połowy czerwca do końca lipca.
Nie występowanie większych majowych przymrozków w czasie badań pozwoliło zaobserwować, że jedne taksony (lipa szerokolistna, Moltkego, Lipińskiego I, holenderska i srebrzysta) wykazywały dość równomierne coroczne kwitnienie, inne (lipa drobnolistna, krymska, mongolska, japońska i wonna) przemienne, co drugi rok obfite.
strona 277Badania lip przeprowadzone przez kolejne 4 sezony wegetacyjne wykazały, że obfite kwitnienie lip miało miejsce w lata nieparzyste (1995 i 1997), w których to okresy liczone od początku sierpnia poprzedniego roku do końca lipca były znacznie bogatsze w opady niż oba lata parzyste (1996 i 1998).
Wyższa temperatura w czasie kwitnienia danego taksonu wpływała na skrócenie tego okresu nawet do 10 dni, a niższa przedłużała go do ponad 20 dni. W fazie pełni kwitnienia drzew liczba pąków kwiatowych rozwijających się w ciągu doby na drzewie, w zależności od pogody, sięgała 10-30% sumy wszystkich kwiatów rozkwitłych.
Warto doświadczalnie sprawdzić, czy lipy kwitnące bardzo obficie ale co drugi rok nie można w wyniku różnych zabiegów agrotechnicznych pobudzić do wytwarzania pąków kwiatowych rokrocznie, gdyż było by to ważne nie tylko z pszczelarskiego, ale i ogólnoekologicznego punktu widzenia.
LITERATURA
B i a ł o b o k S. (1955)- Drzewoznawstwo. PWRiL, Warszawa, s.:451-460.
B u g a ł a W. (1991)- Drzewa i krzewy dla terenów zieleni. Wyd. II. PWRiL, Warszawa, s.:253-261.
C z u b a c k i W. (1996)- Niektóre szczegóły biologii kwitnienia i nektarowania lip (Tilia platyphyllos Scop. I Tilia cordata Mill.). Pszczeln. Zesz. Nauk., 40(1):15-26.
D e m i a n o w i c z Z., H ł y ń M. (1960)- Porównawcze badania nad nektarowaniem 17 gatunków lip. Pszczeln. Zesz. Nauk., 4(3-4):133-152.
G ł u c h o v M. M. (1955)- Važniejšyje miedonosnyje rastienia i sposoby ich rozviedienia. „Sielchozgiz”, Moskva, s.:420-434.
J a r o s J. (1952)- Lipa. PWRiL, Warszawa, s.:1-13.
K r y s z t o f i k E. (1976)- Kwitnące i nie kwitnące lipy. Pszczelarstwo, 27(10):4-6.
L i p i ń s k i M. (1982)- Pożytki pszczele, zapylanie i miododajność roślin. Wyd. III. PWRiL, Warszawa, s.:199-202, 317-328.
Ł u k a s z e w i c z J. (1997- Lipy w Polsce. Pszczelarstwo, 48(7):8-9.
M a k s y m i u k I. (1960)- Nektarowanie lipy drobnolistnej (Tilia cordata Mill.) w Rezerwacie Obrożyska koło Muszyny. Pszczeln. Zesz. Nauk., 4(2):105-125.
M i l e w s k i J. (1975)- Nie kwitnące lipy. Pszczelarstwo. 26(7-8):7-8.
M i l e w s k i J., Z a j ą c z k o w s k i K. (1966)- Badania nad doborem miododajnych lip do zadrzewień, na dłuższy okres kwitnienia. Biul. IBL, 2:61-116.
S z y m a n o w s k i T. (1970)- Lipa wonna (Tilia insularis Nakai). Roczn. Sekc. Dendr. PTB. Cz.XVII. Warszawa, s.:99-106.
strona 278SOME OCCURRENCES OF BLOOMING BIOLOGY OF SELECTED SPECIES AND HYBRIDS OF LIME-TREE (Tilia L.) AND THEIR FORAGING BY BEES
K. Szklanowska, D. Teper, B. Jabłoński, Z. Kołtowski
The course and abundance of blooming of 13 species and hybrids of lime-tree in dependence on weather conditions were investigated in years 1995-1998 in Puławy. The trees were about 30 years old and in order of blooming there were: Tilia platyphyllos Scop., T. x moltkei Spaeth., T. hybrida I Lip., T. x europea L., T. cordata Mill., T. hybrida III Lip., T. x euchlora K. Koch., T. mongolica Maxim., T. x zamoyskiana Wróbl., T. tomentosa Moench., T. japonica I and II Simonk., T. insularis Nakai.
It was stated that flowers of lime-trees bloomed through all twenty-four hours and were foraged by bees from early morning to late evening to collect mainly nectar and particle of pollen. The length of individual species blooming at warm weather carried out about 10 days, and at cool weather lengthened even to over 20 days. Periods of blooming of investigated species dovetailed very strongly, assuring uninterrupted bee forage flow and continuity of food tape for wild bees from half of June to the end of July.
Under regard of abundance of blooming on the first place was found T. insularis, T. japonica, T. x zamoyskiana and T. hybrida III producing average over 1 million of flowers per tree. On the second place were T. cordata, T. x euchlora, T. x moltkei, T. mongolica and T. hybrida I producing average 500-700 thousand of flowers per tree. On the third place were T. platyphyllos, T. x europea and T. tomentosa producing average 200-300 thousand of flowers per tree.
The five of investigated species and hybrids of lime-tree (T. platyphyllos, T. x moltkei, T. hybrida, T. x europea and T. tomentosa) showed enough regular abundance of blooming year by year, and remaining bloomed abundantly only every second year. The abundant blooming of lime-trees took place in odd years, when in periods counted from August of previous year to July of present year the falls were more frequent.
From beekeeper and ecological point of view advisable would be elaboration of methods to forcing of lime-trees blooming every second year to more regular blooming each year.
Keywords: lime-tree, biology of blooming, abundance of blooming, alternation of blooming