

O DZIEDZICZENIU CECH RODZICÓW U PSZCZÓŁ
tekst: Antoni Demianowicz
Pszczelnicze Zeszyty Naukowe, Rok I, Nr 3, grudzień 1957 — Antoni Demianowicz
Antoni Demianowicz
Zakład Pszczelnictwa I.S.
strona 97U większości zwierząt hodowlanych, zarówno żeńskie jak też i męskie osobniki powstają w wyniku zapłodnienia — zlania się komórki plemnikowej z jajową. W jądrze zygoty (komórki powstałej w wyniku zapłodnienia) ilość chromosomów jest dwukrotnie większa niż w komórkach jajowych i plemnikowych. W zasadzie każdemu chromosomowi matczynemu odpowiada wniesiony przez plemnik chromosom ojcowski tej samej wielkości i kształtu. Jeżeli więc w komórkach jajowych i plemnikowych liczba chromosomów wynosiła n, to w zarodku będzie ich 2n.
Określenie płci potomka zależy jednak nie od tych parzystych chromosomów, lecz od tzw. chromosomów płci, oznaczanych literą x względnie y. U ssaków, większości owadów i wielu innych zwierząt jądro zygoty, z której powstanie samica (a w przyszłości i jądra nabłonka zarodkowego jajników), ma garnitur chromosomalny 2n + 2x, natomiast dla jądra zygoty samca jest charakterystyczny garnitur 2n + x, względnie 2n + x + y. A więc u samców chromosom x nie ma odpowiednika i występuje bądź to w pojedynkę, bądź też w parze ze znacznie mniejszym chromosomem y. Przy tworzeniu się gamet musi nastąpić zmniejszenie się podwójnej liczby chromosomów do połowy. Po takim redukcyjnym podziale wszystkie komórki jajowe będą miały jednakowy garnitur chromosomalny, a mianowicie n + x. Plemniki natomiast będą dwóch rodzajów: n + x oraz n, względnie n + x oraz n + y. Przy zapłodnieniu komórki jajowej plemnikiem wyposażonym w chromosom x, zygota będzie miała skład chromosomalny 2n + 2x, — będzie to osobnik żeński. Jeżeli plemnik był pozbawiony chromosomu x, to po zlaniu się go z komórką jajową powstanie zygota rodzaju męskiego o składzie 2n + x, względnie 2n + x + y.
U ptaków i motyli zachodzi odwrócenie tylko co opisanych stosunków, a mianowicie osobniki męskie charakteryzuje garnitur chromosomalny 2n + 2x, a osobniki żeńskie 2n + x lub 2n + x + y.
strona 98
U pszczół określenie płci potomka odbywa się w sposób odmienny. Już w połowie ubiegłego stulecia Jan Dzierżon (1) wypowiedział twierdzenie, że trutnie (samce pszczele) rozwijają się z jaj niezapłodnionych. Odkrycia tego, dzieworództwa (partenogenezy) u pszczół, dokonał on na podstawie obserwacji matek pszczelich i ich potomstwa. Tezę Dzierżona poparł Siebold (7), który badając jaja złożone na trutnie nie wykrył plemników. Niezbicie jednak fakt dzieworództwa u pszczół potwierdziły badania cytologiczne owo- i spermatogenezy u tych owadów: Petrunkewitsch (5, 6), Meves (3), Nachtscheim (4), wyjaśniając ponadto istotę tego zjawiska.
Po zlaniu się jądra plemnikowego z jądrem komórki jajowej powstaje zygota rodzaju żeńskiego wyposażona w podwójną (diploidalną) ilość chromosomów — 2n. Specjalnych płciowych chromosomów u pszczół nie ma. Przy tworzeniu się jaj garnitur chromosomalny redukuje się do połowy i wówczas jądro komórki jajowej zawiera już tylko n chromosomów. Jeżeli zapłodnienie nie nastąpi, to jądro jaja mimo to zaczyna dzielić się, dając w rezultacie zarodek osobnika męskiego — trutnia, który ma pojedynczy (haploidalny) garnitur chromosomalny n, a więc taki sam jaki był w jaju.
Wobec haploidalności trutni przy tworzeniu się plemników liczba chromosomów nie powinna maleć (i tak jest istotnie). Jak wykazały badania Mevesa (3) w czasie pierwszego podziału dojrzewania chromosomy dzielą się wzdłuż, wskutek czego liczba ich podwaja się. Układają się one w płaszczyźnie równikowej, lecz nie rozchodzą się, ponieważ nie pozwala na to błona jądrowa, która nie zanika. Wszystkie chromosomy pozostają w obrębie komórki macierzystej jednak oddziela się od niej bezjądrowe ciałko kierunkowe. Podczas drugiego podziału dojrzewania, odpowiadającego redukcyjnemu, chromosomy nie dzielą się już a ustawiają w pary, po czym połowa z nich zostaje wyrzucona poza obręb komórki w momencie tworzenia się drugiego ciałka kierunkowego. W ten sposób podwojona ilość chromosomów znowu zmniejsza się do liczby haploidalnej.
Powstawanie haploidalnych samców bez zapłodnienia sprawia, że:
- matka pszczela unasienniona może dowolnie określać płeć potomka,
- żadna z cech odziedziczonych nie pozostaje u trutnia w utajeniu,
- schemat dziedziczenia cech rodziców jest u pszczół odmienny od większości zwierząt hodowlanych.
Celem niniejszego artykułu jest właśnie zwrócenie uwagi na tę odmienność oraz na niektóre jej konsekwencje mające znaczenie praktyczne.
Jeżeli skrzyżujemy ze sobą dwa diploidalne osobniki np. samicę czystej rasy AA i samca czystej rasy aa, to uzyskamy w pierwszym pokoleniu
strona 99F₁ 100% mieszańców Aa. Jeżeli następnie będziemy krzyżować ze sobą osobniki z pierwszego pokolenia, to przy przypadkowym łączeniu się par i dostatecznie dużej liczbie potomków w pokoleniu F₂ otrzymamy 25% czystej rasy matki założycielki AA, 50% mieszańców Aa oraz 25% czystej rasy ojca założyciela — aa. Dzieje się tak dlatego, że zarówno samice i samce pierwszego pokolenia, wszystkie bez wyjątku mieszańce, Aa, będą produkowały 50% gamet (jaj i plemników) niosących cechę A oraz 50% niosących cechę a. Stosunek gamet z cechą A i cechą a, produkowanych przez osobniki z F₂, będzie ten sam — 1:1, gdyż 1/4 osobników czystej rasy AA da wszystkie gamety A, 1/4 osobników czystej rasy aa da taką samą ilość gamet a, zaś pozostałe 1/2 osobników mieszańców będzie produkowała gamety obu rodzajów w jednakowej ilości. Dlatego też stosunek ilościowy osobników o różnym genotypie AA, Aa i aa w F₃ będzie taki sam, jak w F₂ (1:2:1), a co za tym idzie i stosunek ilościowy produkowanych przez nich gamet z A i a, z których powstanie F₄ itd.
Wynika stąd, że u tego rodzaju zwierząt przy dostatecznie dużej ilości osobników i przy swobodnym, przypadkowym łączeniu się ich ze sobą, cechy użytych do krzyżówki czystych ras, począwszy od drugiego pokolenia utrzymują się w potomstwie w tym samym niezmiennym stosunku przez dowolnie długi szereg pokoleń oraz, że i matka i ojciec wpływają na potomstwo w jednakowym stopniu. Ilustruje to wykres 1.
U pszczół po skrzyżowaniu matki AA z trutniem a w F₁ wszystkie samice (patrz wykres 2) będą mieszańcami Aa, gdyż pochodzą z jaj A i plemników a. Natomiast trutnie z F₁ wszystkie bez wyjątku będą czystej rasy matki — A, gdyż pochodzą z niezapłodnionych jaj A (patrz wykres 3).
W F₂ osobniki żeńskie powstające z jaj (matek mieszańców) w połowie niosących cechę A a w połowie cechę a oraz plemników trutni czystej rasy A, będą w 50%-ach czystej rasy AA, a w 50%-ach mieszańcami Aa. Trutnie w F₂ powstające z niezapłodnionych jaj matek z F₁ będą w 50%-ach należały do czystej rasy A i w 50%-ach do rasy a. Należy zwrócić uwagę, że ani w F₁ ani w F₂ nie będzie jeszcze osobników żeńskich czystej rasy aa.
Stosunek plemników z cechą A i plemników z cechą a, produkowanych przez samców F₂ będzie ten sam jak u jaj samic F₁ (1:1). Natomiast stosunek składanych przez matki F₂ jaj z cechą A i a wyniesie 3:1 (połowa matek AA da wyłącznie jaja A, a połowa matek mieszańców da 50% jaj A i 50% a).
Chcąc obliczyć stosunek osobników żeńskich o różnym składzie rasowym w F₃ posłużymy się szachownicą (patrz schemat 1).
strona 100Schemat 1 — szachownica (lewa część strony)
Nagłówek kolumn: plemniki. Nagłówek wierszy (napis pionowy przy lewej krawędzi): jaja.
| A 1 |
a 1 |
|
|---|---|---|
| A 3 | AA — 3 |
Aa — 3 |
| a 1 | Aa — 1 |
aa — 1 |
Zestawienie po prawej stronie szachownicy
| Samice | Samce | ||
|---|---|---|---|
| AA | 3/8 = 37,5% | A | 3/4 = 75% |
| Aa | 4/8 = 50% | ||
| aa | 1/8 = 12,5% | a | 1/4 = 25% |
Schem. 1 — Skład genetyczny F₃.
Ponieważ samce rozwijają się bez zapłodnienia, stosunku ich z A i a nie potrzeba obliczać, gdyż w dowolnym pokoleniu (Fₙ) odpowiada on stosunkowi A i a w jajach samic poprzedniego pokolenia (Fₙ₋₁). Stosunek więc samic czystej rasy AA, mieszańców Aa i czystej rasy aa w F₃ wynosi 3:4:1, a samców rasy A i a — 3:1. Na tabl. 1 podane są ciągi liczb określających te stosunki do F₁₆. Liczby tych ciągów rosną do nieskończoności, podczas gdy stosunki wzajemne między nimi coraz bardziej zbliżają się do prostego stosunku 4:4:1 dla samic i 2:1 dla samców. Do jakiego limitu zdążają stosunki liczb, charakteryzujących poszczególne grupy osobników, jeszcze wyraźniej widać na wykresach 2 i 3. Na wykresach tych ułamki zastąpiono procentami. Skład procentowy pogłowia samic w F∞ wynosiły 44,4 …., 44,4 …. oraz 11,11 …., a samców 66,6 …. i 33,3 …..
Warto zaznaczyć, że pogłowie samic i samców o takim składzie wydawałoby dalsze pokolenie o takim samym, niezmieniającym się już składzie, co łatwo sprawdzić układając odpowiednią szachownicę.
Reasumując wyżej powiedziane, musimy stwierdzić, że u pszczół cechy czystych ras, użytych do krzyżówki, reprezentowane są w różnym stopniu w różnych pokoleniach i to niejednakowo w pogłowiu żeńskim i męskim oraz, że wpływ matki założycielki na potomstwo jest znacznie silniejszy niż wpływ ojca. Lekkomyślne, bez planowe wprowadzenie obcej krwi do pogłowia jest szkodliwe dla każdej hodowli. Szczególnie jednak szkodliwe jest to w pszczelarstwie, gdzie kontrola unasienniania praktycznie wymyka się prawie zupełnie z rąk pszczelarzy, wpływ zaś matek obcej rasy( a właśnie matki są importowane), ciąży na potomstwie w stopniu o wiele większym niż w każdej innej dziedzinie hodowli.
strona 101Cała strona zajęta przez trzy wykresy (strona złożona w poziomie).
Wykres 1 — nagłówek nad wykresem: % ♀AA × ♂aa
- Oś pionowa: 0, 10, 20, 30, 40, 50, 60, 70, 80, 90, 100
- Oś pozioma: 1, 2, 3, 4, 5, 6, 7, ∞, F
- Krzywe opisane w polu wykresu: Aa (linia kreskowana), AA oraz aa (linia ciągła i kropkowana, biegnące razem)
- Wartości graniczne przy prawej krawędzi: – – – 50 (dla Aa); ▬▬ 25 (dla AA i aa)
Wykres 2 — nagłówek nad wykresem: % ♀AA × ♂a
- Oś pionowa: 0, 10, 20, 30, 40, 50, 60, 70, 80, 90, 100
- Oś pozioma: 1, 2, 3, 4, 5, 6, 7, ∞, F
- Krzywe opisane w polu wykresu: Aa (linia kreskowana), AA (linia ciągła), aa (linia kropkowana)
- Wartości graniczne przy prawej krawędzi: – – – 44,4… ; ····· 11,1…
Wykres 3 — nagłówek nad wykresem: % ♀AA × ♂a
- Oś pionowa: 0, 10, 20, 30, 40, 50, 60, 70, 80, 90, 100
- Oś pozioma: 1, 2, 3, 4, 5, 6, 7, ∞, F
- Krzywe opisane w polu wykresu: A (linia ciągła), a (linia kropkowana)
- Wartości graniczne przy prawej krawędzi: —— 66,6… ; —- 33,3…
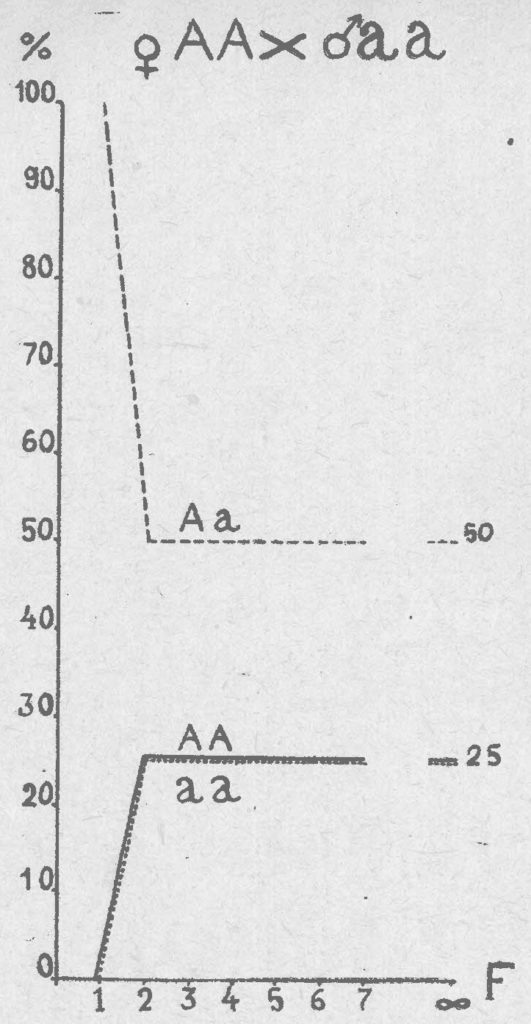
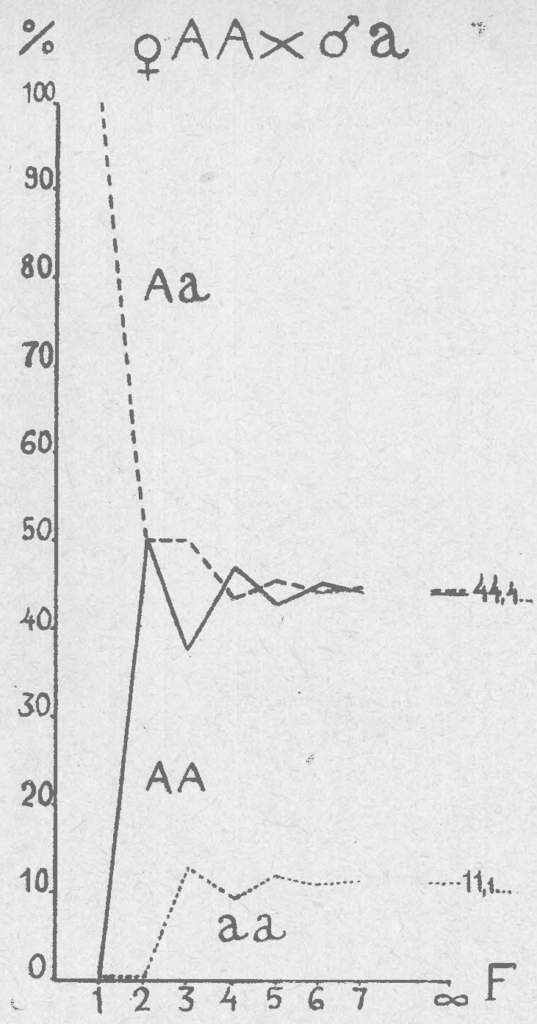
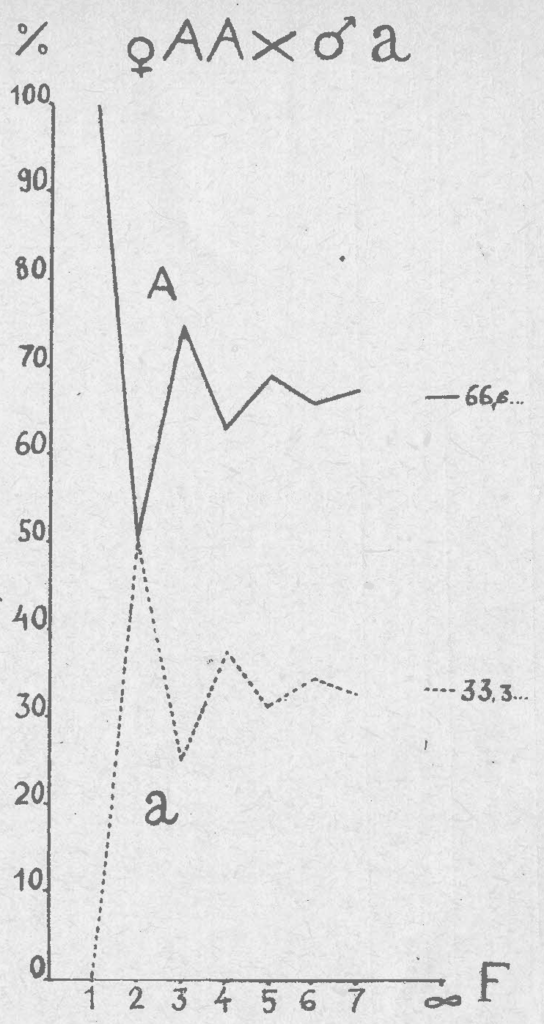
Tabela 1
| F | Samice | Samce | |||
|---|---|---|---|---|---|
| AA | Aa | aa | A | a | |
| F₁ | 0 | 1 | 0 | 1 | 0 |
| F₂ | 1 | 1 | 0 | 1 | 1 |
| F₃ | 3 | 4 | 1 | 3 | 1 |
| F₄ | 15 | 14 | 3 | 5 | 3 |
| F₅ | 55 | 58 | 15 | 11 | 5 |
| F₆ | 231 | 226 | 55 | 21 | 11 |
| F₇ | 903 | 914 | 231 | 43 | 21 |
| F₈ | 3655 | 3634 | 903 | 85 | 43 |
| F₉ | 14535 | 14578 | 3655 | 171 | 85 |
| F₁₀ | 58311 | 58226 | 14535 | 341 | 171 |
| F₁₁ | 232903 | 233074 | 58311 | 683 | 341 |
| F₁₂ | 932295 | 931954 | 232903 | 1365 | 683 |
| F₁₃ | 3727815 | 3728498 | 932295 | 2731 | 1365 |
| F₁₄ | 14913991 | 14912626 | 3727815 | 5461 | 2731 |
| F₁₅ | 59650503 | 59653234 | 14913991 | 10923 | 5461 |
| F₁₆ | 238612935 | 238607474 | 59650503 | 21845 | 10923 |
| F∞ | 4 | 4 | 1 | 2 | 1 |
Stosunek liczbowy samic i samców o różnym genotypie w szeregu pokoleń pszczół.
LITERATURA
- Dzierzon J. — Eichstädter Bienezzeitung, Bd. 1, 11, 113 (1845).
- Goetze G. — Die beste Biene. Leipzig (1949).
- Meves Fr. — Die Spermatocytenteilungen bei der Honigbiene (Apis mellifica L.) nebst Bemerkungen über Chromatinreduktion. Arch. mikr. Anat. Entwicklungsgesch. Bd. 70:414 (1907).
- Nachtsheim H. — Zytologische Stadium über die Geschlechtsbestimmung bei der Honigbiene. Archiv. f. Zellforschung Bd. 11:169—241 (1913).
- Petrunkewitsch A. — Die Richtungeskörper und ihr Schicksal im befruchteten und unbefruchteten Bienenei. Zool. Jahrb. Anat. Bd. 14. Odb. 36 str. (1901).
- Petrunkewitsch A. — Das Schicksal der Richtungskörper im Drohnenei. Zool. Jahrb. Anat. Bd. 17 (1903).
- Siebold C. Tth. — Wahre Partenogenesis bei Schmetterlingen und Bienen. Ein Beitrag zur Fortpflanzungsgeschichte der Tiere, Leipzig. (1856).
О НАСЛЕДОВАНИЕ У ПЧЕЛ ПРИЗНАКОВ РОДИТЕЛЕЙ
А. Демиянович
Резюме
У большинства домашних животных при скрещивание самки АА с самцом аа количественные соотношения между потомками с различным генотипом (АА, Аа и аа) начиная от F₂ равняются 1:2:1 и не изменяются уже в последующих поколениях. Влияние на потомство родителей обоего пола одинаково.
У пчел, вследствие развития самцов из неоплодотворенных яиц, соотношение между самками генотипа АА, Аа и аа и самцами А и а в каждом поколение инные. Из поколения в поколение эти отношения все более приближаются к пределу 4:4:1 для самок и 2:1 самцов.
Из этого явствует, что у пчел влияние самки — основателницы на потомство проявляется много сильнее, чем самца. Это обстоятельство имеет большое значение так как импорт пчел ведется главным образом путем привоза маток.
THE INHERITANCE OF PARENTAL CHARACTERISTICS IN BEES
A. Demianowicz
In most man-bred animals the ratio of the numbers of progeny deriving from an AA (female) x aa (male) different genotypes AA, Aa, aa beginning with F 2 comes to 1:2:1 and remains unchanged in supsenquent generations. The influence exerted by the parents on their progeny is the same in either sex.
Since among bees males develop from unfertilized eggs, the ratios of the numbers of females of AA, Aa and aa genotypes as well as A and a males differ in each generation and approach an upper limit of 4:4:1 for females and with each succeeding generation 2:1 for males.
Consequently in bees the queen mother’s influence upon the progeny is far greater than that of the drones. This fact is important in as much as bees import is almost totally restricted to the importation of mothers.
Errata — błędy druku znalezione podczas digitalizacji
- s. 100: „bez planowe” → bezplanowe
- s. 102, piśmiennictwo: „Bienezzeitung” → Bienenzeitung
- s. 102, piśmiennictwo: „Richtungeskörper” → Richtungskörper
- s. 102, piśmiennictwo: „C. Tth.” → C. Th.
- s. 102, piśmiennictwo: „Partenogenesis” → Parthenogenesis
- s. 103, streszczenie: „О НАСЛЕДОВАНИЕ” → О НАСЛЕДОВАНИИ
- s. 103, streszczenie: „при скрещивание” → при скрещивании
- s. 103, streszczenie: „каждом поколение инные” → каждом поколении иные
- s. 103, streszczenie: „основателницы” → основательницы
- s. 103, streszczenie: „supsenquent” → subsequent