

KINETYKA ENZYMATYCZNEGO DOJRZEWANIA MIODÓW OD RÓŻNYCH RAS PSZCZÓŁ
tekst: Jerzy Klemarewski
Pszczelnicze Zeszyty Naukowe, Rok XX, 1976 — Jerzy Klemarewski
strona 171PSZCZELNICZE ZESZYTY NAUKOWE ROK XX 1976
Jerzy Klemarewski
Oddział Pszczelnictwa IS
WPROWADZENIE
Wśród liczych prac poświęconych badaniom ras pszczół oraz badaniom miodu, jedynie w kilku znaleźć można doniesienia o różnicach w składzie chemicznym i biochemicznym miodów, spowodowanych różnicami rasowymi pszczół zbieraczek. Bornus i inni (1961) oraz Bartels (za Zanderem 1927) podają zgodne spostrzeżenie, że miód z tego samego pożytku od pszczół miejscowych jest ciemniejszy niż miód od pszczół kaukaskich. Balżekas (1974) potwierdza istnienie różnic organoleptycznych w miodach, wskazując jednocześnie na różnice w zawartości sacharozy, popiołu i aktywności α-amylazy w miodach od różnych ras pszczół, w warunkach pożytkowych Litwy. Curyło (1972) podkreśla wpływ rasy na aktywność inwertazową w miodzie. W badaniach krajowych kilkakrotnie szerzej podejmowano temat aktywności enzymatycznej miodu (Działoszyński i Kuik 1963, Zalewski 1963, 1965, Rychlik, Fedorowska 1965), jednak autorzy ograniczali się do podania odmian bądź terminu zbioru miodu, nie uwzględniając rasy pszczół.
W zakresie dojrzewania miodów, w aspekcie przemian chemicznych najcenniejszy materiał przedstawia praca Maurizio (1962), natomiast zmiany enzymatyczne fosfataz obszernie przeanalizował Zalewski (1965). W badaniach autorzy ci uwzględnili jedynie nektar oraz miód zasklepiony, dojrzały.
Podjęta praca miała na celu przede wszystkim określenie wpływu rasy pszczół na aktywność enzymatyczną miodu. Ponadto postanowiono dokładniej wyjaśnić dynamikę zmian enzymatycznych w czasie dojrzewania kilku miodów jednoodmianowych.
strona 172MATERIAŁ I METODY
W sezonie 1975 zgromadzono łącznine 81 próbek miodów odmianowych — rzepakowego, akacjowego i gryczanego w trzech stadiach dojrzałości — jako nakrop (zawierający 30—40% wody), miód niezasklepiony oraz miód dojrzały, zasklepiony. Próbki uzyskiwano w pasiece doświadczalnej, liczącej po trzy rodziny pszczół rasy środkowo-europejskiej — Apis mellifica mellifica, kraińskiej — Apis mellifica carnica, kaukaskiej — Apis mellifica caucasica, o wyrównanej sile.
Ponadto wykonano doświadczenie nad podkarmianiem małych liczących około 3000 osobników rodzin badanych ras, czystym roztworem sacharozy w obecności pożytku pyłkowego, a następnie oznaczano aktywność enzymatyczną otrzymanych „syropów pszczelich” (łącznie 24 próbki).
Wszystkie próbki (20—200 g) przechowywano do trzech miesięcy w szklanych słoikach, w lodówce do chwili wykonania analiz.
We wszystkich próbkach oznaczano zawartość wody oraz aktywność α-amylazy, inwertazy i katalazy.
Zawartość wody oznaczano refraktometrycznie wg PN „Miód pszczeli” (1967).
Aktywność α-amylazy (tzw. liczbę diastazową) oznaczano zmodyfikowaną metodą Whiteà, oznaczając ekstynkcję roztworów przy pomocy spektofotometru Zeissa, model VSU 1. Jednostka aktywności α-amylazy wyraża ilość enzymu, zawartą w 100 g miodu, która rozkłada 1,0 g skrobi w warunkach oznaczania (Recommended european regional standard for honey — 1970).
Aktywność inwertazy oznaczano polarymetrycznie wg Hadorna i Zürchera (1966), wyrażając działanie enzymu w gramach sacharozy zhydrolizowanej w ciągu 1 godz. w temp. 40°C, przy pH 5,8 przez enzymy zawarte w 100 g miodu.
Katalazę oznaczano metodą jedometryczną, opisaną przez Działoszyńskiego i Kuik (1963), wyrażając aktywność enzymu w ml 0.01 n wody utlenionej, rozłożonej w ciągu 1 godz. w warunkach oznaczania.
Wyniki opracowano metodą analizy wariancji (układ 3-czynnikowy) oraz obliczono współczynniki regresji i korelacji dla α-amylazy i inwertazy.
WYNIKI I DYSKUSJA
Liczba diastazowa, będąca miarą aktywności α-amylazy, we wszystkich próbkach miodów znacznie przekracza 8,3 jednostek spełniając w tym względzie wymagania PN „Miód pszczeli”. Również aktywność inwertazy wszystkich próbek znacznie przekracza proponowaną w normie europejskiej FAO/WHO dolną granicę — 6,5 jednostek (tab. 1).
strona 173Tabela 1 Kinetyka enzymatycznego dojrzewania miodów odmianowych od różnych ras pszczół Die enzymatische Reifekinetik der einheimishen Honige von verschidenen Bienenrassen
| Rasa pszczół / Bienenrasse | Stopień dojrzałości miodu* / Stufe der Honigreife* | Miód rzepakowy / Repshonig: H2O % | Miód rzepakowy / Repshonig: α-amylaza / α-Amylase | Miód rzepakowy / Repshonig: inwertaza / Inwertase | Miód rzepakowy / Repshonig: katalaza / Katalase | Miód akacjowy / Akazienhonig: H2O % | Miód akacjowy / Akazienhonig: α-amylaza / α-Amylase | Miód akacjowy / Akazienhonig: inwertaza / Inwertase | Miód akacjowy / Akazienhonig: katalaza / Katalase | Miód gryczany / Buchweizenhonig: H2O % | Miód gryczany / Buchweizenhonig: α-amylaza / α-Amylase | Miód gryczany / Buchweizenhonig: inwertaza / Inwertase | Miód gryczany / Buchweizenhonig: katalaza / Katalase | Syrop pszczeli / Zuckerfütterungshonig: H2O % | Syrop pszczeli / Zuckerfütterungshonig: α-amylaza / α-Amylase | Syrop pszczeli / Zuckerfütterungshonig: inwertaza / Inwertase | Syrop pszczeli / Zuckerfütterungshonig: katalaza / Katalase |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| A. m. caucasica | a | 30,4 | 10,2 | 11,8 | 75,3 | 39,5 | 10,2 | 9,0 | 0 | 34,8 | 56,0 | 38,7 | 0 | ||||
| b | 19,0 | 10,1 | 12,7 | 63,3 | 18,3 | 11,7 | 10,1 | 42,0 | 19,5 | 53,6 | 37,8 | 0 | |||||
| c | 16,5 | 12,0 | 15,4 | 9,0 | 17,7 | 15,1 | 10,3 | 40,8 | 19,1 | 54,2 | 38,8 | 0 | 19,9 | 6,6 | 12,9 | 89,0 | |
| A. m. mellifica | a | 34,8 | 29,4 | 17,3 | 36,7 | 35,9 | 22,6 | 15,0 | 0 | 40,5 | 82,3 | 42,2 | 0 | ||||
| b | 20,4 | 19,5 | 14,6 | 22,0 | 19,5 | 29,6 | 17,2 | 14,1 | 20,1 | 72,6 | 38,6 | 0 | |||||
| c | 18,1 | 34,8 | 13,6 | 10,2 | 17,5 | 35,4 | 16,7 | 16,3 | 19,8 | 73,8 | 37,9 | 0 | 20,9 | 16,7 | 15,4 | 44,5 | |
| A. m. carnica | a | 32,4 | 19,1 | 16,8 | 13,3 | 37,2 | 16,2 | 12,3 | 0 | 37,2 | 81,8 | 43,5 | 0 | ||||
| b | 20,4 | 15,3 | 15,5 | 26,7 | 19,7 | 31,3 | 20,4 | 28,7 | 23,6 | 71,5 | 40,4 | 0 | |||||
| c | 17,2 | 29,5 | 19,6 | 68,7 | 18,9 | 29,0 | 16,7 | 24,7 | 19,3 | 64,8 | 41,7 | 0 | 19,3 | 10,5 | 14,4 | 30,0 |
- a — nakrop frisch eingelagertes Nektar b — miód niezasklepiony unreifer Honig c — miód zasklepiony — verdeckelter Honig
Potwierdzono bardzo wysoką aktywność badanych gligozydaz (inwertazy i α-amylazy) w miodzie gryczanym, zgodną z wynikami Rychlika i Fedorowskiej (1965), Zalewskiego (1963) i Pourtalliera (1972). Poziom tych enzymów w miodzie rzepakowym i akacjowym jest kilkakrotnie niższy i potwierdza wyniki Zalewskiego (1963), Dustmanna (1967 i Pourtalliera (1972). Zwraca uwagę stosunkowo wysoka aktywność glikozydaz w syropach pszczelich. W świetle tych wyników wydaje się być słusznym postulat niektórych badaczy, podniesienia dolnej granicy dla liczby diastazowej do 10 jednostek.
Analiza statystyczna wyników przedstawionych w tabeli 1 wykazała istnienie wysoce istotnych różnic w aktywności glikozydaz w zależności od rasy pszczół, w obrębie poszczególnych miodów odmianowych. Najbogatsze w te enzymy były miody od pszczół środkowo-europejskich, podczas gdy miody od pszczół kaukaskich są najuboższe w enzymy hydrolizujące cukrowce. Wyniki analiz syropów pszczelich w pełni to potwierdziły. Z pracy Bornusa i innych (1966) wynika, że siła rodzin i wielkość pożytku mają istotny wpływ na poziom sacharozy, a więc tym samym na zawartość glikozydaz w miodzie. Ponieważ do doświadczenia użyto rodzin o wyrównanej sile, a zmiany w liczebności w trakcie sezonu pociągały za sobą proporcjonalnie zmiany w ilości produkowanego miodu, istotnie niższą zawartość α-amylazy oraz inwertazy w miodach od pszczół kaukaskich należy uznać za cechę rasową.
Nie stwierdzono jednoznacznego wpływu rasy pszczół na przebieg dojrzewania miodów, natomiast zwraca uwagę odmienna kinetyka dojrzewania enzymatycznego poszczególnych miodów odmianowych. W miodzie rzepakowym aktywność α-amylazy w stadium niedojrzałym znacznie spada w porównaniu z nakropem, a następnie wyraźnie wzrasta w miodzie zasklepionym, podczas gdy poziom inwertazy przez cały czas nie ulega większym zmianom. Wartość liczby diastazowej oraz inwertazy w miodzie akacjowym wykazują ogólnie tendencje wzrostu w miarę dojrzewania miodu. Natomiast w miodzie gryczanym aktywność badanych glikozydaz w czasie dojrzewania ulega obniżeniu, które silniej uwidacznia się dla α-amylazy. Dokładne wyjaśnienie przyczyn takich różnic w przebiegu enzymatycznego dojrzewania różnych odmian jest trudne. Wiążą się one być może z różnicami w składzie nektaru omawianych gatunków roślin lub nawet w składzie pyłku, który zawsze dostaje się w pewnych ilościach do nektaru (w naszych badaniach, w trakcie pobierania nakropów, nie udało się uniknąć wpadania do niego obnóży pyłkowych, które następnie usuwano). Nie jest też wykluczone, że pszczoły reagują odmiennie na różne nektary, wydzielając enzymy mniej lub bardziej intensywnie.
W kilku pracach próbowano ustalić zależności pomiędzy niektórymi enzymami: Schepartz i Subers (1966b) dla 28 próbek miodów amerykańskich stwierdzili prostą i wysoką korelację między α-amylazą a katalazą. Zalewski (1963) nie otrzymał zależności między inwertazą
strona 175a α-amylazą, podczas gdy w pracy Dustmanna (1967) jest ona dosyć wyraźnie widoczna. Na podstawie wyników niniejszej pracy otrzymano bardzo ścisłą zależność między inwertazą a α-amylazą, wyrażoną liczbowo współczynnikiem korelacji +0,948 dla miodów odmianowych i +0,690 dla syropów pszczelich (ryc. 1 i 2).
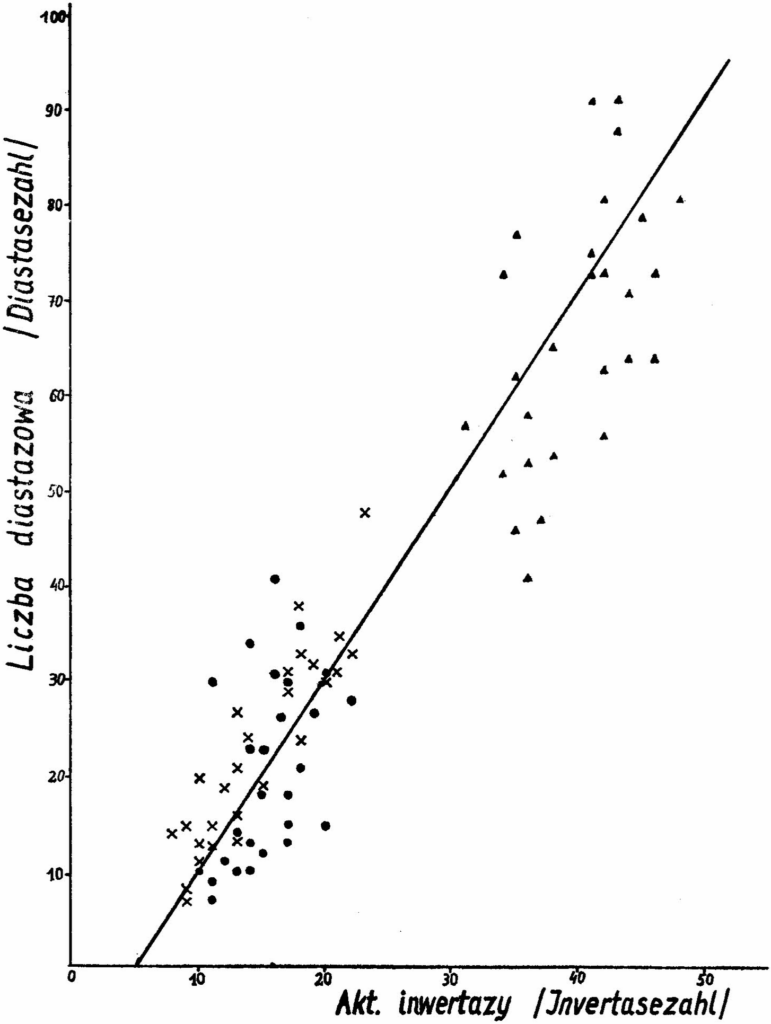
Ryc. 1. Zależność między α-amylazą a inwertazą w miodach: Verhältnis der Diastase- zu der Invertaseaktivität: ● — miód rzepakowy — Rapshonig × — miód akacjowy — Akazienhonig △ — miód gryczany — Buchweizenhonig
strona 176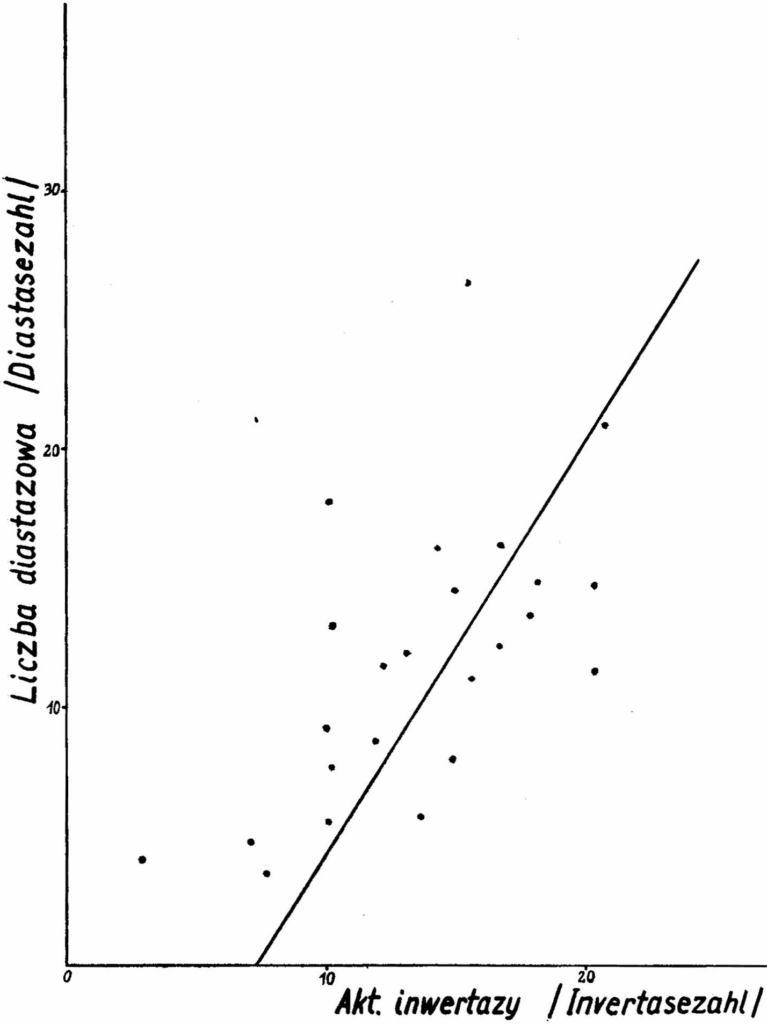
Ryc. 2. Zależność między α-amylazą a inwertazą w syropach pszczelich Vehältnis der Diastase- zu der Invertaseaktivität in Zuckerfütterungshonige
Stwierdzona w pracy aktywność katalazy zawiera się w granicach wyników otrzymanych przez Działoszyńskiego i Kuik (1963), przy czym najwyższe aktywności wykazały syropy pszczele, podczas gdy w miodzie gryczanym nie stwierdzono działania tego enzymu. Otrzymane wyniki są pozornie w sprzeczności z dotychczasowymi poglądami, które
strona 177podkreślają roślinne pochodzenie katalazy w miodzie. W celu wyjaśnienia tej sprawy można powołać się na prace Schepartza i Subersa (1966a, b) oraz Dustmanna (1967), które wyraźnie wskazują na antagonistyczny charakter inhibiny miodowej (identyfikowanej z glukozooksydazą) wobec katalazy. Wówczas staje się jasne, że w miodach o silnych właściwościach inhibinowych (do nich zaliczany jest miód gryczany), przy stosowanej w pracy metodzie oznaczania enzymu, aktywność katalazy jest prawdopodobnie silnie maskowana działalnością glukozooksydazy. Natomiast syropy pszczele, o znikomej aktywności inhibinowej, otrzymane wobec pożytku pyłkowego, posiadają stosunkowo wysoką aktywność katalazy. Nakropy rzepakowe oraz syropy pszczele, wykazujące najwyższe aktywności, były wizualnie silnie zaprószone pyłkiem, tak więc wyniki w zasadzie potwierdzają teorię o roślinnym pochodzeniu enzymu.
WNIOSKI
Otrzymane wyniki świadczą o istotnym wpływie ras pszczół na aktywność inwertazy i α-amylazy w miodach. Duże zróżnicowanie aktywności tych enzymów w miodach od poszczególnych ras czyni wątpliwym celowość obliczania średnich aktywności enzymatycznych dla miodów odmianowych, bez uwzględnienia ras pszczół.
Aktywność badanych enzymów w syropach pszczelich jest zbliżona do ich poziomu w miodzie rzepakowym i akacjowym i z tego względu metody enzymatyczne nie są pomocne w odróżnianiu miodów naturalnych od zafałszowanych sacharozą.
Bardzo wysoka aktywność glikozydaz w miodzie gryczanym, oraz obniżanie się zawartości tych enzymów w miarę dojrzewania miodu gryczanego, nie zostały dotychczas jednoznacznie uzasadnione. Wyjaśnienie tej sprawy wymaga powiązania badań enzymatycznych miodu ze specyficznym przebiegiem nektarowania, analizą nektaru gryki oraz z badaniami fizjologicznymi pszczół.
Stwierdzona korelacja między α-amylazą a inwertazą wydaje się być uzasadniona teoretycznie, gdyż oba enzymy należą do tej samej grupy glikozydaz (klasa hydrolaz).
Nieobecność katalazy w nakropie akacjowym oraz jej zmiany w trakcie dojrzewania miodu nie mogą być jednoznacznie wyjaśnione bez dokładnej analizy pyłkowej produktów dojrzewania miodu, oraz bez oznaczania kompleksu enzymów oksydoredukcyjnych — katalaza + glukozooksydaza.
strona 178LITERATURA
Balżekas I. (1974) — Mied ot pczeł raznych porod. Pczełowodstwo (5): 40.
Bornus L., Lecewicz W., Fabiański A. (1961) — Gromadzenie miodu przez pszczoły trzech ras w warunkach pożytkowych Puław. Pszczeln. Zeszt. Nauk. 5 (2): 85—94.
Bornus L., Kalinowski J., Zalewski W. (1966) — Produkcja i skład chemiczny miodu akacjowego w m. Cigacice. Pszczeln. Zesz. Nauk. 10: 113—122.
Dustmann J. (1967) — Messung von Wasserstoffperoxid und Enzymaktivität in mitteleuropäischen Honigen. Z. f. Bienenforsch. 2: 66—73.
Działoszyński L., Kuik K. (1963) — Aktywność kwaśnej fosfatazy, α-amylazy i katalazy w miodach z okolic Torunia. Pszczeln. Zesz. Nauk. 7 (1): 33—39.
Hadorn H., Zürcher H. (1966) — Eine verbesserte polarimetrische Methode zur Saccharasezahl-Bestimmung in Honig. Dt. Lebensm. Rundschau. 7: 195—201.
Hodowla pszczół. Praca zbiorowa. (1972). PWRiL, Warszawa.
Maurizio A. (1962) — From the raw material to the finished product: honey. Bee World 43 (1): 66—81.
PN „Miód pszczeli” 67/A-77625.
Pourtallier J. (1972) — Phisikalisch-chemische Bestimmung von Honig. Wisseschaftliches Bulletin der Apimondia. Apimondia Verlag.
Recommended european regional standard for honey (1970). Bee World 51 (2): 79—91.
Rychlik M., Fedorowska Z. (1965) — Polskie miody gryczane. Pszczeln. Zeszt. Nauk. 9 (1—2): 92—99.
Schepartz A., Subers M. (1966a) — Catalase in honey. J. apic. Res. 5 (1): 37—43.
Schepartz A., Subers M. (1966b) — Observations of honey diastase. J. apic. Res. 5 (1): 45—48.
Zalewski W. (1963) — Aktywność α-amylazy oraz inwertazy w miodach krajowych. Pszczeln. Zesz. Nauk. (7 (1): 40—48.
Zalewski W. (1965) — Fosfatazy w miodach. Pszczeln. Zesz. Nauk. 9 (1—2): 1—35.
Zander E., Koch H. Der Honig. Stuttgart. Eugeun Ulmer 1927.
КИНЕТИКА ФЕРМЕНТНОГО СОЗРЕВАНИЯ МЕДОВ ОТ ПЧЕЛ РАЗНЫХ ПОРОД
Е. Клемаревски
Резюме
В 1975 году исследовано ферментную активность альфа-амылазы, инвертазы и каталазы в однородных медах: рапсовым, акациевым и гречышным на трех уровнях их зрелостьи — в общесобранном нектаре, в незрелом и в зрелом, запечатанном меде. Образцы медов происходили от пчел трех пород: Apis mellifica mellifica, Apis mellifica caucasica и Apis mellifica carnica. Определено также ферментную активность в сахарных медах, полученных путем подкормки пчелиных семьей раствором сахара.
Статистически установлено существенные разницы ферментной активности в зависимости от однородности меда. Подверждено особенно высокую активность альфа-амылазы в гречишном меде в сравнении с рапсовым и акациевым.
Установлено корреляцию +0,948 между альфа-амылазой и инвертазой для всех исследованных медов. Активность каталазы невозможно обяснит без связи с другими окислительными ферментами, а также без пыльцевого анализа.
strona 179DIE ENZYMATISCHE HONIGREIFUNG VON VERSCHIEDENEN BIENENRASSEN
J. Klemarewski
Zusammenfassung
Im Jahre 1975 wurde Enzymaktivität der α-Amylase, Invertase und Katalase in einheimischen Honigen (Raps-, Akazien- und Buchweizenhonig) in drei Reifestufen — in frisch eingelagertem Nektar, im unreifen Honig und im reifen, verdeckelten Honig ermittelt. Die Honigproben stammten von drei Bienenrassen — Apis mellifica mellifica, Apis mellifica caucasica, Apis mellifica carnica. Es wurden auch Enzyme in Zuckerfütterungshonigen, die von denselben Bienenrassen herkommen, bestimmt.
Es wurden statistisch wesentliche Differenzen der Enzymaktivitäten in einheimischen Honigen festgestellt. Man hat besonders hohe Diastase- und Invertasezahl im Buchweizenhonig, im Vergleich mit Raps- und Akazienhonige, bestätigt.
Innerhalb der einheimischen Honige, wie auch in der Zuckerfütterungshonigen hat man die wesentlichen, von den Bienenrassen stammenden Differenzen in Enzymaktivität festgestellt. Die höchste Diastase- und Invertasezahl zeigten die Honige von heimischen Bienen (Apis m. mellifica) und die niedrigste stammte von kaukasischen Bienen (Apis m. caucasica).
Es wurde wesentlicher Korellationskoefizient +0,948 zwischen α-Amylase und Invertase, für alle untersuchten Problen nachgewiesen.
Die Katalaseaktivität kann man nicht eindeutlich, abgetrennt von anderen oxidirenden Enzymen und ohne Pollenanalyse im Honig, erklären.
Errata — błędy druku znalezione podczas digitalizacji
- s. 171: „liczych” → licznych
- s. 172: „łącznine” → łącznie
- s. 172: „Whiteà” → White’a
- s. 172: „spektofotometru” → spektrofotometru
- s. 172: „jedometryczną” → jodometryczną
- s. 173, tabl. 1: „einheimishen” → einheimischen
- s. 173, tabl. 1: „verschidenen” → verschiedenen
- s. 173, tabl. 1: „Repshonig” → Rapshonig
- s. 173, tabl. 1: „Inwertase” → Invertase
- s. 174: „gligozydaz” → glikozydaz
- s. 176, ryc. 2: „Vehältnis” → Verhältnis
- s. 178, literatura: „Phisikalisch” → Physikalisch
- s. 178, literatura: „Wisseschaftliches” → Wissenschaftliches
- s. 178, literatura: „Eugeun Ulmer” → Eugen Ulmer
- s. 178, streszczenie: „амылазы” → амилазы
- s. 178, streszczenie: „гречышным” → гречишным
- s. 178, streszczenie: „зрелостьи” → зрелости
- s. 178, streszczenie: „пчелиных семьей” → пчелиных семей
- s. 178, streszczenie: „Подверждено” → Подтверждено
- s. 178, streszczenie: „амылазой” → амилазой
- s. 178, streszczenie: „обяснит” → объяснить
- s. 179, streszczenie: „Korellationskoefizient” → Korrelationskoeffizient
- s. 179, streszczenie: „Problen” → Proben
- s. 179, streszczenie: „oxidirenden” → oxidierenden