

MORFOLOGICZNA OCENA POPULACJI ROJÓW W PASIEKACH ZARODOWYCH
tekst: Michał Gromisz
Pszczelnicze Zeszyty Naukowe, Rok XXV, 1981 — Michał Gromisz
strona 51PSZCZELNICZE ZESZYTY NAUKOWE ROK XXV 1981
Michał Gromisz
Oddział Pszczelnictwa ISK
WPROWADZENIE
Od wielu lat w Oddziale Pszczelnictwa ISK prowadzono ocenę morfologiczną pszczół z pasiek zarodowych. Chodziło głównie w tych badaniach o potwierdzenie przynależności rasowej pszczół selekcjonowanych populacji. Uzyskane wyniki analizy morfologicznej przekazywano do wykorzystania w praktyce hodowcom i organizatorom hodowli, a w pracach Instytutu służyły one między innymi jako materiał badawczo-poznawczy dla doskonalenia metody oceny. Zmierzano przede wszystkim do wyboru odpowiednich cech o dużej wartości taksonomicznej (Gromisz 1967b, Bornus, Gromisz, Nowakowski 1976), jak też brano pod uwagę stopień trudności i pracochłonności ich oznaczania (Gromisz 1971). Do charakteryzowania selekcjonowanych u nas pszczół wytypowano na zasadzie kompromisu trzy cechy, to jest szerokość IV tertigu odwłokowego, długość języczka i indeks kubitalny.
W ocenie przynależności rasowej nawiązano do wzorów modeli matematyczno-morfologicznych ras pszczół (Bornus i Gromisz 1969), wykorzystując wstępnie do ich skonstruowania parametry populacji pszczół krajowych, zbyt ogólne do oznaczania populacji selekcjonowanych (Gromisz i Bornus 1971, Gromisz 1972).
W tej pracy pragnę przedstawić ujednolicone modele populacji pszczół trzech ras u nas selekcjonowanych, oraz sposób oceny zgodności z nimi populacji pasiek zarodowych pod względem średniej wartości cechy i jej wyrównania.
MATERIAŁ I METODA
Opracowanie oparto na materiale jaki gromadzono corocznie od 1969 do 1977 roku w celu oceny morfologicznej pszczół z pasiek zarodowych. W każdej pasiece oceniano kolejne pokolenia matek (rojów), które określano jako odrębne populacje. W tej pracy uwzględniliśmy tylko te populacje,
strona 52które były reprezentowane w badaniach przynajmniej przez 10 rojów. W sumie zebrano w 15 pasiekach zarodowych, bądź kandydujących na zarodowe, próbki pszczół z 832 rojów, reprezentujących 43 populacje, należące do rasy środkowoeuropejskiej, kaukaskiej, lub kraińskiej.
Z każdej próbki pszczół na 30 robotnicach dokonano pomiarów szerokości IV tergitu odwłokowego, długości języczka i indeksu kubitalnego według metodyki przyjętej przez Oddział Pszczelnictwa ISK w tego rodzaju badaniach (Bornus, Demianowicz i Gromisz 1966).
Dla każdego roju obliczano średnią arytmetyczną wartość cechy (x), a następnie jej wartość znormalizowaną (z) według wzoru:
z = (x — x̄) / S
w którym x̄ symbolizuje średnią rzeczywistą wartość cechy populacji modelowej odpowiedniej rasy pszczół, a S jej standardowe odchylenie. Wzór ten przedstawia model populacji, a jego zmodyfikowana postać: y = /z/ służy do obliczania wskaźnika podobieństwa rojów do modelu. Populacje charakteryzowano, obliczając ich średnie wartości znormalizowane oraz standardowe odchylenia.
Jako wyjściowe i porównawcze dane do konstruowania morfologiczno-matematycznych modeli populacji trzech ras pszczół posłużyły charakterystyki populacji pszczół opisane w następujących pracach:
krajowa pszczoła środkowoeuropejska (Apis mellifica mellifica) — Bornus, Demianowicz i Gromisz (1966),
szara górska kaukaska (A. m. caucasica) — Gromisz (1978, 1979),
kraińska (A. m. carnica) — Gromisz (1967a).
Matematyczno-statystyczne opracowanie materiału liczbowego oparto na wzorach podanych w pracach Perkala (1953), Florka i innych (1951) oraz w podręcznikach Ruszczyca (1970) i Żuka (1979).
WYNIKI
ZAŁOŻENIA DO MODELI MATEMATYCZNO-MORFOLOGICZNYCH
W Polsce selekcjonujemy pszczoły trzech ras: środkowoeuropejskiej, kraińskiej i kaukaskiej. Przynależność rasowa tych pszczół jest sprawdzana na podstawie oznaczania trzech cech morfologicznych: szerokości IV tergitu odwłokowego, długości języczka i indeksu kubitalnego.
Średni poziom cechy. W tabeli 1 zestawiliśmy wartości cech morfologicznych, przyjęte do konstrukcji modelu populacji poszczególnych ras. Ten wybór uzasadniamy w sposób następujący:
- Dla pszczoły środkowoeuropejskiej przyjęto średni poziom cech
Tabela 1 Średni poziom wartości cech przyjęty do opracowania modelu
| Rasa pszczół | Szerokość IV tergitu w mm | Długość języczka w mm | Indeks kubitalny |
|---|---|---|---|
| Środkowoeuropejska | 2,356 | 6,115 | 61,4 |
| Kraińska | 2,302 | 6,458 | 51,2 |
| Kaukaska | 2,242 | 6,976 | 54,7 |
populacji rojów (136), które w opisie morfologicznym pszczoły krajowej zostały oznaczone przez Bornusa, Demianowicza i Gromisza (1966) jako typ I. Zbiór tych rojów cechował się dużym wyrównaniem pod względem 8 cech morfologicznych i najlepiej odpowiadał podobieństwem pszczole środkowoeuropejskiej (Apis mellifica mellifica). W tym opisie pszczoły krajowej nie oznaczano jednak pojedynczego tergitu, ale sumę III i IV. Konstrukcję modelu pod względem IV tergitu oparto na badaniach morfologicznych pszczół lini Mazurka, Pomorzanka i Sudecka, przeprowadzonych w 1977 roku.
- Ustalenie poziomu cech dla pszczoły kraińskiej (Apis mellifica carnica) nastręczało pewnych trudności. W obrębie naturalnego zasięgu tej rasy zachodzą nieraz znaczne różnice pomiędzy ekotypami, nie są one też na ogół dostatecznie poznane pod względem morfologicznym i nie wiele wiemy na temat ich powiązania rodowodowego z naszą krainką. W tej sytuacji do modelu przyjeliśmy średnią wartość cech odpowiadającą linii Beskidka, jedynej w zasadzie selekcjonowanej u nas od wielu lat krainki (według oceny morfologicznej z 1977 roku).
- Wskaźniki dla pszczół kaukaskich (Apis mellifica caucasica) otrzymano na podstawie analiz morfologicznych, przeprowadzonych na materiale importowanym w ZSRR w latach 1965—1975. Od niego to zostały reprodukowane u nas pszczoły kaukaskie.
Standardowe odchylenie. W tabeli 2 przytaczamy standardowe odchylenia dla kilku populacji pszczół. Z uwagi na to, że nie mamy tych populacji scharakteryzowanych pod względem szerokości IV tergitu, podajemy standardowe odchylenie dla sumy szerokości III i IV. Między
Tabela 2 Standardowe odchylenia dla niektórych populacji pszczół różnych ras
| Populacja pszczół (pochodzenie) | Liczba rojów | Standardowe odchylenie: szerokość III i IV tergitu w mm | Standardowe odchylenie: długość języczka w mm | Standardowe odchylenie: indeks kubitalny |
|---|---|---|---|---|
| Północna Polska | 47 | 0,0644 | 0,0421 | 4,241 |
| Węgry | 54 | 0,0583 | 0,0785 | 2,707 |
| Bułgaria | 35 | 0,0902 | 0,1049 | 3,209 |
| Kaukaz | 113 | 0,0706 | 0,0980 | 3,215 |
populacjami, należącymi do różnych ras, zachodzą różnice w wartości standardowego odchylenia, odpowiadające poszczególnym cechom. Nie uwidaczniało się tu jednak jakieś powiązanie z rasami. Taki stan rzeczy potwierdzał się wielokrotnie przy okazji naszych innych badań, podobnych tematycznie. Jakie zatem przyjąć standardowe odchylenie do konstrukcji naszego modelu? Najprościej jest przyjąć standardowe odchylenie bliskie przeciętnemu z wielu populacji, jako wspólne dla wszystkich ras. Tym sposobem zyskuje się wiele w przydatności modelów do celów praktycznych. Standardowe odchylenie w modelu jest więc pewną umowną wartością, opartą na danych doświadczalnych. Dla naszego modelu przyjęliśmy standardowe odchylenie poszczególnych cech, odpowiadające populacji pszczół kaukaskich, jako że one pod tym względem zajmują pośrednie miejsce w stosunku do innych populacji.
KONSTRUOWANIE MODELI
Konstruowanie modeli polega na ułożeniu odpowiednich równań dla poszczególnych cech w obrębie każdej rasy pszczół. Przeprowadzimy obliczenia dla modelu pszczoły środkowoeuropejskiej pod względem szerokości IV tergitu:
z = (x — x̄) / S = (x — 2,356) / 0,0412 = 24,2718 x — 57,1845
W równaniu tym x oznacza średnią wartość arytmetyczną cechy ocenianego roju, natomiast z — wartość znormalizowaną tej cechy, to znaczy miejsce tego roju w modelowej populacji. W podobny sposób skonstruowano modele poszczególnych ras pszczół dla każdej z trzech cech morfologicznych (tab. 3).
Tabela 3 Modele matematyczno-morfologiczne populacji pszczół dla selekcjonowanych ras w Polsce z — znormalizowana wartość cechy x — średnia wartość rzeczywista cechy dowolnego roju
| Cecha | Rasa pszczół: środkowoeuropejska | Rasa pszczół: kraińska | Rasa pszczół: kaukaska |
|---|---|---|---|
| Szerokość IV tergitu | z = 24,2718x—57,1845 | z = 24,2718x—55,8252 | z = 24,2718x—54,4175 |
| Długość języczka | z = 10,2041x—62,3980 | z = 10,2041x—65,9184 | z = 10,2041x—71,3878 |
| Indeks kubitalny | z = 0,311x—19,082 | z = 0,311x—15,925 | z = 0,311x—16,983 |
Bezwzględną wartość z, po opuszczeniu znaku „+” lub „—”, przyjęliśmy za wskaźnik podobieństwa ocenianego roju do populacji modelowej. Oznaczamy go literą y.
strona 55OPIS FUNKCJONOWANIA MODELU
Model matematyczny opracowano na podstawie eksperymentalnego poznania parametrów statystycznych zbioru rojów, jako próby pewnej większej populacji, w naszym przypadku rasy czy jej ekotypu. Opiera się on na właściwościach rozkładu normalnego (rys. 1).
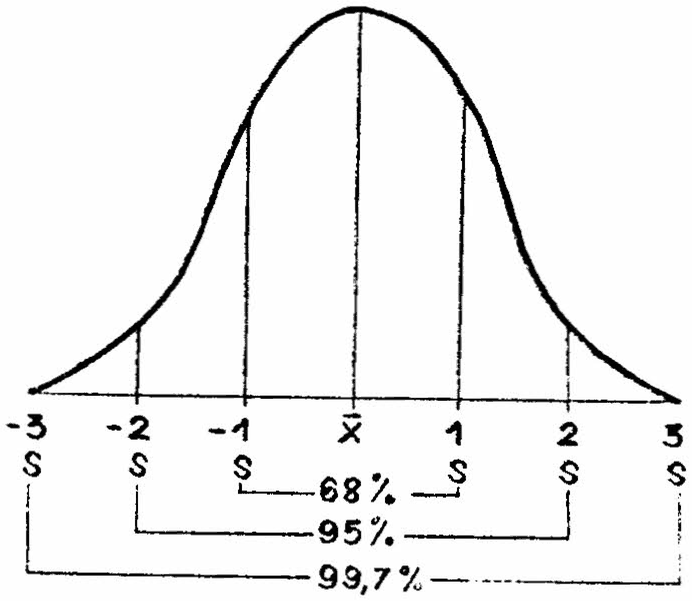
Posługując się równaniami z tabeli 3 można określać miejsce dowolnego roju w modelowej populacji poszczególnych trzech ras pszczół. W miarę jak wskaźniki z (lub y) rojów oddalają się od zera, zmniejsza się prawdopodobieństwo przynależności tych rojów do danej rasy. Z teoretycznych obliczeń wynika, że na przykład w przedziale od z = +2 do z = +3 znajdujemy tylko 2,35% rojów modelowej populacji. Ale bez obawy jeszcze znacznego ryzyka popełnienia błędu, nie możemy wykluczyć przynależności tych rojów do modelu tej rasy, chociaż możemy żywić co do tego uzasadnione wątpliwości. Zakresy zmienności niektórych cech dla poszczególnych ras mogą bowiem w pewnej części się pokrywać, jak to widać na rycinie 2. Rój, który znalazł miejsce na tej wspólnej dla obu ras strefie modelu, spełnia warunki przynależności do każdej z nich. Tego rodzaju wątpliwości można się przeważnie pozbyć, stosując ocenę kompleksową na podstawie zespołu cech i na poziomie nie tylko pojedynczego, oderwanego roju, ale grupy rojów, którą on reprezentuje. Populację rojów możemy analizować pod względem poziomu cech i ich zmienności.
POZIOM CECHY POPULACJI REJONÓW
Populację rojów w stosunku do modelu rasy możemy charakteryzować dwojako: obliczać średnie wartości znormalizowane (z) jej cech lub oznaczać średnie wskaźniki podobieństwa (ȳ). W obu przypadkach wychodzimy z wzorów zestawionych w tabeli 3. Dalsze obliczenia mają przebieg następujący:
strona 56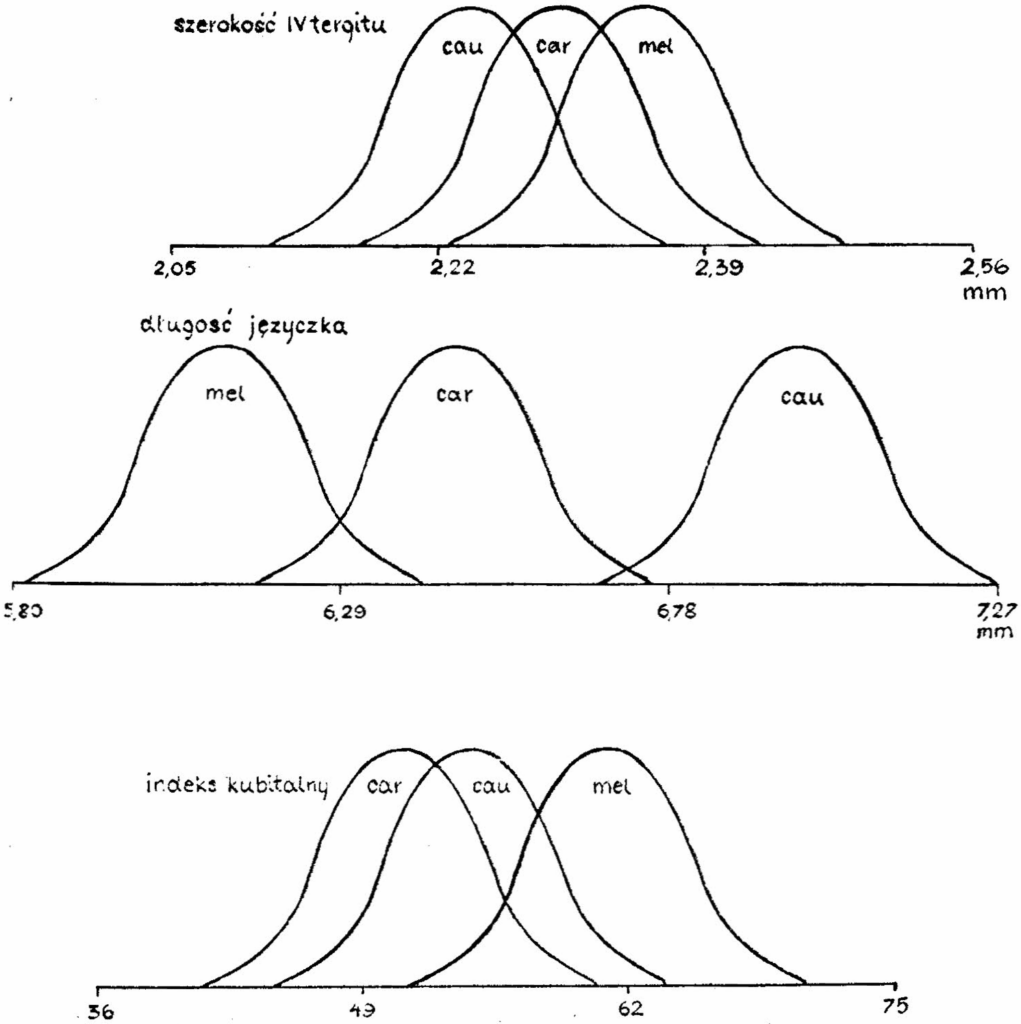
średnia wartość znormalizowana danej cechy
z̄ = Σ z / n
średni wskaźnik podobieństwa tej cechy
ȳ = Σ|z| / n
n — symbolizuje liczbę rojów.
Różnicę, jaka wynika ze stosowania tych wzorów, spróbujemy zilustrować
strona 57przykładem, oceniając 2 roje (ZZD Siejnik). Długość języczka jednego z nich wynosiła 6,007 mm, drugiego zaś — 6,221 mm. Średnia wartość znormalizowana będzie się tu równała z = —0,01, natomiast średni wskaźnik podobieństwa wyniesie y = 1,09.
ZMIENNOŚĆ POPULACJI ROJÓW
Zabiegi hodowlane zamierzone lub niekontrolowane mogą w populacji selekcjonowanej prowadzić do wzrostu stopnia jej wyrównania, bądź też potęgować zróżnicowanie. Na pewnym etapie pracy selekcyjnej, kiedy zabiegi hodowlane przeważnie ograniczamy do izolowanej populacji i stosowania doboru jednorodnego, należy oczekiwać raczej zmniejszenia zmienności w ogóle, w tym także pod względem cech morfologicznych. Takie postępowanie hodowcy prowadzi bowiem do wzrostu stopnia pokrewieństwa między matkami pszczelimi, a to sprzyja zmniejszeniu heterozygotyczności populacji selekcjonowanej. Uszczuplają się wtedy jej zasoby zmienności genetycznej, a utrzymanie tego kierunku w selekcji zagraża także spadkiem witalności rodzin pszczelich. Wszelki dopływ substancji genetycznej z zewnątrz, zarówno korzystny lub niekorzystny z punktu widzenia hodowcy, poprawia tę sytuację, ale wzrasta wtedy i zmienność w populacji selekcjonowanej. Utrzymaniu zmienności na wysokim poziomie sprzyja także stosowanie doboru niejednorodnego, ale przy selekcji kierunkowej na geny ilościowe tej metody się nie zaleca. Właściwa zatem ocena rozmiarów zmienności może się przydać w rozwijaniu prac selekcyjnych, przede wszystkim do charakterystyki jakości doboru rodziców do kojarzenia. Jako odniesienie w tej ocenie przyjmujemy standardowe odchylenie populacji modelowej. Zmienność populacji selekcjonowanej powinna się w zasadzie mieścić w ramach zmienności rasowej.
Obliczanie standardowego odchylenia dla zbioru rojów selekcjonowanych przeprowadzamy na cechach znormalizowanych. Jeżeli wynik (standardowe odchylenie) równa się jedności, uważamy, że zmienność populacji selekcjonowanej i modelowej jest jednakowej wielkości, bo standardowe odchylenie dla rasy wynosi również jeden. W przypadku wystąpienia nierówności możemy mówić o wyrównaniu większym (S<1) lub mniejszym (S>1) niż przewiduje model, to znaczy takim wyrównaniu, jakim charakteryzuje się rasa pszczół. Ten sposób charakterystyki pozwala także na bezpośrednią ocenę porównawczą poszczególnych cech pod względem wyrównania. Na przykład populacja rojów (43 roje, 1978) w WOPR Barzkowice była pod względem szerokości IV tergitu prawie dwukrotnie lepiej wyrównana niż w długości języczka, i przeszło 3 razy niż w indeksie kubitalnym, bo znormalizowane odchylenie tych cech wynosiło odpowiednio: 0,2764, 0,5922 i 0,8118. W sumie należy się jednak wysoka nota dla tej populacji za jej wyrównanie.
strona 58POJEMNOŚĆ MODELU
Hodowcę interesuje ocena zgodności populacji selekcjonowanej z populacją modelową. W tym celu możemy dokonać statystycznej analizy istotności różnic pomiędzy średnimi poziomami cech tych dwóch populacji, z których pierwszą scharakteryzowano na podstawie badania przeszło 100 rojów, drugą natomiast reprezentuje przeważnie około 20 rojów. W naszej modelowej ocenie obierzemy nieco inną, pośrednią drogę w charakteryzowaniu wielkości różnicy, a raczej odległości pomiędzy tymi średnimi. Wykorzystamy mianowicie odpowiadające im przedziały ufności, jako kryterium podziału obszaru modelu na strefy. Wielkość przedziałów ufności jest następująca (poziom istotności 0,01):
dla populacji modelowej —0,26<x<+0,26,
dla populacji selekcjonowanej —0,64<x<+ 0,64.
Określenie zaś granic stref w modelu proponujemy następujące, rozpoczynając od środka modelu symetrycznie po jego obu stronach:
strefa I — odległość 0,26 od zerowego punktu,
strefa II — odległość 0,64 od granicy strefy I,
strefa III — poza granicami strefy II.
Otrzymamy zatem następujące przedziały, jeżeli wyrazimy je znormalizowanymi wartościami:
strefa I od —0,26 do +0,26,
strefa II od —0,90 do —0,26 oraz od +0,26 do +0,90,
strefa III od <—0,90 oraz +0,90<.
Z oddalaniem się miejsca jakiejś ocenianej populacji od środka modelu maleje podobieństwo zgodności jej z populacją modelową, aż do osiągnięcia pewności, że się one istotnie różnią. W tym obliczeniu odległości 0,90 przyjmujemy za taką różnicę graniczną. Wyznacza ona w modelu przedział od —0,90 do +0,90, to znaczy obejmuje zasięg strefy I i II. Średni poziom cechy wielu z ocenianych populacji znajdzie się zapewne w tym przedziale, ale w niektórych przypadkach granice jego zostaną przekroczone na plus czy na minus. Jest to możliwe, gdyż po pierwsze populacja selekcjonowana raczej nie jest reprezentatywną próbą rasy, może na przykład stanowić geograficznie jej ekotyp, zajmujący peryferyjne miejsce w modelu, a po wtóre skutki izolowania i nacisku selekcyjnego prowadzą do ilościowej zmiany struktury genetycznej. Ale mogą być i inne tego przyczyny: udział w doborze do kojarzenia osobników innej rasy lub mieszańców, a więc zjawisko niepożądane. Pewnych informacji na ten temat dostarcza nam analiza wzajemnych relacji średniego poziomu cech i ich zmienność. Wychodzimy bowiem z założenia, że gdy maleje wartość standardowego odchylenia, czyli zwiększa się wyrównanie, wtedy możemy być bardziej tolerancyjni w stosunku do bezwzględnego poziomu cechy. Chodzi o to, aby teoretyczny rozkład cech rojów populacji ocenianej mieścił się raczej w modelu, niezależnie od tego, gdzie znajdzie w nim miejsce średni poziom cechy. Przyjmujemy tu jednak pewną poprawkę: odchylenie na plus czy minus liczymy nie
strona 59od zera, to znaczy od średniej wartości cechy populacji modelowej, ale od krańców strefy II, gdyż zamyka ona średnie o nieudowodnionej niezgodności z modelem. Rozpiętość naszego modelu wyniesie wtedy od —3,9 do +3,9.
Graniczne wartości przedziału —0,90 i +0,90 oraz standardowe odchylenie równe 1,0 są punktem wyjścia w tej ocenie. Taki układ parametrów przyjmujemy za zadawalający. W innych bardziej peryferyjnych miejscach modelu wymagamy, aby standardowe ochylenie odpowiednio się zmniejszało, jako warunek zgodności populacji selekcjonowanej z modelem rasowym. Uważamy bowiem, że im bardziej oddala się od środka modelu średni poziom cechy, tym grupa rojów powinna prezentować większe wyrównanie, aż do S = 0 w odległości 3,9 od środka modelu. W przeciwnym przypadku nasuwają się przypuszczenia, że źródło zmienności wywodzi się z domieszki pszczół innego typu morfologicznego. W ten sposób rozumując można stawiać mniejsze wymagania co do wysokości standardowego odchylenia w przedziale wartości od —0,90 do +0,90, jak to uwidoczniono na rysunku 3. Dopuszczalną wartość standardowego odchylenia na granicy strefy I i II obliczyliśmy z prostej kalkulacji:
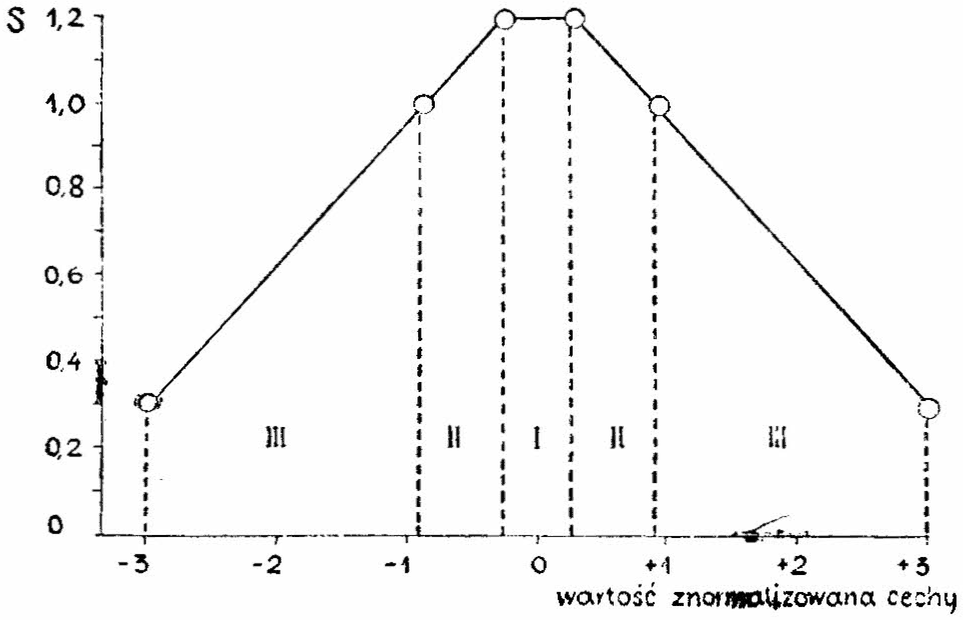
- rozpiętość modelu wynosi 3 standardowe odchylenia, na plus i na minus,
- po uwzględnieniu różnicy granicznej całkowita rozpiętość modelu wyniesie 3+0,90 = 3,9,
- od wartości 3,9 odejmujemy 0,26, a więc odcinek jaki zajmuje strefa I, gdyż wyznacza ona granice wartości rzeczywistej średniej dla rasy, a więc 3,9—0,26 = 3,64,
- wartość 3,64 odpowiada 3 poszukiwanym standardowym odchyleniom, zatem jedno standardowe odchylenie wyniesie 1,21.
W tabeli 4 zestawiliśmy proponowane relacje wartości granicznych dla poziomu cechy i standardowego odchylenia znormalizowanego do
strona 60kompleksowej oceny zgodności populacji selekcjonowanej z modelem. Uważamy, że potwierdzenie zgodności jest dostatecznie wystarczające, gdy te parametry nie zostają przekraczane. Nie wszystkie jednak populacje selekcjonowane zawsze spełniają te warunki. Ma to miejsce przede wszystkim wtedy, gdy materiału do selekcji szukamy w populacjach pszczół miejscowych, częściowo już zmieszańcowanych, albo wprowadzamy „obce” pszczoły do „odświeżenia krwi” lub też stosujemy krzyżowanie twórcze, czy wreszcie prowadzimy długotrwałą selekcję licznego pogłowia w określonym kierunku. We wszystkich tych przypadkach te populacje pszczół mogą wykraczać poza podane tutaj modele rasowe. Oczywiście taki wynik oceny morfologicznej nie jest równoznaczny z dyskwalifikacją produktu pracy hodowlanej, ale może wskazywać na potrzebę opracowania odrębnego modelu, odpowiadającego już innej grupie rojów.
PODOBIEŃSTWO NA PODSTAWIE ZESPOŁU CECH
Dotychczas próbowaliśmy charakteryzować roje lub ich populacje pod względem każdej cechy oddzielnie. Ogólną ocenę podobieństwa pojedynczego roju do modelu rasowego można dokonać na podstawie zespołu cech, w naszym przypadku trzech: szerokości IV tergitu, długości języczka i indeksu kubitalnego. Sumujemy mianowicie wartości wskaźnika podobieństwa (y) każdej z tych cech i wynik dzielimy przez ich liczbę (n = 3). Otrzymujemy ogólny wskaźnik podobieństwa (Y) roju do modelu.
PRZYDATNOŚĆ MODELI
Z większości pasiek zarodowych bądź kandydujących na zarodowe otrzymaliśmy w latach 1969—1978 kilkakrotnie partie próbek pszczół do oceny morfologicznej, nie mniejsze niż z 10 rojów. Takich ocenianych rojów zebrało się w sumie 832. Dobierając odpowiednie wzory z tabeli 3 obliczyliśmy dla każdego z nich wartości średnie znormalizowane (z) cech i wskaźniki podobieństwa (y). Układały się one w następujących granicach:
| z | y | |
|---|---|---|
| szerokość IV tergitu (t) | od —2,86 do +2,16 | 0 — 2,86 |
| długość języczka (j) | od —6,22 do +7,46 | 0 — 7,46 |
| indeks kubitalny (i) | od —6,86 do +4,48 | 0 — 6,86 |
Trafiały się więc roje, które pod względem długości języczka i indeksu kubitalnego wykraczały znacznie poza modelowe populacje, bo graniczna wartość wskaźnika podobieństwa y = 3 została przekroczona. W szczegółowej analizie przeznaczonej dla hodowców wskazujemy, które to są roje, tutaj ograniczymy się tylko do ogólnego podsumowania jaki odsetek ich na 832 ocenianych znalazł się poza modelami:
strona 61długość języczka — 6,49%
indeks kubitalny — 3,73%
długość języczka i indeks kubitalny — 1,20%
Na dalszym etapie oceny zajmujemy się nie pojedynczymi rojami, ale populacją. Badane przez nas 832 roje reprezentowały 43 populacje, z metryką różnych hodowców i generacji matek pszczelich. Oznaczyliśmy miejsca tych populacji w modelu rasowym, obliczając dla nich średnie wartości znormalizowane każdej z trzech cech (t, j oraz i). W liczbach przedstawia się to następująco:
| t | j | i | |
|---|---|---|---|
| ogólna liczba populacji | 43 | 43 | 43 |
| w tym: I strefa modelu | 14 | 14 | 5 |
| II strefa modelu | 24 | 14 | 18 |
| III strefa modelu | 5 | 11 | 19 |
| poza modelem | 0 | 4 | 1 |
W zasadzie lokata w I i II strefie modelu wystarcza do uznania zgodności rasowej, o ile jednak uzyska to potwierdzenie odpowiednim wyrównaniem populacji. W stosunku do populacji ze strefy III modelu, nasze wymagania pod względem wyrównania wzrastają bardzo (rys. 3, tab. 4).
Tabela 4 Graniczne wartości znormalizowane poziomu cechy i standardowego odchylenia jako warunek zgodności ocenianej populacji (dla n = 20 rojów) z populacją modelową (objaśnienia w tekście; dla ułatwienia podano obok standardowego odchylenia wariancję cechy)
| Średni poziom cechy (z) ze znakiem „+” lub „—” | Standardowe odchylenie (S) | Wariancja (S²) |
|---|---|---|
| 0,9 | 1,0 | 1,0 |
| 1,0 | 0,9667 | 0,9954 |
| 1,1 | 0,9334 | 0,8712 |
| 1,2 | 0,9001 | 0,8102 |
| 1,3 | 0,8668 | 0,7513 |
| 1,4 | 0,8335 | 0,6947 |
| 1,5 | 0,8002 | 0,6403 |
| 1,6 | 0,7669 | 0,5881 |
| 1,7 | 0,7336 | 0,5382 |
| 1,8 | 0,7003 | 0,4904 |
| 1,9 | 0,6670 | 0,4449 |
| 2,0 | 0,6337 | 0,4016 |
| 2,1 | 0,6004 | 0,3605 |
| 2,2 | 0,5671 | 0,3216 |
| 2,3 | 0,5338 | 0,2849 |
| 2,4 | 0,5005 | 0,2505 |
| 2,5 | 0,4672 | 0,2183 |
| 2,6 | 0,4339 | 0,1883 |
| 2,7 | 0,4006 | 0,1605 |
| 2,8 | 0,3673 | 0,1349 |
| 2,9 | 0,3340 | 0,1116 |
| 3,0 | 0,3007 | 0,0904 |
Zmienność większości populacji nie przekraczała rozmiarów zmienności populacji modelowej (S = 1,0). Tylko w indeksie kubitalnym punkt ciężkości przesunął się nieco powyżej S = 1,0, natomiast dla szerokości IV tergitu najliczniej trafiało się standardowe odchylenie znormalizowane w przedziale od 0,4 do 0,8. Pod względem tej cechy populacje wykazywały na ogół duże wyrównanie, tylko jedna z nich wykraczała poza S = 1,0. Standardowe odchylenie bliskie jedności możemy uznać jako jeszcze dostateczne w naszej ocenie. Stopień wyrównania populacji ocenianej odpowiada wtedy wyrównaniu populacji modelowej. Możemy zatem ustalić następującą skalę porównawczą:
| S | wyrównanie |
|---|---|
| <0,5 | bardzo duże |
| 0,5—0,8 | duże |
| 0,9—1,2 | dostateczne |
| 1,2< | mniej niż dostateczne |
Ta opisowa kwalifikacja odpowiada podziałowi jaki przyjęliśmy w tabeli 4 i na rysunku 3.
Wśród 43 ocenianych przez nas populacji selekcjonowanych 40 znalazło miejsce w I i II strefie modelu, przynajmniej pod względem jednej cechy. W 30 przypadkach wyrównanie tych populacji było zadawalające, to znaczy co najmniej dostateczne. Pozostałe natomiast 10 populacji wykazywały się wyrównaniem mniej niż dostatecznym (S>1,2) i otrzymały ocenę negatywną pod względem którejś z tych cech, zgodnie z danymi w tabeli. Jakie stąd wypływają wnioski dla selekcjonujących te populacje? Przede wszystkim można dopatrywać się skutków doboru niejednorodnego pod względem rasowym czy typu morfologicznego. W tym przypadku jest to sygnał ostrzegawczy, że w pracy selekcyjnej dzieje się coś nie tak, mimo braku jakichś innych widocznych podstaw do niepokoju, bo cechy uwzględniane w bonitacji rojów na ogół w niewystarczający sposób potwierdzają czystość rasową pszczół. Rodziny pszczele czystorasowe jak i ich przypadkowe mieszańce mogą na przykład nie różnić się zbytnio gromadzeniem miodu, rozwojem, rojnością, czy łagodnością, ale występują u nich różnice morfologiczne, co znajduje odzwierciedlenie w dużej wartości standardowego odchylenia. W zaleceniach dla hodowcy można wtedy kłaść nacisk na dążenie do wyrównania populacji przez odpowiednią selekcję oraz dobór rodziców i ścisłą kontrolę ich kojarzenia.
W strefie III modelu i poza modelem znalazło się w sumie 27 populacji na 43 ocenianych. Z tych 27 dziewięć populacji odpowiadało wymaganiom, jakie im stawiały nasze modele pod względem poziomu cech i ich zmienności. Pozostało zatem 18 populacji z negatywną oceną, w tym w stosunku do pojedynczej cechy 15 populacji i do dwóch cech łącznie — 3 populacje. Wszystkie one należały do 11 hodowców, reprezentując różne pokolenia matek pszczelich. Jakie jest praktyczne znaczenie tej oceny? Objaśni to nam najlepiej los tych populacji pszczół, kwestionowanych pod względem morfologicznym na pewnym etapie selekcji.
strona 63U 6 hodowców obecnie są one zgodne z populacją modelową, trzech innych hodowców zaprzestało selekcji tego materiału głównie ze względu na jego zmieszańcowanie, u jednego natomiast odrębność morfologiczna selekcjonowanej populacji utrzymuje się nadal, wreszcie co do ostatniego, jedenastego hodowcy, nie mamy danych. Na decyzję tych hodowców nie miała zasadniczego wpływu ocena morfologiczna materiału selekcjonowanego. Brali oni pod uwagę przede wszystkim wartość użytkową, która potwierdzała się lub nie potwierdzała w sensie hodowlanym. Celowość naszego typu analizy morfologicznej jest więc oczywista, może ona bowiem pośrednio sygnalizować na długo wcześniej zjawiska, których skutki wystąpią znacznie później w toku selekcji.
W związku z populacją, która uporczywie utrzymuje się poza naszym modelem rasowym, sprawę można uogólnić. Pewne populacje pszczół, jako ekotypy czy jako wynik twórczej pracy hodowcy, nie mieszczą się w jakimś konkretnym modelu i nie można od nich tego wymagać, gdyż reprezentują zupełnie inny morfologicznie typ pszczół, niż te, które posłużyły do opracowania parametrów modelowej populacji. Można dla nich opracować ich własny model, pod warunkiem jednak, że odrębność zachowa się z pokolenia na pokolenie, a populacja będzie dość liczna i dostatecznie wyrównana. Przykładów takiej odrębności można doszukiwać się w praktyce hodowlanej, wskazując chociażby na szwajcarską Nigrę, która nie odpowiadała parametrom rasy środkowoeuropejskiej, opracowanym przez Goetzego na podsatwie badania pszczół na północy Niemiec (Hunkeler 1961).
W naszej ocenie zgodności populacji selekcjonowanych z modelem dużą wagę przypisujemy wyrównaniu cech. Największe było ono zawsze w szerokości IV tergitu odwłokowego, najmniejsze zaś w wartości indeksu kubitalnego. W zakresie tej drugiej cechy najwięcej populacji otrzymało negatywną ocenę, i to głównie nie z przyczyny średniej wartości znormalizowanej cechy, ale z jej dużej zmienności. Można się zastanawiać, czy w naszym modelu nie za duże wymagania stawiamy w stosunku do indeksu kubitalnego, tak jak może za małe dla szerokości IV tergitu. Albo też pomyśleć nad innym doborem cech, odpowiedniejszych do charakteryzowania morfologicznego populacji. Chodzi o cechy dobrze różnicujące rasy, ale o małej zmienności w ich obrębie.
WNIOSKI
Ocena morfologiczna pszczół z rojów selekcjonowanych pozwala w bezpośredni sposób na charakterystykę stopnia jednorodności doboru rodziców do kojarzenia.
Wprowadzenie w ocenie morfologicznej pszczół znormalizowanych wartości cech umożliwia w prosty sposób wzajemne porównywanie stopnia wyrównania populacji pod względem poszczególnych cech.
Model morfologiczno-matematyczny populacji pszczół może służyć do
strona 64charakterystyki całych populacji rojów pod względem poziomu cechy i jej zmienności. W tym kierunku należy rozwijać ocenę selekcjonowanych populacji pszczół, nie poprzestając na ocenie poszczególnych pojedynczych rojów.
Rasowe modele morfologiczno-matematyczne mogą okazać się za ogólne w stosunku do selekcjonowanych populacji w obrębie rasy; dla tych populacji należałoby chyba opracować odrębne modele.
Ocenę morfologiczną pszczół różnych ras, zwłaszcza występujących w tym samym regionie, można doskonalić przez dobór odpowiednich cech do konstrukcji modelu, dobrze różnicujących rasy.
LITERATURA
Bornus L., Demianowicz A., Gromisz M. (1966) — Morfometryczne badania krajowej pszczoły miodnej Apis mellifica L. Pszczeln. Zesz. Nauk. 10(1—4) 1—46
Bornus L. i Gromisz M. (1969) — Matematyczne modele populacji pszczół różnych ras. Pszczeln. Zesz. Nauk. 13(1—3): 73—83
Bornus L., Gromisz M., Nowakowski J. (1976) — Use of some morphological features in taxonomy of honey bee. Międzynarodowe sympozjum genetyki selekcji i reprodukcji pszczół. Moskwa, 22—28 sierpień 1976
Florek K., Łukaszewicz J., Perkal J., Steinhaus H., Zubrzycki S. — (1951) — Taksonomia Wrocławska. Przegląd Antropologiczny, 17: 193—211
Gromisz M. (1967a) — Porównanie pszczoły Podkarpacia z pszczołami północnej Polski (Apis mellifica mellifica L.) i dorzecza Dunaju (Apis mellifica carnica Pollm.). Pszczeln. Zesz. Nauk. 11(1—3): 1—35
Gromisz M. (1967b) — Przydatność niektórych cech morfologicznych w systematyce wewnątrz gatunku Apis mellifica L. Pszczeln. Zesz. Nauk. 11(1—3): 37—50
Gromisz M. (1971) — Tergity odwłokowe jako wskaźnik wielkości ciała pszczoły. Pszczeln. Zesz. Nauk. 15(1—2): 15—27
Gromisz M. (1972) — Ocena morfologiczna pszczół z pasiek zarodowych. Pszczeln. Zesz. Nauk. 16: 1—22
Gromisz M. (1978) — Charakterystyka morfologiczna pszczół kaukaskich importowanych w latach 1965—1975. Pszczeln. Zesz. Nauk. 22: 85—93
Gromisz M. (1979) — Zmienność szerokości IV tergitu odwłokowego w populacji pszczół rasy kaukaskiej. Pszczeln. Zesz. Nauk. 23: 67—73
Gromisz M. i Bornus L. (1971) — Morfologiczno-matematyczne modele populacji pszczoły krajowej. Pszczeln. Zesz. Nauk. 15(1—2): 1—14
Hunkeler M. (1961) — Rassen und Rassenmerkmale. Schweizerische Bienenztg. 84(2): 58—62
Perkal J. (1953) — Taksonomia wrocławska. Przegląd Antropologiczny 19: 82—105
Ruszczyc Z. (1970) — Metodyka doświadczeń zootechnicznych. Warszawa, PWRiL
Żuk B. (1979) — Metody genetyki populacji w hodowli zwierząt. Warszawa, PWRiL
strona 65МОРФОЛОГИЧЕСКАЯ ОЦЕНКА ПОПУЛЯЦИИ ПЧЕЛНЫХ СЕМЕЙ В ПЛЕМЕННЫХ ПАСЕКАХ
М. Громиш
Резюме
Для потребностей племенной селекции разработано математически-морфологические модели, на основании которых можно проверить породистую принадлежность популяции пчел, подвергающихся селекции. В результате исследований многих популяций, конструкция модели основана на следующих параметрах:
- среднее (x̄) для популяции (t — ширина IV тергита, j — длина язычка в мм, i — кяубитальный указатель):
| t | j | i | |
|---|---|---|---|
| Apis mellifica mellifica | 2,356 | 6,115 | 61,4 |
| Apis mellifica carnica | 2,302 | 6,458 | 51,2 |
| Apis mellifica caucasica | 2,242 | 6,976 | 54,7 |
- стандартное отклонение (S) однаковое для всех пород:
для t — 0,0412 мм
для j — 0,0980 мм
для i — 3,215
Используя исходный образец для конструкции моделей z = (x — x̄) / S можно определить место каждого любого пчелиного роя (x — среднее свойства этого роя) в модельной популяции с учетом определяемых свойств. Результат (z) в пределах от —3 до +3 подтверждает породистую принадлежность данного пчелиного роя. А оценку всей популяции роев основывается на взаимном соотношении среднего уровня свойства этой популяции (вычисленного из суммы показателей z) и стандартного отклонения (вычисленного из изменяемости покозателя z). Зависимости между этими стоимостями, как максимальными допустимыми, представлено в таблице 4.
MORPHOLOGICAL EVALUATION OF COLONY POPULATION IN BREEDING APIARY
Michał Gromisz
Summary
For breeding apiary needs mathematico-morphological models, allowing to determine the race of selected bee population, were described. The construction of the model was based on the following parametres:
- Arithmetical mean (x̄) for the population (t — width of the IVth tergite, j — length of the tongue (mm), i — cubical index):
| t | j | i | |
|---|---|---|---|
| A. m. mellifica | 2.356 | 6.115 | 61.4 |
| A. m. carnica | 2.302 | 6.458 | 51.2 |
| A. m. caucasica | 2,242 | 6.976 | 54.7 |
- Standard deviation (S) similar for all the races: for t — 0.0412 mm, for j — 0.0980 mm, for i — 3.215
Using the initial formula for the model construction — z = (x — x̄) / S (x — arithmetical mean of the colony feature), it is possible to establish the place of any colony in model population on the base of the determined features. The result (z) ranging from —3 to 3 confirms the race of the given colony. The evaluation of the whole population is based on relation between mean value of the population feature (calculated from the sum of z parameters) and standard deviation (calculated from the variance of z parametre). The relationship between these values, as maximum admissible, is presented in Table 4.
Errata — błędy druku znalezione podczas digitalizacji
- s. 51: „tertigu” → tergitu
- s. 53: „lini Mazurka” → linii Mazurka
- s. 53: „przyjeliśmy” → przyjęliśmy
- s. 58: „i ich zmienność.” → i ich zmienności.
- s. 59: „ochylenie” → odchylenie
- s. 61, tab. 4: „0,9954″ → 0,9345
- s. 63: „podsatwie” → podstawie
- s. 65, streszczenie: „ПЧЕЛНЫХ” → ПЧЕЛИНЫХ
- s. 65, streszczenie: „кяубитальный” → кубитальный
- s. 65, streszczenie: „однаковое” → одинаковое
- s. 65, streszczenie: „покозателя” → показателя
- s. 65, streszczenie: „cubical index” → cubital index