

OBSERVATIONS ULTRASTRUCTURELLES SUR L’INTESTIN MOYEN CHEZ LES ABEILLES REINES (APIS M. LIGUSTICA, SPINOLA)
tekst: Franca Scanabissi Sabelli, Maria Adelaide Vecchi
Pszczelnicze Zeszyty Naukowe, Rok XXIX, 1985 — Franca Scanabissi Sabelli, Maria Adelaide Vecchi
strona 7PSZCZELNICZE ZESZYTY NAUKOWE Rok XXIX 1985
Franca Scanabissi Sabelli° et Maria Adelaide Vecchi°°
° Istituto di Zoologia, Università di Bologna °° Istituto di Zooculture, Università di Bologna
Résumé
Une étude a été menée sur la morphologie de l’intestin moyen chez l’abeille reine (Apis m. ligustica, Spinola); l’analyse morphologique a porté sur trois parties des cellules de l’intestin moyen: 1) la région supranucléaire; 2) la région nucléaire et 3) la région basale. La région supranucléaire est caractérisée par des microvilli très longues et sinueuses dans la partie extérieure, alors que le cytoplasme intérieur présente des structures cytoplasmatiques classiques avec une augmentation remarquable des structures lysosomiales, dont la présence est liée à l’activité fonctionnelle intense de l’organe. Les régions nucléaire et basale présentent des caractéristiques en accord avec les modèles structuraux déjà décrits pour d’autres insectes.
Une analyse préliminaire a été également menée sur des reines provenant de ruches douteuses. Des différences ont été remarquées qui concernent: l’aspect général de la cellule où le cytoplasme est plus clair; l’aspect des mitochondries toujours regroupées, en forme arrondie et avec des crêtes minces et sinueuses; l’augmentation des corps lysosomiaux et un épaississement dans le plasma de matière fibreuse-granulaire donnant un aspect compact alors qu’il est transparent en conditions normales.
INTRODUCTION
En raison de l’intérêt spécifique que l’homme nourrit depuis toujours à son égard, pour l’abeille, plus que pour les autres insectes, l’étude ultrastructurelle a été et est conduite dans un double but: 1) mieux connaître la structure plus fine des cellules et des tissus ainsi que leur signification morphologique et fonctionelle; 2) étudier, de manière adéquate, les états pathologiques, chercher à éclaircir des mécanismes et les rapports avec les altérations organiques contrôlables. En effet, il est
strona 8reconnu que les maladies qui affectent l’abeille, de nature parasitaire ou non, provoquent fréquemment, si non toujours, des altérations structurelles plus ou moins importantes des divers tissus et organes (hémolymphe, appareil digestif, tissu nerveux, corps gras, ovaire, glandes…).
Après examen au microscope électronique des éléments figurés de l’hémolymphe de la reine des abeilles (Apis m. ligustica, Spinola), nous avons jugé opportun de procéder à des recherches dans ce domaine en choisissant comme sujet l’intestin moyen, déjà étudié chez d’autres insectes (Ref. 3, 4, 5, 6, 7, 11, 12, 13, 16) car il est parmi les organes qui apparaissent les plus fréquemment impliqués dans les phénomènes morbides de nature diverse même quand ceux-ci ne revêtent pas les premiers signes d’affection intestinale au sens strict du mot.
Cet exposé concerne l’étude au microscope électronique des cellules de l’intestin moyen des abeilles reines prélevées de ruches normales, étude indipensable avant d’étendre les observations aux mêmes structures lors de phénomènes morbides.
MATÉRIEL ET MÉTHODES
Comme matériel d’étude, on a prélevé l’intestin moyen d’abeilles reine d’âges et d’états fonctionnels différents et plus précisément de:
— abeilles reines à peine écloses (à la fin du premier jour de vie);
— abeilles reines à peine fécondées et à ponte à peine commencée (reines du 8éme au 13éme jour de la fécondation);
— abeilles reines ayant 3 mois d’âge environ;
— abeilles reines ayant plus d’un an d’âge environ;
— abeilles reines ayant plus d’un an d’age au moins.
Les sujets des trois premiers groupes provenaient d’un seul et même élevage spécialisé dans la production d’abeilles reines. Les intestins moyens, un fois isolés, ont été immédiatement immergés en glutaraldéhyde froid à 5% dans un tampon cacodylate 0,067 M — pH 7,2 contenant 0,3 M de saccharose et ceci à 4°C pendant une heure. On a ensuite procédé au lavage dans un tampon indentique à celui utilisé pour la glutaraldéhyde toute la nuit; puis les organes ant été mis en Os04 1% dans un tampon véronal-acétate pendant une heure et ensuite on a procédé à la déshydratation dans la série d’alcools, ensuite à la coloration dans l’acétate d’uranyle et enfin à l’inclusion dans l’araldite.
Les sections ont été observées avec le microscope Jeol T8 et PHILIPS EM410 de l’Institut de Zoologie de l’Université de Bologne.
OBSERVATIONS ET DISCUSSION
L’intestin moyen de l’abeille reine apparaît comme un tube cylindrique replié sur lui-même dont la paroi comporte des nombreuses constrictions transversales qui donnent lieu à des cryptes internes. De l’extérieur
strona 9vers l’intérieur, on remarque deux couches de muscles striés à parcours longitudinal pour les muscles externes et transversal pour les muscles internes, entre eux deux, on retrouve de fréquentes ramifications trachéennes dans un hémocèle en général amorphe. La membrane basale, sur laquelle s’appuyent directements les cellules épithéliales, qui constituent la paroi de l’intestin moyen, apparaît juste sous la musculature (Fig. 1).
Les cellules pariétales sont disposées régulièrement, elles sont cylindriques, plus ou moins allongées, avec une nette polarité entre les zones apicale et basale; en effect, la partie apicale est complètement recouverte de microvilli. Le noyau ovoïdal se trouve toujours dans la région médiane de la cellule alors que la partie basale dt cette même cellule présente de nombreuses digitations allongées vers la base de la cellule.
Entre deux cellules adjacentes, les membranes intercellulaires ne sont pas rectilignes, mais suivent plutôt un parcours sinueux, ressemblant souvent à un labyrinthe (Fig. 2a) qui intéresse aussi les jonctions lisses relevées de façon irréguliere (Fig. 2b) (Ref. 9).
On rencontre assez fréquemment, dans la région épithéliale, des nids de cellules en division appelées cryptes de régénération se localisant dans la zone basale (Fig. 3). Ces cellules se distinguent par un rapport nucléoplasmatique très élevé, la membrane nucléaire est ondulée, le nucléoplasme apparaît clair, composé de 4/5 nucléoles. Selon l’âge plus ou moins précoce de la cellule, le cytoplasme présente des épaississements assez considérables de glycogène et d’appareils de Golgi, de nombreux mitochondries de forme allongée et une matrice plutôt dense, alors que le système de membranes du réticulum rugueux n’est pas encore prononcé. Dans les stades de maturation successifs, le noyau conserve fondamentalement les caractéristiques decrites ci-dessus alors que le cytoplasme s’enrichit de membranes de réticulum rugueux, jusqu’à en devenir plein (Fig. 4).
La surface cellulaire dans la zone apicale est, comme nous l’avons déjà dit, constitué de microvilli très allongés et très fins de 0,1 μm de diamètre qui pénètrent dans la lumière intestinale en suivant une ligne droite parfois sinueuse (Fig. 5). Les microvilli sont étroitement collés, au moins dans la partie la plus proche de la cellule, de telle sorte qu’il n’existe plus d’espace disponible; ils sont revetus d’une double membrane qui a un mince revêtement externe de type fibrillaire semblable au glycocalyx, d’une épaisseur et d’une densité très inférieures à celles observées par Noirot et Noirot (1972) sur les autres insectes et particulièrement appréciables seulement dans les sections transversales et à une certaine distance de l’apex. A l’intérieur des microvilli on observe du cytoplasme granulaire parfois composé de minces fibrilles qui ne présentent cependant pas de ”racines” dans l’apex (Figg. 6, 7); on n’a jamais retrouvé de structures cellulaires comme les mitochondries, membranes du réticulum rugueux ou lisse, ni d’appareils de Golgi.
La région apicale de la cellule, qui est généralement globulaire et
strona 10Légendes des Planches I—VI
Abréviations usées:
- a.c. = apex cellulaire
- c.ly. = corp lysosomial
- G. = appareil de Golgi
- g.d. = globules denses
- gly. = glycogène
- h. = hoemocèle
- I. = invagination
- j.l. = jonction lisse
- l. = labyrinthe
- L. = Lumen
- l.b. = lame basale
- m. = mitochondries
- me. = membrane
- mv. = microvilli
- N. = Nucleus
- nu. = nucléole
- pl. = plasme
- re. = réticulum endoplasmique
- t. = trachée
- v. = vacuoles.
Planche I
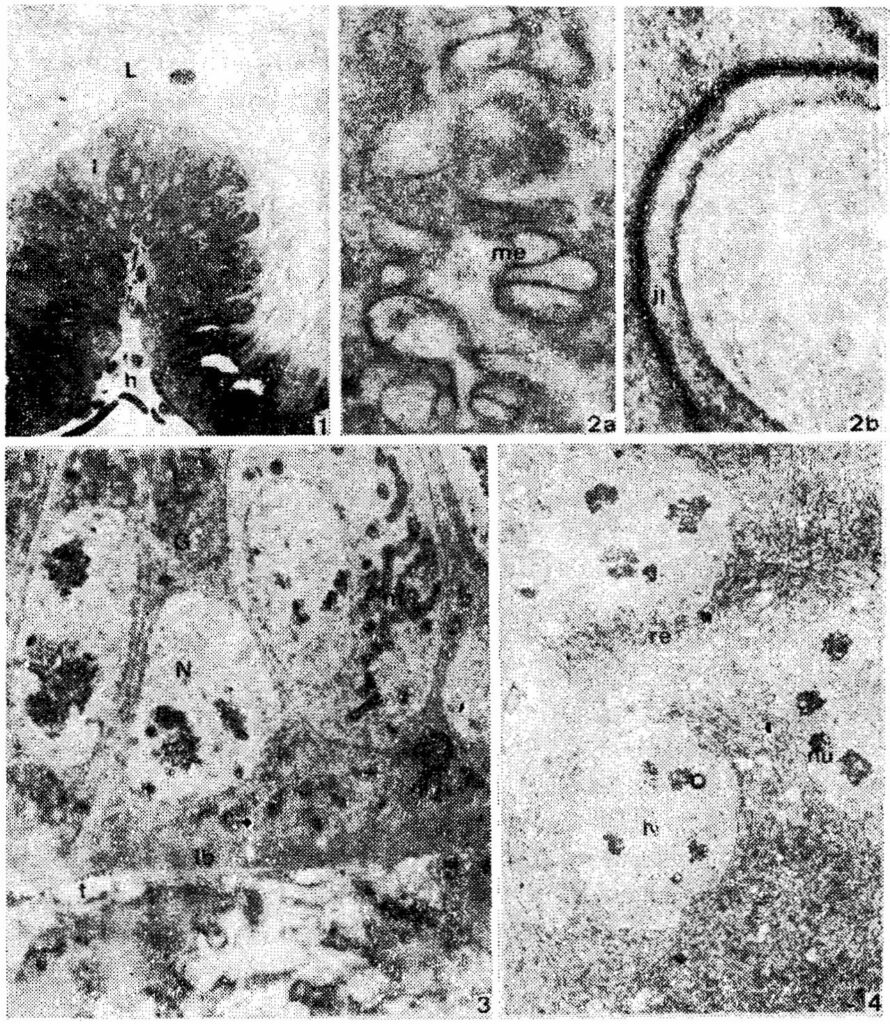
Fig. 1. Coupe semi-fine longitudinale à niveau d’une invagination de la paroi (200 ×)
Fig. 2a. Détail montrant le cours sinueux de membranes intercellulaires (22.600 ×). 2b. Jonction lisse le long d’une membrane (180.000 ×)
Figg. 3/4. Etapes successives de différentiation de cellules à niveau d’une crypte de régénération (10.280 × et 4.000 ×)
strona 11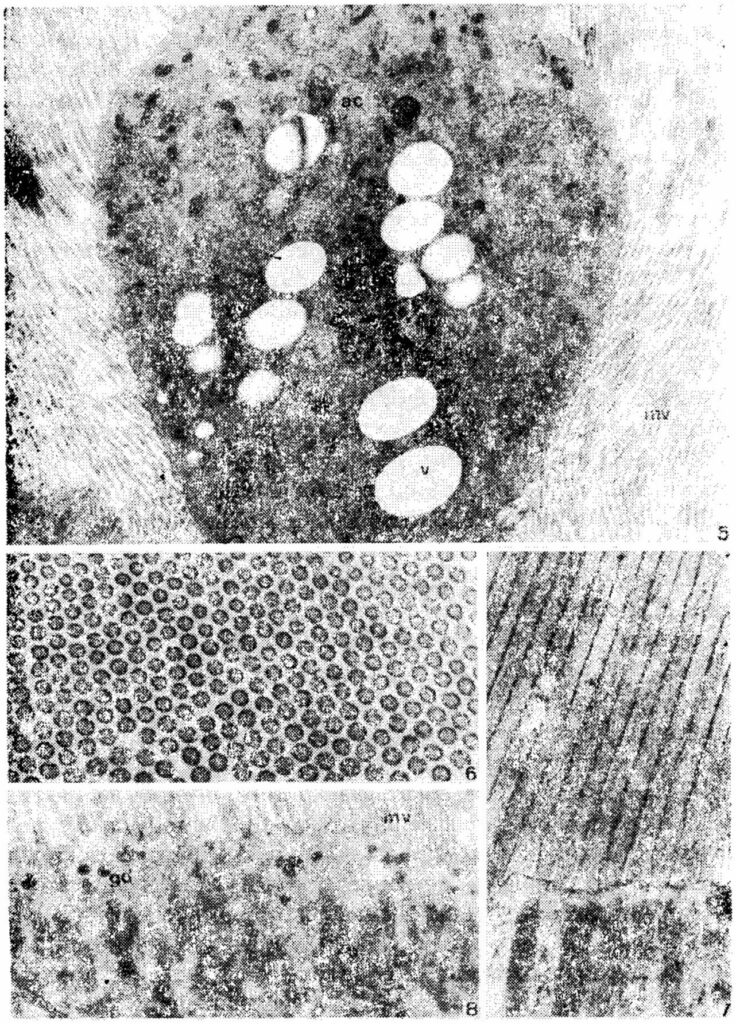
Planche II
Fig. 5. Région apicale de la cellule. Le cytoplasme, à coté des structures classiques, renferme des nombreux vacuoles claires (10.800 ×)
Figg. 6/7. Les microvilli en coupe respectivement transversal et longitudinal (34.270 × et 39.870 ×)
Fig. 8. Apex cellulaire qui renferme des globules denses de petite taille (16.250 ×)
dilatée vers la lumière intestinale, est caractérisée par de nombreux vacuoles de forme régulière et de dimensions de 1,5—2 μm environ de diamètre, qui sont souvent regroupées, de nature lipidique, aux contours bien définis sous la forme d’une simple membrane (Fig. 5). La bande supérieure de l’apex cellulaire présente, de façon fréquente et régulière, des globules denses de petite taille et de forme variable (allongés ou
strona 12arrondis) souvent perpendiculaires à la surface avec laquelle, cependant, ils n’entrent jamais en contact direct, même en cas d’épanchement ou de pynocitose (Fig. 8). Il est plus rare et plus irrégulier qu’ils puissent réapparaître même dans les parties les plus profondes de la cellule.
Le cytoplasme de la cellule épithéliale présente un fond plutôt dense constitué d’un réticulum rugueux de composition variable ou de ribosomes libres très nombreux. Le réticulum rugueux se présente presque toujours sous la forme d’un système de membranes parallèles à l’axe longitudinal de la cellule. Une telle distribution peut être mise en évidence également par les mitochondries qui, de forme allongée et à matrice plutôt dense, ont tendance à se placer parallèlement à l’axe longitudinal de la cellule (Fig. 5).
Dans la région supranucléaire se trouvent des structures de diverses dimensions, de configuration très variable et sans doute d’origine différente. En effet, certains de ces corps présentent une membrane bien définie qui, dans quelques cas, a pour origine les évaginations de la membrane cellulaire à l’endroit où celle-ci forme son parcours le plus sinueux (Fig. 9). On trouve à l’intérieur une matière diversement opaque aux électrons et se présentant différemment, c’est-à-dire comme des globules denses, granules, résidus de membranes, structures fibrillaires et, dans certains cas, des amas de macrotubules et de nombreuses vacuoles toujours de différentes dimensions (Figg. 10, 11, 12, 13). Des corps denses analogues à ceux décrits ci-dessus se forment également en conséquence de l’entassement des corps résiduels parmi lesquels on compte les globules, membranes, vacuoles, et sont englobés dans une matrice amorphe mais plutôt dense aux électrons et de toute façon toujours exempte de membrane. Ces corps denses sont en mesure d’atteindre aussi de grandes dimensions et sont presque toujours situés à proximité du noyau vers l’apex. Ils sont supposés dériver de la fusion de plusieures unités plus petites qui se regroupent entre elles de façon à atteindre, dans certains cas, des dimensions très importantes. De telles structures, comme il en ressort de la littérature, représentent des moments fonctionnels de l’activité cellulaire; en effect, dans les cellules les plus jeunes ou dans les cryptes de régénération on n’en retrouve aucune trace. N’ayant pas pu effectuer d’analyses biochimiques du contenu des corps denses, on peut les ressembler à des lysosomes car, à l’intérieur, on retrouve en majeure partie des amas de résidus cellulaires et ceci en accord avec la description de Daems et. al. (1969). Il n’a jamais été relevé de traces d’activité de pinocytose ou d’activité sécrétoire étant donné l’absence presque totale d’éléments de Golgi ou de granules secrétés comme cela est le cas au contraire chez les ”Culicidae Mosquitos” (Hecker 1977).
La région centrale de la cellule est occupé par le noyau qui a une dimension de 10 μm environ, de forme toujours ovoïdale, à contours bien définis (Fig. 14). La membrane nucléaire peut parfois présenter des pores sur son cours et est souvent revêtue de ribosomes. Une ou deux assez
strona 13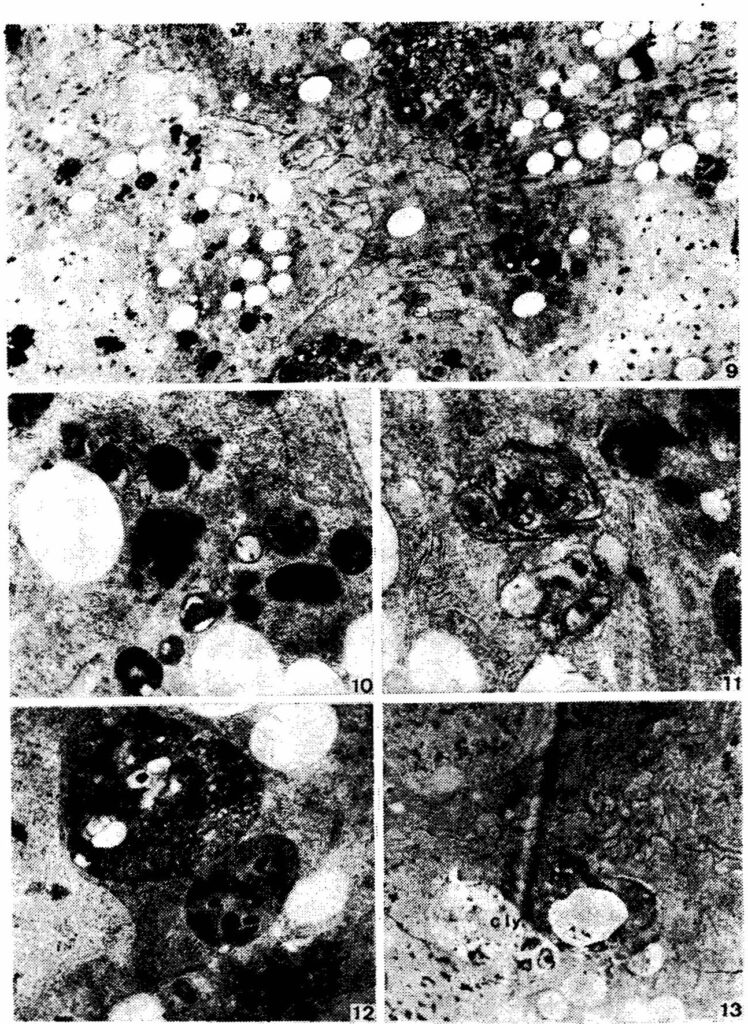
Planche III
Figg. 9/13. Différentes structures lysosomiales avec un matériel différemment perméable aux électrons, diversement configuré (5.470 ×, 17.830 ×, 22.320 ×, 20.130 ×, 6.600 ×)
grandes nucléoles sont présentes dans lesquelles on peut toujours identifier le composant granulaire et fibrillaire. En outre, la chromatine à petits blocs est toujours présente et distribuée régulièrement. Les noyaux des cellules contigues sont généralement alignés, ce pour quoi ils forment un morceau continu plus ou moins au centre de la cellule (Fig. 15). Il n’a pas été relevé de formations de membranes du réticulum de la membrane nucléaire, par ailleurs on peut soulinger que les structures lysosomiales se trouvent souvent à proximité du noyau lui-même sans que l’on puisse pour autant relever la contiguïté ou autres types de rapports.
strona 14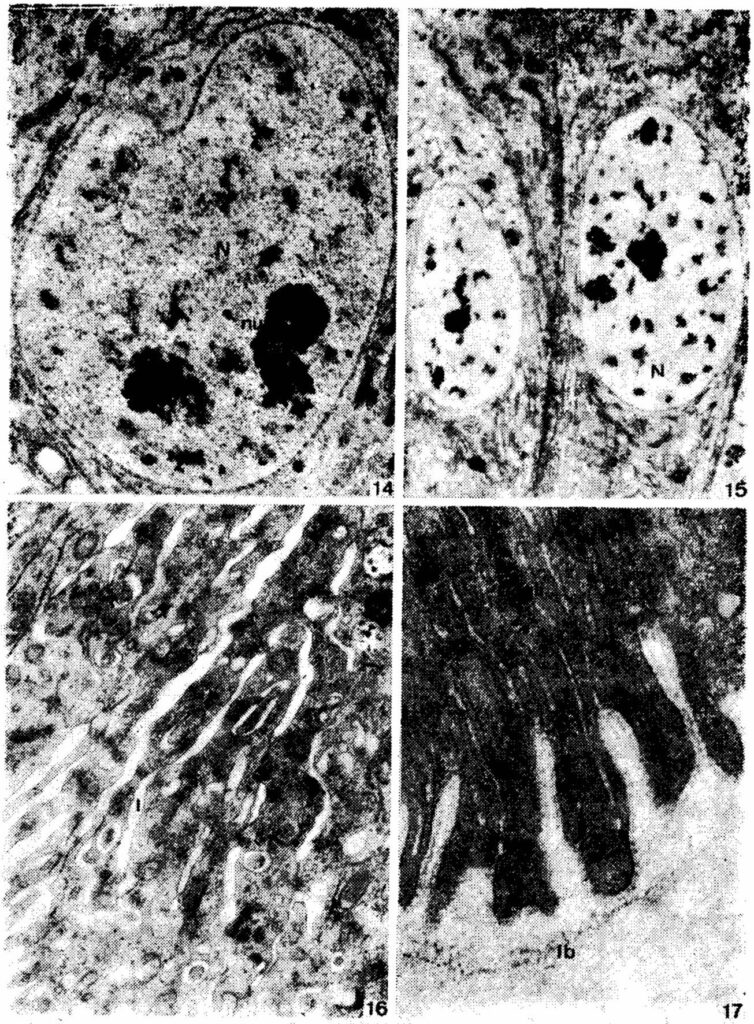
Planche IV
Fig. 14. Noyau qui montre une chromatine régulièrement distribuée en petits blocs. On peut identifier les composants granulaires et fibrillaires des nucléoles (11.830 ×)
Fig. 15. On releve l’alignement de noyaux de cellules contigues (5.950 ×)
Fig. 16. Zone basale d’une cellule. On y remarque les invaginations nombreuses de la membrane cellulaire qui s’enfoncent profondément dans le cytoplasme donnant lieu à des espaces intracellulaires (17.550 ×)
Fig. 17. Lame basale qui présente un aspect amorphe finement granulaire (41.600 ×)
La zone basale de la cellule présente un aspect totalement différent à celui décrit jusqu’à présent; en effet, juste au dessous du noyau, le cytoplasme n’est plus homogène en raison du nombre extrêmement élevé d’invaginations de la membrane cellulaire (Fig. 16). Ces invaginations, qui s’enfoncent à l’intérieur de la cellule, créent des espaces intracellulaires,
strona 15voire assez dilatés. Juste sous cette zone se trouve la lame basale qui est formée d’une couche de matériel amorphe, finement granulaire et d’épaisseur constante, pas superieur à 0,4 μm (Ref. 13) (Fig. 17). Quand la cellule est en contact avec la lame basale, elle est également concernée par le cours du labyrinthe de la membrane elle-même et s’enfonce dans les espaces intracellulaires. Le cytoplasme, qui se trouve à l’intérieur de ce système de labyrinthe, n’est pas exempt d’éléments cellulaires mais souvent occupé par des mithocondries, des membranes du réticulum rugueux et, dans quelques cas, également de considérables amas de glycogène. Quand cela a été possible, il a été comparé entre elles les portions proximales, medianes et distales de l’intestin moyen; on a rélevé un accroissement assez significatif du nombre et de l’ampleur de ces invaginations au niveau de la partie distale.
Sur le plan comparatif purement morphologique entre l’intestin moyen de l’abeille ouvrière (Ref. 10, 14, 16, 19) et des abeilles reines, on peut noter que les structures classiques, qui constituent le patrimoine normal de chaque cellule, sont présentes en proportions plus importantes dans l’intestin de l’abeille reine.
On réleve également, au niveau des microvilli, un accroissement quantitativement significatif en comparaison avec l’intestin moyen de l’abeille ouvrière.
La totale absence chez les abeille reines de granules de nature crystalline, présents au contraire dans l’intestin moyen des ouvrières constitue une différence importante.
On distingue une ultérieure différentiation sur le plan morphologique, et donc fonctionnel, des structures lysosomiales très nombreuses et constantes chez l’abeille reine et non reconnues comme telles dans l’intestin moyen des ouvriéres saines; en fonction des hypothèses déjà formuleés (Ref. 6) sur la signification de ces structures, on peut être tenté de les retenir comme étant les expressions diverses de procédés cataboliques continus dans la vie des cellules de l’intestin moyen. Il est trés probable que tels procédés cataboliques soient nécessaires à l’élimination, et donc à la régénération, des composants cellulaires de l’épithélium intestinal de l’abeille reine dont les exigences métaboliques générales sont beaucoup plus évidentes que celles de l’abeille ouvrière.
«Notes préliminaires sur quelques anomalies relevéés sur des sujets provenant de ruches suspectes.»
Au cours de cette recherche, nous avons été amenés à observer, au stade préliminaire, l’intestin moyen des abeilles reines de deux ans, prélevées de diverses ruches dans lesquelles on avait remarqué une sorte de mal noir dont la symptomatologie macro et microscopique chez les ouvrières adultes présente des manifestations analogues à celles dans lesquelles agit un virus. Il s’agit d’aspects qui, bien que n’étant pas réguliers et constants, se répètent de façon fréquente et non négligeable: conditions septicémiques, formation de croûtes au niveau de la paroi
strona 16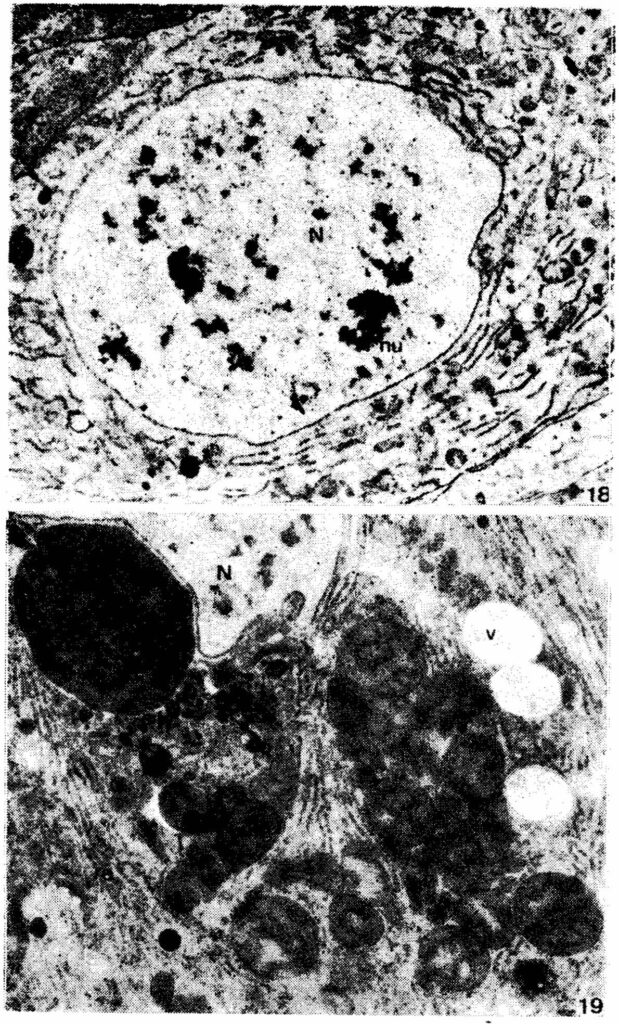
Planche V
Fig. 18. On remarque que le cytoplasme se présente anormalement clair (7.900 ×)
Fig. 19. On observe des mitochondries anormalement volumineux, arrondis, qui renferment des crêtes minces et sinueuses. Juste à coté du noyau: structure lysosomiale de grande taille (11.800 ×)
de l’intestin moyen, présence élevée de noyaux pycnotiques dans l’hémolymphe, substance granulaire très proche des divers tissus et organes, inclusions particulières sur la partie proximale de la paroi de l’intestin grêle. L’examen ultrastructurel de l’intestin moyen der reines, provenant
strona 17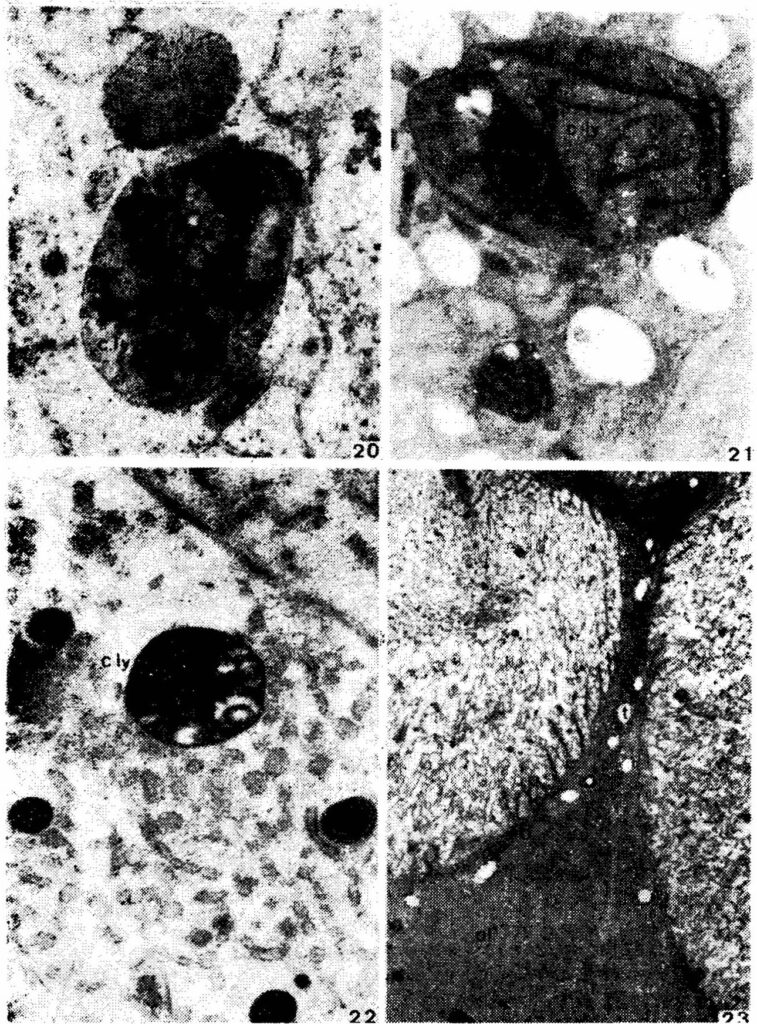
Planche VI
Figg. 20/22. Structures particulières à différente configuration qui renferment du matériel de différente opacité aux électrons (c. ly.) (29.200 ×, 20.050 ×, 27.450 ×)
Fig. 23. Plasme plutôt dense qui présente un aspect fibreux-granulaire, juste au dessous de la pario mésointestinale (6.200 ×)
de ruches suspectes, souligne quelques uns des aspects particuliers parmi lesquels il convient de citer: le cytoplasme généralement plus clair, épaississement des mitochondries de dimensions toujours plus grandes et situées vers l’apex, toujours de forme arrondie, à matrice dense et à crêtes très minces, longues et sinueuses (Figg. 18, 19).
Outre les structures classiques, on observe également des structures particulières de configuration différente, très vraisemblablement dues á des rapports ontogénétiques qui peuvent s’identifier aux structures
strona 18lososomiales également observées dans l’intestin de l’abeille reine saine. De telles structure peuvent être, ou non, définies par une membrane, elles contiennent une substance différemment opaque aux électrons, représentée par des résidus de membranes, globules plus ou moins denses, granules, regroupements de fibrilles et également, dans quelques cas, de microtubules et de vacuoles de grande taille (Figg. 20, 21, 22). La différence substantielle que l’on peut recontrer chez les reines suspectes, en comparaison de celles saines, provient de la plus grande fréquence de ces formations, qui montrent souvent la fusion de plusieures unités entre elles. Il est également évident qu’il existe un procédé de transformation progressive d’une structure à l’autre. En effect, selon un profil général, les différences morphologiques relevées parmi les unités, qu’il est parfois difficile de disttinguer, font penser que ce type d’inclusions traduise des procédés anaboliques ou cataboliques altérés et deformés, qui se développent jusqu’à l’arrêt de l’activité fonctionnelle de la cellule.
Il existe une autre caractéristique qui distingue les abeilles reines suspectes des saines, qui se traduit par un aspect particulier du plasma qui baigne l’intestin. En effet, celui-ci, au lieu d’être tout-à-fait transparent et amorphe, apparaît plutôt dense aux électrons, de nature fibreuse et granulaire ainsi qu’assez compact. Celui-ci adhère étroitement à la membrane basale et, dans quelques cas, se confond avec cette dernière de sorte à former une bande très étendue en profondeur sous l’épithélium intestinal, ce qui est tout-à-fait anormal en regard des intestins sains.
REFERENCES
- Andries, J. C., 1982. L’intestin moyen des Insectes. Ann. Biol., 2: 143—186.
- Daems, W. T., Wisse, E., et Brederoo, P., 1969. Electron microscopy of the vacuolar apparatus. 64—112 In: Lysosomes in Biology and Pathology, I, ed. Dingle J.T. and Fell H.B., North-Holland Publishing Company, Amsterdam. London.
- Hecker, H., Freyvogel, T. A., Briegel, H. et Steiger, R., 1971. Ultrastructural differentiation of the midgut epithelium in female Aedes aegypti (L.) (Insecta, Diptera) images. Acta Trop., XXVIII, 2: 80—104.
- Hecker, H., Freyvogel, T. A., Briegel, H. et Steiger, R., 1971. The ultrastructure of midgut epithelium in Aedes aegypti (L.) (Insecta, Diptera) males. Acta Trop., XXVIII, 3: 275—290.
- Hecker, H., 1977. Structure and function of midgut epithelial cells in Culicidae mosquitos (Insecta, Diptera). Cell Tissue Res., 184: 321—341.
- Kahn, M. R., Ford, J. B., 1962. Studies on digestive enzyme production and its relationship to the cytology of the midgut epithelium in Dysdercus fasciatus (Sign.) (Hemiptera, Pyrrhocoridae). J. Insect Physiol. 8: 597—608.
- Noirot-Timothée, C. et Noirot C., 1965. L’intestin moyen chez la reine des Termites superieurs. Etude au microscope électronique. Ann. Sci naturelles, Zool., 7: 185—208.
- Noirot, C. et Noirot-Timothée, C., 1972. Structure fine de la bordure en brosse de l’intestin moyen chez les Insectes. J. Microscopie, 13: 85—96.
- Noirot-Timothée, C. et Noirot, C., 1980. Septate and scalariformis junctions in Arthropods. Int. Rev. Cytol., 63: 97—140.
- Pehani, H., Racovec, V. et Pipan, N., 1969. Microscopie électronique
des cellules de l’intestin moyen d’abeilles nourries normalement et d’abeilles affamées. Bull. Apicole, XII: 131—146.
- Priester, W. De, 1971. Ultrastructure of the midgut epithelial cells in the fly Calliphora erythrocephala Meigen. J. Ultrastruct. Res., 36: 783—805.
- Priester, W. De, 1972. Lysosomes in the midgut of Calliphora erythrocephala Meigen. Z. Zellforsch., 129: 430—446.
- Reinhardt, C. et Hecker, H., 1973. Structure and function of the basal lamina and of the cell junctions in the midgut epithelium (stomach) of female Aedes aegypti L. (Insecta, Diptera). Acta Trop., 30: 213—236.
- Vecchi, M. A. et Bragaglia, M. M., 1965. Osservazioni preliminari sull’ultrastruttura del mesointestino dell’ape mellifica (Apis m. ligustica, Spinola), Archivio Zool. ital. 50: 19—32.
- Vecchi, M. A., Sabelli, F. et Wille, H., 1978. Studio sull’emolinfa dell’ape regina (Apis m. ligustica, Spinola). VII: Osservazioni ultrastrutturali su alcuni elementi figurati. Redia, LXI: 179—190.
- Vidano, C., 1971. Contributo allo studio dei microvilli di Apis mellifera ligustica, Spinola. Apic. Moderno, 6: 117—125.
BADANIA ULTRASTRUKTURY JELITA ŚRODKOWEGO U MATKI PSZCZELEJ (APIS M. LIGUSTICA, SPINOLA)
F. Scanabissi Sabelli, M. A. Vecchi
Bolonia, Italia
Streszczenie
Praca przedstawia studia nad morfologią jelita środkowego matki pszczelej (Apis mellifera ligustica, Spinola). Trzy środkowe partie komórki były badane: a) ze strefy przyjądrowej, b) ze strefy jądra, c) z podstawowej strefy jądra. Strefa jądrowa charakteryzuje się bardzo długimi i synusoidalnymi witkami w segmentach zewnętrznych, podczas gdy cytoplazma posiada normalną cytoplazmiczną strukturę i wyraźny wzrost ciał lysosomalnych, włączonych do intensywnej aktywności całego organu. Struktura podstawowej strefy jądrowej jest zgodna z opisywanym wyglądem u innych owadów.
Wstępne badanie było także przeprowadzone na jelicie środkowym matki z rodziny chorej. Stwierdzono kilka różnic, jak na przykład jaśniejszą cytoplazmę w ogólnym obrazie komórki a zgrupowane mitochondrie mają okrągławy kształt z cienkimi synusoidalnymi kiściami, ponadto zwiększoną liczbę ciał lysosomalnych i zagęszczony włóknisto granulowany materiał w plaźmie, dający jej bardziej wyraźny wygląd w przeciwieństwie do przeźroczystego wyglądu w normalnych warunkach.
INVESTIGATIONS ON MIDGUT ULTRASTRUCTURE OF HONEYBEE QUEEN (APIS M. LIGUSTICA, SPINOLA)
F. Scanabissi Sabelli, M. A. Vecchi
Summary
This paper presents a study of the midgut morphology of the queen (Apis m. ligustica, Spinola); three parts of the mesoepithelial cells were investigated: 1) supra-nuclear region, 2) nuclear region, and 3) basal region. The supra-nuclear region
strona 20is characterized by very long and sinuous microvilli in the external segment, while the cytoplasm contains all the usual cytoplasmic structures and a marked increase of lysosomal bodies connected to the intense functional activity of the organ itself. The structural characteristics of the nuclear and basal regions are in accordance with those described in other insects.
A preliminary investigation was also conducted on the midguts of queen bees from suspect hives. Several differences were found, i.e. a clearer cytoplasm in the overall appearance of the cell, the grouped mitochondria have a roundish shape with thin, sinuous tufts, an increased number of lysosomal bodies, and a denser fibrous-granular material in the plasma giving it a more compact appearance in contrast with the transparent one it exhibits under normal conditions.
Errata — błędy druku znalezione podczas digitalizacji
- s. 7: „fonctionelle” → fonctionnelle
- s. 8: „Os04″ → OsO₄
- s. 8: „indipensable” → indispensable
- s. 8: „un fois” → une fois
- s. 8: „indentique” → identique
- s. 8: „ant été” → ont été
- s. 9: „s’appuyent directements” → s’appuient directement
- s. 9, 12: „en effect” → en effet
- s. 9: „dt cette” → de cette
- s. 10, legenda: „corp lysosomial” → corps lysosomial
- s. 10, legenda: „hoemocèle” → hémocèle
- s. 12: „pynocitose” → pinocytose
- s. 12, 18: „plusieures” → plusieurs
- s. 13: „soulinger” → souligner
- s. 15: „mithocondries” → mitochondries
- s. 15: „les abeille reines” → les abeilles reines
- s. 15: „crystalline” → cristalline
- s. 15: „formuleés” → formulées
- s. 15: „relevéés” → relevées
- s. 16: „der reines” → des reines
- s. 17: „pario” → paroi
- s. 18: „En effect” → En effet
- s. 18: „lososomiales” → lysosomiales
- s. 18: „De telles structure” → De telles structures
- s. 18: „recontrer” → rencontrer
- s. 18: „disttinguer” → distinguer