

GENEZA POWSTAWANIA NIEZWYKŁYCH PSZCZÓŁ
tekst: Jerzy Woyke
Pszczelnicze Zeszyty Naukowe, Rok VI, 1962 — Jerzy Woyke
strona 49PSZCZELNICZE ZESZYTY NAUKOWE ROK VI, NR 2 PAŹDZIERNIK 1962
Jerzy Woyke
Zakład Pszczelnictwa Szkoła Główna Gospodarstwa Wiejskiego, Skierniewice
Gospodarcze znaczenie pszczół może być znacznie zwiększone przez odpowiednią hodowlę opartą na znajomości genetyki pszczół.
Odkrycie partenogenezy pszczół przez Dzierżona (1845), i potwierdzenie tej teorii badaniami nad ubarwieniem potomstwa powstałym w wyniku krzyżowania żółtych pszczół włoskich z ciemnymi północnymi, jest pierwszym podstawowym krokiem w genetyce pszczół.
Niestety specyfika kopulacji pszczół, w otwartej przestrzeni, znacznie utrudnia przeprowadzenie badań genetycznych i hodowlanych. Dopiero po opanowaniu techniki sztucznego unasieniania w ostatnich czasach, daje się zauważyć znaczny rozwój wiadomości o dziedziczeniu pszczół.
W Polsce nie podejmowano dotychczas żadnych prac doświadczalnych dotyczących dziedziczenia u pszczół. Badania takie podjęto dopiero niedawno w Zakładzie Pszczelnictwa SGGW.
W przeprowadzonych badaniach genetycznych zwrócono między innymi uwagę na powstawanie różnych niezwykłych osobników, jak trutnie mozaikowe, robotnice z jaj niezapłodnionych, gynandromorfy i mozaikowe robotnice.
Dotychczas wielokrotnie opisywano różne niezwykłe pszczoły. Brak jednak kontroli nad kojarzeniem rodziców nie pozwalał na wytłumaczenie sposobu powstawania tych osobników. Zdołano tego dokonać tylko w ostatnich nielicznych badaniach.
Na skutek stosowania w Zakładzie Pszczelnictwa SGGW sztucznego unasienienia i użycia do badań pszczół mutantów, zdołano uzyskać nowe typy i kombinacje genetyczne pszczół niezwykłych oraz wytłumaczyć genezę ich powstawania.
strona 50PRZEGLĄD LITERATURY
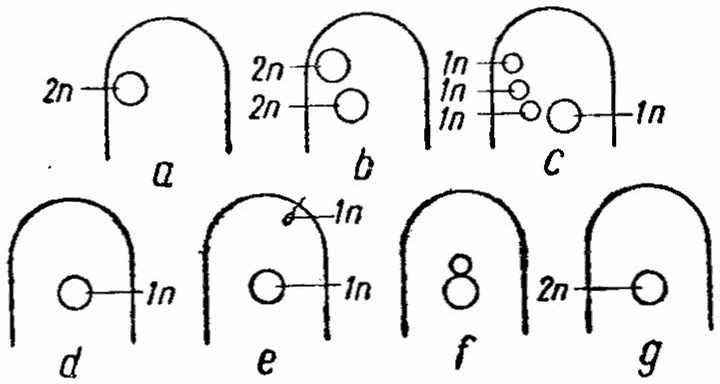
Niezwykłe pszczoły pojawiają się w wyniku zaburzeń w procesie dojrzewania i zapładniania jaja. Normalny przebieg dojrzewania jaja przedstawia się wg. Petrunkiewicza (1901) następująco (ryc. 1). Jajo w chwili złożenia go do komórki ma podwójną liczbę chromosomów. W wyniku pierwszego mitotycznego podziału oddziela się i odsuwa ku powierzchni jaja pierwsze ciałko kierunkowe (ryc. 1b). Redukcja chromatyny zachodzi w czasie drugiego podziału, przy czym dzieli się zarówno pierwsze ciałko kierunkowe jak i jądro (ryc. 1c). W rezultacie tego podziału powstają trzy ciałka kierunkowe oraz jedno jądro, wszystkie o haploidalnej liczbie chromosomów. Jądro kieruje się do środka jaja (ryc. 1 c), a ciałka kierunkowe ulegają normalnie zanikowi (ryc. 1 d). Z jaja takiego rozwinie się truteń. Jeżeli jajo zostanie zaplemnione (ryc. 1 e), to w czasie zapłodnienia zachodzi podwojenie chromosomów i z takiego jaja normalnie rozwija się samica.
Dotychczas opisano następujące niezwykłe pszczoły o znanym pochodzeniu genetycznym.
Tucker (1958) opisał trzy mozaikowe trutnie. Pochodziły one od nieunasienionych matek heterozygotycznych ze względu na następujące geny mutacyjne barwy oczu: kości słoniowej, złocistozielone i czerwone.
Partenogenetyczne powstawanie matek lub robotnic u innych pszczół niż afrykańskie zostało udowodnione przez Mackensena (1943). Otrzymał on matki i robotnice od nieunasienionych matek.
W podobny sposób uzyskali partenogenetyczne robotnice Gubin i Chalifman (1951) oraz Tucker (1958). Ten ostatni tłumaczy to zjawisko następująco. W czasie dojrzewania jaja zachodzi wadliwe równoległe do powierzchni, ustawienie wrzeciona pierwszego podziału jądra. W rezultacie, w czasie i po drugim podziale, zamiast jednego jądra kierują się do środka jaja dwa. Tak więc powstaje jajo o dwu jądrach i jedynie o dwu ciałkach kierunkowych. W wypadku połączenia się tych dwu jąder powstaje zygota, z której rozwija się samica.
Pierwsze gynandromorfy u pszczół opisano już przed stu laty (Siebold 1864). W dalszych badaniach opisano wszystkie możliwe kombinacje męskich i żeńskich części ciała u gynandromorfów. A więc osobnik
strona 51taki mógł mieć jedną stronę ciała charakterystyczną dla trutnia, a drugą dla robotnicy lub głowę i tułów trutnia, a odwłok robotnicy. Poszczególne części ciała tych dwu płci mogły być wreszcie nieregularnie rozmieszczone. Mehling (1915), Leuenberger (1925), Sakagami i Takahashi (1956).
Z powodu niemożności kontroli unasieniania matek można było wysuwać jedynie przypuszczenia co do sposobu powstawania gynandromorfów. Boveri (1915) po zbadaniu muzealnych okazów doszedł do wniosku, że męskie części ciała pochodzą jedynie od matki, a żeńskie od obydwu rodziców. Wysunął on hipotezę, że w tym wypadku jądro jaja dzieli się raz lub kilka i dopiero jedno z tych jąder łączy się z jądrem plemnika dając zygotę. Z zygoty rozwijają się żeńskie części ciała, a z pozostałych jąder lub jądra — części męskie. Brak jednak było osobników otrzymanych w rezultacie kontrolowanego kojarzenia, które potwierdziłyby wyżej przytoczoną hipotezę. O jednym takim osobniku wspomina przy innej okazji Mackensen (1951), chociaż nie wysuwa żadnych wniosków co do sposobu jego powstania.
Wiele gynandromorfów znaleźli Rothenbuhler, Gowen i Park (1953). Powstały one jednak w inny sposób, a mianowicie zgodnie z hipotezą wysuwaną przez Morgana (1905). Gynandromorfy te miały żeńskie części również pochodzące od obydwu rodziców, czyli rozwinęły się one z zapłodnionego jądra jaja. Trutowe części ciała wykazywały jednak jedynie cechy ojca, co wskazywało, że rozwinęły się one jedynie z dodatkowego plemnika, który wniknął do jaja.
Jeszcze inny sposób powstawania gynandromorfów opisał Tucker (1958). Znalazł on pięć gynandromorfów w potomstwie niezapłodnionych matek. Powstawanie ich tłumaczy podobnie jak powstawanie samic z jaj niezapłodnionych. Różnica polega jedynie na tym, że dwa haploidalne jądra muszą najpierw podzielić się przynajmniej raz, a następnie dwa z nich połączyć się dając zygotę. Z zygoty powstaną części żeńskie, a z pozostałych jąder części męskie.
Mozaikowe pszczoły robotnice opisał Taber (1955). Barwa ich oskórka była częściowo brązowa (cordovan) a częściowo czarna. Uważa on, że można to wytłumaczyć dwujądrowymi jajami zapłodnionymi dwoma różnymi plemnikami.
MATERIAŁ I METODA
Mozaikowe trutnie czy robotnice, gynandromorfy oraz robotnice z jaj niezapłodnionych pojawiają się w rodzinie bardzo rzadko i dlatego trzeba przejrzeć bardzo wiele pszczół, aby je odnaleźć.
Celem łatwiejszego zauważenia pojawiających się niezwykłych osobników użyto do badań mutantów o cechach wyraźnie różniących się od
strona 52cech normalnych osobników w ulu. Do badań użyto prócz normalnych pszczół o czarnym pigmencie w oskórku ciała i czarnych oczach następujące mutanty: pszczoły o brązowej barwie ciała (cordovan — cd), o oczach ceglastych (brick — bk) i oczach złocisto zielonych (chartreuse — ch). Geny wywołujące te objawy nie są ze sobą ani sprzężone, ani też nie są względem siebie allelami (Laidlaw i pozostali 1953, Mackensen 1958). Geny bk oraz ch razem dają w hemizygocie (bk; ch) lub homozygocie (bk/bk; ch/ch) fenotyp o ciemnożółtej barwie oczu (buff).
Wszystkie wymienione tu geny mutacyjne są natomiast recesywne względem genów normalnych zwanych dzikimi (+).
Po dokonaniu odpowiednich unasienień i zaczerwieniu przez matkę lub trutówki plastrów czekano do momentu wygryzania się czerwiu. Następnie plaster z takim czerwiem przenoszono do izolatora i trzymano w cieplarce. Codziennie oglądano, liczono i wyjmowano wylęgnięte pszczoły. W sumie unasieniono 18 matek z mutacyjnymi genami oraz przeliczono kilkadziesiąt tysięcy pszczół.
Niezwykłe osobniki starano się uzyskać na innej drodze lub przy użyciu innych mutantów niż to dotychczas czyniono. Szczegółowy sposób uzyskiwania różnych typów niezwykłych osobników podano oddzielnie przy każdym typie osobników.
WYNIKI
MOZAIKOWY TRUTEŃ
Opisane dotychczas trzy mozaikowe trutnie pochodziły od nieunasienionych matek (Tucker 1958).
Nam udało się uzyskać jednego mozaikowego trutnia od pszczół trutówek.
Cała rodzinka, w której pojawiły się trutówki pochodziła od matki homozygotycznej, pod względem mutacyjnych genów — ceglaste oczy (bk). Matka ta miała oczy ceglaste i była unasieniona nasieniem trutni o czarnych oczach. Pochodzące od niej pszczoły miały oczy czarne, lecz w genotypie miały jeden gen czarnych oczu, a drugi ceglastych bk/bk⁺. Po stracie matki pojawiły się w ulu pszczoły trutówki składające jaja. Ze składanych przez nie jaj rozwijały się trutnie bądź o oczach czarnych, bądź o oczach ceglastych. Wśród tych trutni udało się jednak znaleźć jednego mozaikowego. Mozaikowość udało się stwierdzić jedynie w oczach.
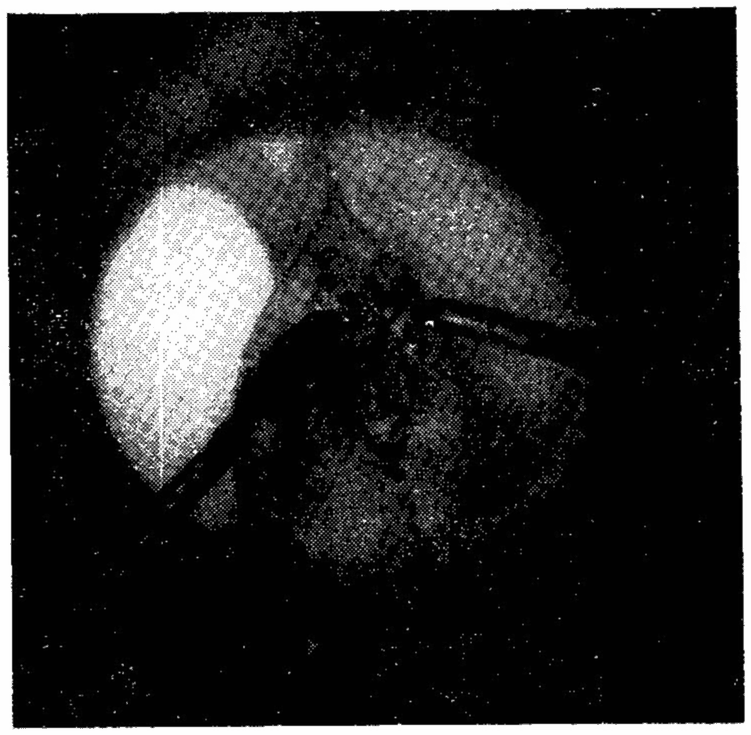
Truteń ten miał lewe oko całe czarne, prawe natomiast, poza kilku ciemnymi plamami w górnej części oka, było całe ceglaste (ryc. 2).
strona 53Truteń ten musiał więc powstać z jaja, które miało dwa różne jądra haploidalne — jedno z genem oczu ceglastych, a drugie z genem dzikim. Dwa różne haploidalne jądra mogły pojawić się w jaju na skutek zakłóceń w procesie dojrzewania jaja. Normalnie w jądrze niedojrzałego, niezapłodnionego jaja znajduje się diploidalna liczba chromosomów, czyli w opisywanym wypadku zarówno gen oczu czarnych jak i ceglastych. W wyniku podziałów dojrzewania w haploidalnym jądrze raz znajdował się gen oczu czarnych, innym razem oczu ceglastych. Dlatego jedne z wylęgających się trutni miały oczy czarne, inne czerwone.
Opisywany mozaikowy truteń mógł powstać wtedy, gdy w wyniku zaburzeń przy dojrzewaniu jaja, prócz normalnego jądra, jedno z ciałek kierunkowych zaczęło działać jako drugie jądro (ryc. 3). W rezultacie zamiast jednego jądra i trzech ciałek kierunkowych powstały dwa rozwijające się normalnie haploidalne jądra i dwa ciałka kierunkowe.
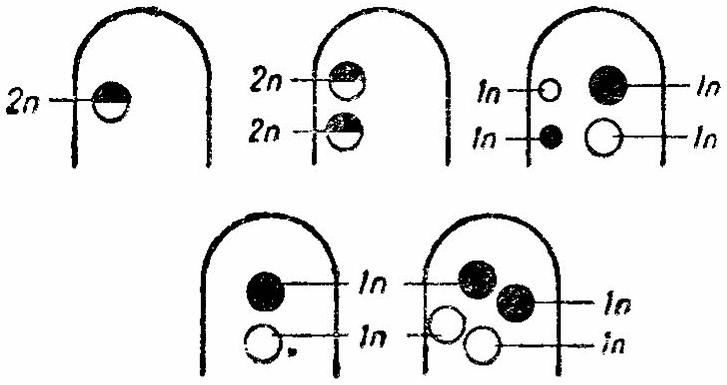
Spośród trutni powstających w ten sposób nie można zauważyć tych, które rozwijają się z jaj mających obydwa jądra o jednakowych genach. Można jedynie zauważyć trutnie powstające z jaj, w których jedno jądro miało gen oczu ceglastych, a drugie oczu czarnych. Tak więc spośród trutni powstających z dwujądrowych jaj można było zauważyć jedynie połowę ich, to znaczy tylko wszystkie mozaikowe.
ROBOTNICE OD TRUTÓWEK
U pszczół naszej hemisfery opisano jedynie robotnice lub matki powstałe z jaj niezapłodnionych złożonych przez matki: (Mackensen 1943, Gubin i Chalifman 1951, Tucker 1958).
strona 54Postanowiono więc stwierdzić, czy pszczoły robotnice mogą rozwinąć się z niezapłodnionych jaj składanych przez pszczoły trutówki.
Gdy w jednym uliku weselnym pojawiły się po stracie matki pszczoły trutówki, pozwolono im czerwić przez cztery tygodnie. Następnie ramkę bez pszczół dano do zasiatkowanego izolatora do cieplarki, gdzie co kilka dni usuwano wylęgające się dojrzałe osobniki.
Niewielka część poczwarek zamarła w ramce. Po odsklepieniu wieczka można było jednak doskonale po wielkości oczu stwierdzić, czy zamarłe poczwarki były trutniami czy robotnicami.
W sumie określono płeć u 148 osobników. Z opisywanej ramki wylęgały się głównie trutnie. Prócz nich wylęgły się jednak również trzy robotnice. Robotnice te makroskopowo nie różniły się od pszczół, które rozwinęły się z jaj zapłodnionych. Wśród zamarłych poczwarek nie znaleziono żadnej robotnicy. Trzy pszczoły robotnice w stosunku do 148 osobników, u których określono płeć, stanowią 2%.
Należy przypuszczać, iż robotnice te powstały z jaj diploidalnych. Jajo złożone przez trutówki lub nieunasienione matki może być diploidalne w dwóch wypadkach. Albo jeżeli w czasie dojrzewania jaja nie zajdzie całkowity podział redukcyjny jądra albo jeżeli w jaju pojawią się najpierw dwa jądra haploidalne, które następnie połączą się dając jedno jądro diploidalne. Ponieważ u pszczół jajo rozwija się bez wniknięcia plemnika, należy przypuszczać, że w omawianym wypadku przeszło ono podział redukcyjny.
Pojawienie się dwu pierwszych jąder może mieć miejsce albo w wypadku podziału jednego jądra haploidalnego, albo w wyniku zaburzeń dojrzewania doprowadzających do przeistoczenia się ciałka kierunkowego w drugie jądro.
Badania Mackensena (1951), Hachinohe i Jimbu (1958) oraz nasze nad żywotnością czerwiu z jaj homozygotycznych wskazują, że gdyby doszło do połączenia dwu uprzednio rozdzielonych identycznych jąder haploidalnych, to na skutek działania homozygotycznych alleli płciowych nie powstałby osobnik doskonały.
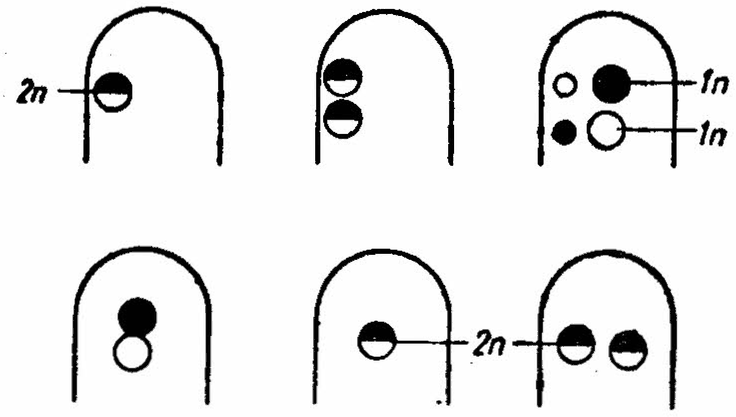
Robotnica mogła powstać z niezapłodnionego jaja, jeżeli w nim pojawiły się dwa różne jądra haploidalne. Może to mieć miejsce, gdy zamiast jednego ciałka kierunkowego powstanie drugie haploidalne jądro (ryc. 4) podobnie jak to miało miejsce przy opisię
strona 55mozaikowych trutni. Jeżeli teraz te dwa haploidalne jądra mają niejednakowe allele wpływające na przeżywalność czerwiu i gdy następnie połączą się, to powstanie heterozygota, z której rozwinie się samica robotnica. Takie wytłumaczenie powstawania robotnic z jaj niezapłodnionych wydaje się najbardziej prawdopodobne.
GYNANDROMORFY
Dotychczas opisano wiele gynandromorfów. Spośród gynandromorfów o znanym genetycznie pochodzeniu męskich i żeńskich części ciała jedynie jeden był taki, u którego żeńskie cześci ciała mogły pochodzić od obydwu rodziców, a męskie barwy cordovan tylko od matki (Mackensen 1951). Nie zajmowano się jednak wytłumaczeniem sposobu powstania tego osobnika.
W naszych badaniach użyto do krzyżowań również różne inne mutanty podane na początku pracy. W potomstwie jednej z matek udało się znaleźć jednego gynandromorfa. Gynandromorf ten pochodził od matki heterozygotycznej pod względem trzech mutacyjnych genów bk/bk⁺, ch/ch+, cd/cd+. Matka ta była unasieniona nasieniem czterech typów trutni, tj. dzikich + i takich, z których każdy miał tylko po jednym genie mutacyjnym bk, lub ch, lub cd.
Otrzymany gynandromorf miał w zasadzie poza pewnymi przesunięciami prawą stronę ciała trutową, lewą stronę pszczoły robotnicy. Prawa strona głowy wraz z okiem złożonym, jedną żuwaczką, jedną szczęką była trutowa, lewa pszczoły robotnicy. Prawy głaszczek językowy był nieco krótszy niż lewy, jednak nie było między nimi takiej różnicy, jaka zachodzi między głaszczkiem robotnicy a trutnia. Języczek był przegięty w prawo. Cała warga dolna miała jednak raczej cechy robotnicy.
Tułów był w zasadzie z prawej strony trutowy. Jednakowoż przedtułów miał w większości cechy pszczoły robotnicy, a w śródtułowiu prócz prawej strony również cały grzbiet tzn. tarczka była trutowa.
Pierwsza para nóg miała cechy nóg robotnicy, a spośród pozostałych dwu par prawe nogi były trutowe a lewe robotnicy. Nie zauważono różnicy między prawymi a lewymi skrzydłami. Skrzydła te w kształcie przypominają skrzydła trutnia, chociaż są mniejsze od normalnych skrzydeł trutowych, gdyż gynandromorf wychował się w komórce pszczelej.
Cały odwłok wraz z pierścieniem przed zwężeniem tułowia był w zasadzie z prawej strony trutowy, a z lewej charakterystyczny dla robotnicy. Ukształtowanie ostatnich półpierścieni brzusznych było z prawej strony ciała zupełnie inne niż z lewej. Ponieważ jednak gynandromorfa tego chciano w całości zachować do dokumentacji, nie wypreparowano
strona 56poszczególnych płytek odwłoka i dlatego nie można podać dokładnego ich opisu. Z tego względu nie podano też opisu anatomicznego. Gynandromorf ten miał żądło wraz z dwiema pochwami.
Opisywany gynandromorf był rasy włoskiej złotej amerykańskiej. Ciemne części ciała charakterystyczne dla robotnicy wraz z okiem złożonym były barwy czarnej. Trutowe ciemne części były brązowe (cordovan — cd), a oko złożone było ceglaste (brick — bk).
Przechodząc obecnie do wyjaśnienia sposobu powstania tego gynandromorfa można wziąć pod uwagę różne hipotezy. Gdyby trutowe części ciała gynandromorfa powstały z plemnika, jak podaje Rothenbuhler i inni (1952) wtedy mogłyby one zawierać co najwyżej tylko jeden gen mutacyjny, gdyż przy zastosowanym kojarzeniu nie było plemnika, który miałby jednocześnie dwa geny mutacyjne, jak ma to miejsce u opisywanego gynandromorfa (brązowy i ceglasty). Gdyby natomiast trutowe części ciała powstały z dwu plemników o różnych genach, wtedy byłyby mozaikowe, czego jednak nie stwierdzono. Pozostaje więc jedynie możliwość, że trutowe części ciała rozwinęły się z jednego haploidalnego jądra, które pochodziło od matki mającej zarówno gen cordovan jak i gen oczu ceglastych.
Części ciała charakterystyczne dla robotnicy mogą natomiast rozwinąć się albo w wyniku zapłodnienia jądra jaja przez plemnik albo w wyniku połączenia w zygotę dwu haploidalnych jąder jaja. Te dwa haploidalne jądra mające dać zygotę mogłyby powstać w dwojaki sposób. Albo przez podział jednego jądra haploidalnego albo w wyniku opisanych już nienormalnych podziałów dojrzewania. W pierwszym wypadku powstałaby homozygota, która według dotychczasowych danych albo nie rozwijałaby się, albo powstałby z niej truteń (Rothenbuhler 1957).
W drugim wypadku, to znaczy, gdy zamiast jednego ciałka kierunkowego rozwija się drugie jądro haploidalne, musiałby najpierw zajść jeszcze jeden dalszy podział doprowadzający do powstania czterech jąder, z których dwa połączyłyby się. Bez takiego podziału nie starczyłoby jąder na jednoczesne rozwinięcie się haploidalnej i diploidalnej części ciała. W takim wypadku jednak trutowa część ciała powstałaby z dwu niejednakowych jąder haploidalnych, co doprowadziłoby do mozaikowatości, której w tym wypadku nie stwierdzono.
Pozostaje więc jedynie najprostsze tłumaczenie, że części ciała robotnicy rozwinęły się z drugiego jądra, które uległo zapłodnieniu. Ponieważ części ciała robotnicy miały czarną barwę, więc jądro mogło połączyć się albo z plemnikiem o genach dzikich lub plemnikiem mającym jeden gen mutacyjny, którego właśnie nie było w jądrze jaja.
Ostatecznie więc powstanie opisywanego gynandromorfa można wytłumaczyć w następujący sposób. W jaju na skutek nienaturalnego dojrzewania
strona 57powstały dwa haploidalne jądra, z których jedno uległo zapłodnieniu (ryc. 5). Z zapłodnionego jądra rozwinęła się część ciała robotnicy, a z niezapłodnionego — część trutowa.
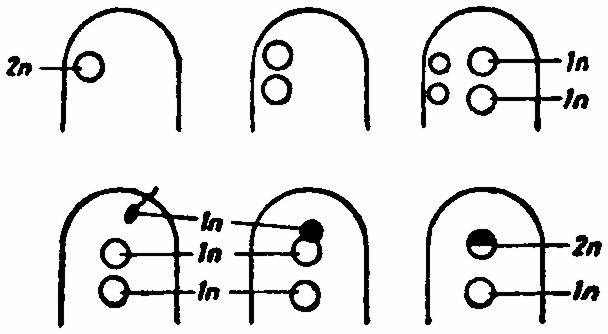
Możliwe jest też tłumaczenie Boveriego (1915) w myśl którego w procesie dojrzewania najpierw powstaje jedno haploidalne jądro jaja, które ulega mitotycznemu podziałowi na dwa potomne. Teraz dopiero jedno jądro zostaje zapłodnione przez plemnik dając zygotę, z której rozwijają się części ciała robotnicy, a z niezapłodnionego jądra rozwijają się części ciała trutnia.
W myśl obydwu tych tłumaczeń trutowe części ciała gynandromorfa mają tylko matkę, a części ciała charakterystyczne dla robotnicy, obydwoje rodziców.
Bardziej prawidłowe wydaje się jednak pierwsze tłumaczenie, gdyż zgadza się ono z schematem przedstawianego powstawania niezwykłych pszczół.
PSZCZOŁY O DWU OJCACH
Dwie mozaikowe pszczoły robotnice udało się uzyskać od matki homozygotycznej ze względu na dwa geny mutacyjne — gen ceglastych oczu i gen oczu barwy chartreuse (bk/bk; ch/ch). Ich współdziałanie w gamecie lub homozygocie daje osobnika o fenotypie oczu nazwanych „buff„, co oznacza barwę ciemnożółtą.
Matka o takich oczach była unasieniona nasieniem trzech typów trutni: dzikich (+), chartreuse (ch) i ceglastych (bk). Produkowała ona wszystkie trutnie o oczach ciemnożółtych (buff — bk; ch). Notomiast z jej jaja (bk; ch) zapłodnionego plemnikiem o genach dzikich (+ +) powstawała heterozygota (bk/bk⁺; ch/ch⁺), z której rozwijała się robotnica o oczach czarnych. Z jaja (bk; ch) zapłodnionego plemnikiem o genie oczu ceglastych (bk), powstawała zygota (bk/bk; ch/ch⁺), z której rozwijała się robotnica o oczach ceglastych i wreszcie zapłodnienie jaja (bk; ch) przez plemnik o genie oczu chartreuse (ch), dawało w rezultacie robotnice o oczach chartreuse (bk/bk⁺; ch/ch). Widać więc, że zapłodnienie jaja przez jakikolwiek z trzech typów plemników dawało inny efekt i w rezultacie mogło być dokładnie prześledzone. Gdyby natomiast na skutek połączenia się dwu haploidalnych jąder jaja (bk; ch) powstała robotnica
strona 58albo tylko jej część zawierająca oko, to oko takie byłoby ciemnożółte (bk/bk; ch/ch), gdyż matka była homozygotyczna ze względu na te geny. W rezultacie więc i ten typ połączeń jąder dawał inny efekt niż uprzednio podane.
Tak więc każdy typ połączeń jąder czy to jajowych czy jądra jaja z różnymi plemnikami dawał inny efekt i mógł być dokładnie prześledzony.
Pierwsza ze znalezionych pszczół o dwu ojcach wyglądała następująco. Pszczoła ta miała prawe złożone oko, czarne, jedynie przez środek oka przechodził poprzecznie jasny pasek o szerokości dwu omatidiów.
Drugie oko opisywanej pszczoły było barwy chartreuse z jednym szerokim na dwa omatidia paskiem czarnym. Pasek ten przechodził popoprzecznie przez środek oka od czoła do połowy oka. Zarówno omatidia chartreuse jak i czarne były wielkości spotykanej u innych robotnic. Na odwłoku pszczoły można było z łatwością zobaczyć, że prawa strona ma inny rysunek czarnej barwy niż lewa.
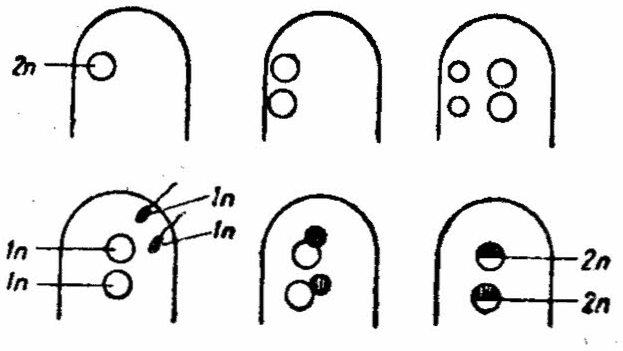
Z powyższego opisu jak i z oględzin owada można się przekonać, że wszystkie części ciała rozwinęły się z zapłodnionych jąder, lecz części te nie są jednorodne. Powstanie takiej pszczoły można wytłumaczyć na podstawie podanych wyżej możliwości połączeń jąder w następujący sposób (ryc. 6).W jaju musiały powstać najpierw dwa haploidalne jądra. Każde z obydwu jąder od homozygotycznej matki ma obydwa mutacyjne geny ch i bk. Jeżeli jedno z jąder zostało następnie zapłodnione plemnikiem o genach dzikich (+; +) to powstała heterozygota (ch/ch⁺; bk/bk⁺), z której rozwinęły się czarne części oczu.
Jeżeli drugie jądro zostało zapłodnione plemnikiem o genie chartreuse (ch), to powstała zygota (bk/bk⁺; ch/ch), z której rozwinęły się części oczu o barwie chartreuse. Z połączenia tych dwóch jąder jajowych z dwoma różnymi plemnikami rozwinęły się również pozostałe części ciała, co spowodowało, że odwłok nie był jednorodny.
Z wszystkich powyższych danych widać, że jajo zostało zapłodnione dwoma plemnikami od dwu różnych trutni. Tak więc pszczoła ta miała dwu ojców.
U drugiej pszczoły występowały jeszcze dodatkowe kombinacje genetyczne i dlatego opisano ją poniżej oddzielnie.
strona 59CZĘŚCIOWO PARTENOGENETYCZNA PSZCZOŁA O DWU OJCACH
Pszczoła ta pochodziła od uprzednio opisanej homozygotycznej matki (bk/bk; ch/ch), unasienionej nasieniem trzech typów trutni, tj. dzikich + oraz mających po jednym genie mutacyjnym bk lub ch.
Pszczoła ta wyglądała następująco. Odwłok z prawej strony miał inny rysunek niż z lewej. Niektóre pierścienie z lewej strony ciała były zupełnie żółte, podczas gdy z prawej strony miały czarny pigment. Inne kombinacje barw w stosunku do uprzednio opisanej pszczoły znajdowały się jednak w oczach złożonych. Prawe oko było całe barwy chartreuse. Lewe natomiast tylko w górnej połowie było chartreuse. Środek oka zajmował duży klin czarnych omatidiów. Omatidia takiej barwy znajdowały się również na krawędzi dolnej połowy oka, oraz kilka ich grup znajdowało się w dolnej połowie oka. Cała reszta dolnej połowy oka była barwy ciemnożółtej (buff) ryc. (7 i 8). Wszystkie omatidia były wielkości spotykanej u normalnych robotnic.
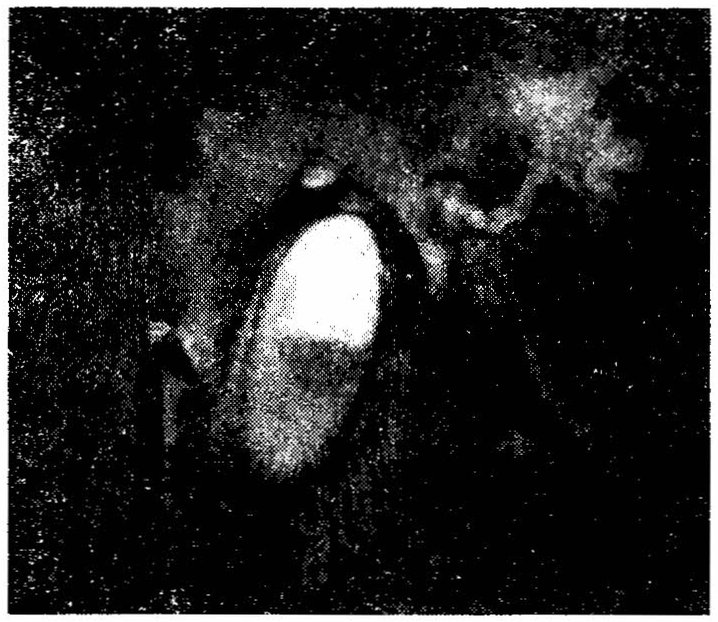
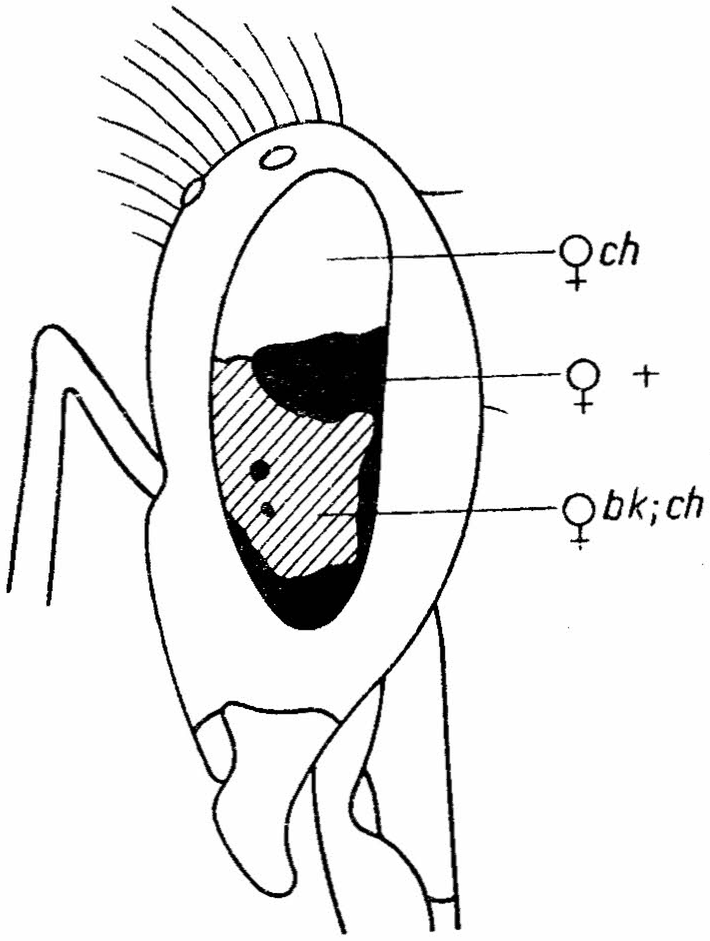
Pochodzenie omatidiów barwy chartreuse i czarnej można wytłumaczyć podobnie jak u poprzednio opisanej pszczoły. Znaczy to, że dwa haploidalne jądra jaja zostały zapłodnione różnymi plemnikami. Jedno jądro plemnikiem o genie chartreuse, a drugie plemnikiem o genach dzikich. Żaden truteń nie miał jednak plemników o obydwu genach mutacyjnych tz. bk oraz ch, które mogłyby wywołać ciemnożółte zabarwienie oczu. Omatidia takiej barwy o wielkości spotykanej u normalnych robotnic mogły powstać w wyniku połączenia dwu haploidalnych jąder jaja, z których każde ma obydwa mutacyjne geny bk; ch. W rezultacie tego powstała zygota (bk/bk; ch/ch), ujawniająca się w fenotypie przez ciemnożółte zabarwienie oczu.
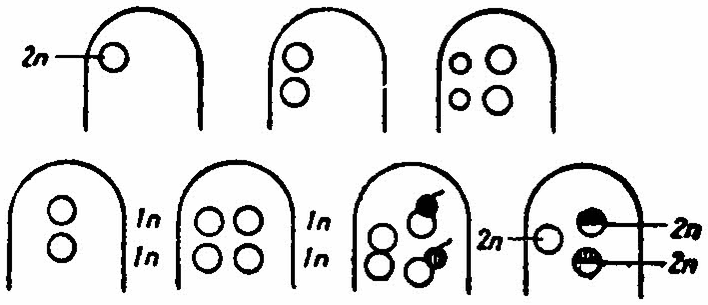
Na podstawie powyższych wywodów należy przyjąć, że w jaju pojawiły się cztery haploidalne jądra (ryc. 9). Następnie dwa jądra zostały zapłodnione różnymi plemnikami, a pozostałe dwa połączyły się. W rezultacie powstała więc pszczoła robotnica mająca dwu ojców, a jednocześnie pewne partie jej ciała pochodziły tylko od matki i pomimo to są charakterystyczne dla robotnicy. Tak więc opisywany owad jest częściowo partenogenetyczną pszczołą o dwu ojcach. Taki typ powstawania pszczoły nie został dotychczas stwierdzony.
LITERATURA
Boveri, T. (1915) Über die Entstehung der Eugsterschen Zwitterbienen. Arch. Entw. Mech. Org. 4/2: 264—311.
Fyg, W. (1959) Normal and abnormal development in the honeybee. Bee World. 40: 57—66; 85—96.
Gubin, A. F. i Chalifman, I. A. (1951) Wospitanije pczelinoj matki iz trutniewo jajca. Agrobiołogija. (1): 99—104.
Hachinohe, Y and Jimbu, M. (1958) Occurrence of the lethal eggs in the honeybee. Bull Nat. Inst. Agric. Sci., ser. G. no 14: 123—130.
Kerr, W. E. Laidlaw, H. H. (1956) General genetics of bees. Advences in Genetics 8: 109—153.
Laidlaw, H. H.; Green, M. M. and Kerr, W. E. (1953) Genetics of several eye color mutants in the honeybee. Jour. Hered. 44 (6): 246—250.
Leuenberger, F. (1925) Zwitterbienen. Schweiz. Bienenzeitung. 48 (6): 246—250.
Mackensen, O. (1943) The occurrence of parthenogenetic females in some strains of honey bees. Jour. Econ Ent. 36 (3): 465.
Mackensen, O. (1958) Linkage
strona 61studies in the honey bee. Journ. Hered. 43 (3): 99—102.
Mackensen, O. (1951) Viability and sex determination in the honey bee (Apis mellifera L.) Genetics 36 (9): 500—509.
Morgan, T. H. (1905) An alternative interpretation of gynandromorphous insects. Science 21: 632—634.
Nachtsheim, H. (1913) Cytologische Studien über die Geschlechtsbestimmung bei der Honigbiene (Apis mellifica L.) Arch. Zellforschung. 11: 169—241.
Petrunkiewitsch, A. (1901) Die Richtungskörper und ihr Schicksal im befruchteten und unbefruchteten Bienenei. Zoolog. Jahrb. Abt. Anat. u. Ont. 14 (4): 573—603.
Rothenbuhler, W. C. and others (1949) Gynandromorphic honey bees. Journ. Hered. 40 (12): 308—311.
Rothenbuhler, W. C.; Gowen, J. W. and Park, O. W. (1952) Androgenesis with zygogenesis in gynandromorphic honeybees (Apis mellifera L.). Science 115: 637—638.
Rothenbuhler, W. C. (1957) Diploid male tissue as new evidence on sex determination in honey bees. Journ. Hered. 48 (4): 160—167.
Rothenbuhler W. C. (1958) Genetics and breeding of the honey bee. Ann. Rev. Ent. 3: 161—180.
Ruttner, F. and Mackensen, O. (1952) The genetics of the honeybee. Bee World 33 (4, 5): 53—62; 71—79.
Sakagami, S. F. and Takahashi, H. (1956) Beobachtungen über die gynandromorphen Honigbienen mit besonderer Berücksichtigung ihrer Handlung innerhalb des Volkes. Insectes sociaux 3 (4); 513—529.
Siebold, Th. (1864) Über Zwitterbienen. Zeitsch. f. wissensch. Zoolog 14: 73—80.
Taber, S., III (1955) Evience of Binucleate eggs in the honey bee. Journ. Hered. 46 (6): 156.
Tucker, K., W. (1958) Automictic parthenogenesis in the honey bee. Genetics 43 (3): 299—316.
НЕОБЫЧАЙНЫЕ ПЧЕЛЫ
Ежи Войке
Резюме
Во время исследований по генетике пчел и физиологии их размножения удалось натолкнуться на следующие необычайные особи: мозаичный трутень, работницы из яиц пчел-трутовок, гинандроморф, работница с двумя отцами и частично патреногенетическая работница с двумя отцами.
Происхождение этих особей можно было установить благодаря тому, что в исследованиях пользовались пчелами-мутантами и искуственным осеменением пчелиных маток.
Мозаичный трутень (рис. 2) с одним глазом черным, а другим по большей части кирпичным (bk), происходил от гетерозиготных пчел-трутовок (bk/bk+); следовательно он развился из яйца с двумя генетически неодинаковыми ядрами (рис. 3).
Сот с расплодом пчел-трутовок изолировано в инкубаторе. Среди 148 выведшихся особей было найдено три работницы, что составляло 2%. Эти работницы ничем не отличались от нормальных пчел. Вероятно они произошли в результате слияния двух гаплоидальных ядер яйцевой клеточки (рис. 4).
strona 62Гинандроморф происходил от матки, которая была гетерозиготна в отношении трех мутационных генов: bk/bk+, ch/ch+, cd/cd+ и осеменена спермой трутней четырёх типов: диких и таких, которые имели один из трех мутационных генов: bk; ch или cd. Левая сторона тела этого гинандроморфа имела строение пчелы-работницы, а правая трутня. Женские части тела имели черную, а мужские коричневую окраску „кордован” (cd). Правый сложный трутневой глаз был кирпичного цвета (bk). Так как ни один из трутней, взятых для осеменения матки, не имел одновременно двух мутационных генов bk и cd мужские части тела гинандроморфа могли образоваться только из гаплоидального ядра яйцевой клеточки, а женские в результате оплодотворения другого такого же ядра (рис. 5).
Пчела работница имевшая двух отцов происходила от матки, которая была гомозиготна в отношении двух мутационных генов: bk/bk и ch/ch, осемененной спермой трутней диких и таких, которые имели только один мутационный ген bk или ch. Почти весь правый глаз этой пчелы был черный, а почти весь левый шартрез. Она могла образоваться из двухядерного яйца. оплодотворенного одним сперматозоидом дикого трутня и другим, несущим ген шартрез (рис. 6).
От той же матки происходила частично партеногенетическая пчела-работница, имевшая двух отцов. Её правый глаз и верхняя половина левого были цвета щартрез. Другая половина левого глаза сверху и снизу была черная, а остальная её часть темно-желтая (buff) (рис. 7 и 8). Все омматидии были одинаковой величины, характерной для пчелы-работницы. Омматидии чёрные и шартрез могли образоваться из двух ядер яйца оплодотворенных сперматозоидами двух разных трутней: дикого и несущего ген шартрез. Омматидии темно-желтые могли появиться только в результате слияния двух ядер яйца, так как в семеприёмнике матки не было сперматозоидов, в которых одновременно находились бы оба мутационные гены bk и ch, дающие темно-желтый фенотип глаза. Таким образом часть этой пчелы образовалась путём партеногенеза, а част при участии двух отцов (рис. 9).
THE ORIGIN OF UNUSUAL BEES
J. Woyke
Summary
During the course of investigation on bee genetics and physiology of reproduction the following unusual bees were found: mosaic drone, gynondromorph, worker bees originating from laying worker bees, bee having two fathers and a worker bee partly parthenogenetic and partly having two fathers.
Thanks to use of mutant bees and the adaptation of the artificial insemination the way of originating of these unusual bees was possible to explain.
A mosaic drone having one black and one nearly entire brick eye (Fig. 2) was found among the progeny of heterozygous laying worker (bk/bk+). (These laying worker bees were produced by a queen homozygous for brick genes bk/bk and inseminated by drones of wild type). It is suggested that the mentioned mosaic drone developed from an egg of two different nuclei (Fig. 3).
strona 63A comb to which the laying worker bees laid the eggs was put into an incubator. Among 148 number of progenies three worker bees were found what indicates 2% of the progeny to be females. These bees did not differ from other bees. They arose probably by union of two eggs nuclei having different sex alleles (Fig. 4).
A gynondromorph was found among the progeny of a queen heterozygous for three mutant genes: bk/bk+; ch/ch+; cd/cd+; inseminated with the semen of four types of drones i. e. wild (+), brick (bk), and chartreuse eyed (ch) and cordovan body colored (cd). The left side of this individual was of a worker bee and the right one of a drone. The worker bee part was of wild type while the drone part was cordovan with a brick eye (cd;bk). Since no drone used to the insemination of queen could have two mutant genes, the drone tissue of the gynondromorph could develop only from one of the egg nuclei. The worker bee tissue could develop from a second nucleus after being fertilized (Fig. 5).
A bee having two fathers derived from a queen homozygous for two mutant genes — brick and chartreuse (bk/bk; ch/ch). This queen was inseminated with semen from all three types of drones: wild (+), brick (bk) and chartreuse eyed (ch). One eye of the mentioned bee was almost whole black and the whole other one — almost chartreuse. This bee could develop from a binucleate egg fertilized with two different spermatozoons, one of a wild and one of a chartreuse eyed drone (Fig. 6).
A worker bee partly parthenogenetic and partly having two fathers was found among the progeny of the same queen bee homozygous for both brick and chartreuse eye genes (bk/bk; ch/ch). This genotype results in a buff phenotype. The queen was inseminated with the semen of three types of drones (+, bk and ch).
One eye of the worker bee was of wild type. The other eye was chartreuse in the upper part, buff in the lower part, and black in the middle and lower margin (Fig. 7 and 8). All facets were the size of worker eye. The chartreuse and black eye tissue could have arisen from two egg nuclei fertilized with two different sperms from two drones — one chartreuse and one black eyed. This resulted in two different zygotes (bk/bk+; ch/ch and bk/bk+; ch/ch+). Since no single sperm in the queen’s spermatheca could have given rise, after union with the egg nucleus, to the buff pigmented facets, it is suggested, that this tissue arose from the union of two egg nuclei (bk; ch × bk; ch → bk/bk; ch/ch). Thus one part of the worker bee arose probably by union of two eggs nuclei having different sex alleles (Fig. 4). the other part has two fathers (Fig. 9).
Errata — błędy druku znalezione podczas digitalizacji
- s. 51: „Rothenbuhler, Gowen i Park (1953)” → Rothenbuhler, Gowen i Park (1952)
- s. 53, podpis fig. 2: „Haed” → Head
- s. 54: „opisię” → opisie
- s. 55: „cześci” → części
- s. 57: „Notomiast” → Natomiast
- s. 58: „popoprzecznie” → poprzecznie
- s. 59, podpisy fig. 7 i 8 (2×): „Haed” → Head
- s. 59, podpis fig. 7: „charakteristic” → characteristic
- s. 60, piśmiennictwo: „Advences” → Advances
- s. 61, piśmiennictwo: „Evience” → Evidence
- s. 61, streszczenie: „патреногенетическая” → партеногенетическая
- s. 61, streszczenie: „искуственным” → искусственным
- s. 62, streszczenie: „щартрез” → шартрез
- s. 62, streszczenie: „а част при” → а часть при
- s. 62–63, summary (3×): „gynondromorph” → gynandromorph