

FOSFATAZY W MIODACH
tekst: Witold Zalewski
Pszczelnicze Zeszyty Naukowe, Rok IX, 1965 — Witold Zalewski
strona 1PSZCZELNICZE ZESZYTY NAUKOWE ROK IX, NR 1—2 LIPIEC 1965
Witold Zalewski
Zakład Pszczelnictwa I. S.
WSTĘP
Fosfatazy, to bardzo obszerna grupa enzymów, występująca w świecie zwierzęcym oraz roślinnym, którą Baldwin (1959), Caurtois (1959) oraz Skarżyński (1956) podzielili na trzy grupy — fosfomonoesterazy, fosfodiesterazy i polifosfatazy. Fosfomonoesterazy dzieli się z kolei na fosfatazy alkaliczne o optimum działania w pH 8—9 (typ I) i fosfatazy lekko kwaśne o optimum działania w pH 5,0—5,6 (typ II). Oprócz wymienionych typów fosfomonoesteraz występuje jeszcze wiele innych o optimum działania w pH: 2,5; 3,5—4 oraz 6,5.
Według Baldwina (1959) fosfomonoesterazy (ten typ enzymów omawia się w niniejszej pracy) nie wykazują swoistości w stosunku do rodnika organicznego i hydrolizują jednakowo wiele organicznych fosforanów.
CEL PRACY
Celem pracy było stwierdzenie obecności i oznaczenie aktywności fosfatazy w miodach krajowych. Rozwinięty cel pracy można podać szczegółowo w następujących punktach:
- Wytypowanie odpowiedniego substratu do oznaczania aktywności
Praca ta jest dysertacją doktorską autora. Promotor prof. dr Kazimierz Monikowski. Pełny tekst pracy znajduje się w Bibliotece Akademii Medycznej w Łodzi oraz w Bibliotece Instytutu Sadownictwa w Skierniewicach.
strona 2fosfatazy zarówno kwaśnej jak i alkalicznej oraz ustalenie dla tych oznaczeń optymalnego stężenia substratu.
- Ustalenie odpowiednich warunków pomiarów aktywności wspomnianych enzymów.
- Stwierdzenie źródła pochodzenia fosfataz w miodach, uwzględniając nektar, pyłek i obnóża.
- Oznaczenie aktywności fosfataz w miodach oraz w surowcach wymienionych poprzednio.
- Zbadanie rodzaju fosfataz występujących zarówno w miodach, jak i nektarach, pyłkach oraz w ciele pszczół.
- Ustalenie wpływu obróbki termicznej na aktywność fosfataz w miodach podgrzewanych oraz standaryzowanych.
- Zbadanie zmian aktywności fosfataz w miodach w okresie ich magazynowania i „starzenia” się.
- Oznaczenie aktywności fosfataz w miodach otrzymanych wyłącznie z cukru buraczanego.
- Określenie ilości fosforu ogólnego w miodach oraz zbadanie ewentualnej korelacji pomiędzy jego ilością a aktywnością fosfatazy.
PRZEGLĄD LITERATURY
W analizie żywności test fosfatazowy znalazł zastosowanie jako sprawdzian jakości produktów. Umożliwia on stwierdzenie, czy badany produkt spożywczy, zawierający fosfatazę, był poddany prawidłowej obróbce termicznej oraz czy nie wystąpiło wtórne zakażenie po uprzedniej pasteryzacji lub sterylizacji. Ogłoszono wiele prac nad zachowaniem się fosfatazy kwaśnej w pasteryzowanym mleku, śmietanie, maśle — Budsławski (1959), Posthumus (1956), serach — Schormüller i Lehmann (1955). Jacquet i Villette (1954) wykryli obecność fosfataz w mleku krowim o optimum aktywności przy pH 9,4, 5,5 i 4,0. Wiele prac o występowaniu, wykrywaniu i zachowaniu się fosfatazy kwaśnej i alkalicznej w mleku świeżym oraz pasteryzowanym w różnych temperaturach ogłosili Hansson (1961), Hansson i Rasmusson (1962), Kiermeier i Meinl (1961 a, b, d, e), Kiermeier, Fahmy, Kern (1961 c), Mc Farren i współpracownicy (1961), Schwendiger (1960). Według tych autorów optymalna temperatura aktywności dla fosfatazy kwaśnej mleka wynosi 50°. W piśmiennictwie krajowym Budsławski (1959) wspomina, że fosfatazy mleka są nieco odporniejsze na podwyższone temperatury niż lipaza. Hansson i Rasmusson (1962) otrzymali fosfonoesterazę w stanie względnie czystym. O obecności fosfatazy alkalicznej
strona 3i kwaśnej w jajach kurzych, szczególnie w żółtkach, donosi Schormüller i Hothorm (1956 a i 1959). Aktywność tych enzymów oznaczało wielu innych badaczy: Joyce i Grisolia (1960) w kiełkującej pszenicy, Acker i Lück (1958) w innych produktach zbożowych, a Nakamura (1959) w dyni, ziemniakach, liściach szpinaku i nasionach rzepaku.
Próba z fosfatazą była również stosowana do wykrywania jakości mięsa używanego na farsze do różnych gatunków wędlin. Fosfataza kwaśna i alkaliczna występuje w licznych tkankach i narządach jak kości, jelita, płuca, krew, nerki, wątroba itp. Więckowska i Monikowski (1956) stwierdzili, że enzym ten zostaje unieczynniony przez ogrzewanie mięsa w temperaturze 65—67° w czasie 5—10 minut, lub w temp. 70° od razu. Monikowski (1961) podaje, że poziom fosfatazy wzrasta w miarę „psucia” się mięsa pod wpływem drobnoustrojów. Jak bowiem wielokrotnie stwierdzono artykuły spożywcze, które w wyniku termicznej obróbki (sterylizacja, pasteryzacja, standaryzacja) nie wykazywały aktywności fosfataz, po wtórnym zakażeniu drobnoustrojami wykazywały ponownie silny wzrost aktywności tych enzymów.
Na aktywność enzymatyczną fosfataz wpływać może wiele czynników, zarówno stymulujących jak i hamujących. Ahmed i King (1960) oraz Mayer i współpracownicy (1961) stwierdzili, że niektóre metale dwuwartościowe stymulują działanie fosfataz, inne inhibitują to działanie. Również wg Ahmedá i Kinga (1960) oraz Glicka (1957) jony Mg++ w niektórych przypadkach stymulowały działanie tego enzymu, w innych natomiast przypadkach, jak podaje Kiermeier i Meinl (1961 f) oraz Wiśniewski (1963) — zachowywały się wręcz przeciwnie. Glick (1957) stwierdził, że fosfataza kwaśna, w zależności od pochodzenia, np. z nerki, wątroby, śledziony czy prostaty, wykazywała odmiennie własności fizyko-chemiczne. O hamującym działaniu na fosfatazę kwaśną fluorków, arsenianów, cyjanków, winianów i formaldehydu donosi między innymi Colowick i Kaplan (1955), Glick (1957), Kiermeier i Meinl (1961 f), Mayer i współpracownicy (1961), Nakamura (1959) i Wiśniewski (1963). Hansson i Rasmusson (1962) zaobserwowali, że stężenie jonów wodorowych odgrywa zasadniczą rolę przy pomiarach aktywności enzymu.
Według badań Szczygłowej i Secomskiej (1955) oznaczanie w organizmie ludzkim aktywności fosfatazy kwaśnej umożliwia wykrywanie wczesnych stadiów krzywicy czy osteomalacji. O wzroście aktywności fosfotazy kwaśnej u ludzi chorych na raka prostaty lub gruczołu mlecznego donosi Bogojawlenskaja (1956), Glick
strona 4(1957), Sterkowicz (1964). Poziom tych enzymów w zdrowych oraz chorych tkankach i narządach ustroju ludzkiego oznaczał między innymi Kay (1930) i Madsen (1952).
W występowaniu fosfataz w miodach wiemy bardzo mało. W dostępnym piśmiennictwie natrafiono tylko na prace Girego (1938) o oznaczaniu fosfotazy w miodach, a Bömer (1938) wspomina o występowaniu w miodach tego enzymu. W okresie powojennym ogłosił jedyne doniesienie na ten temat Działoszyński i Kuik (1963). Aktywność fosfataz dotychczas obliczało się przeważnie w jednostkach Bodanskýego — Bogojawlenskaja (1956), King-Armstronga, Hagginsa, Kaya i Besseya — Sterkowicz (1964). Ostatnio za jednostkę jakiegoś enzymu przyjmuje się taką jego ilość, która katalizuje w określonych warunkach przemianę jednego mikromola substratu w ciągu jednej minuty — Enzymy (1963).
Przystępując do oznaczeń aktywności fosfatazy w miodach przypuszczano, że istnieje zależność pomiędzy aktywnością fosfatazy, a ilością fosforu ogólnego. Jak bowiem wiadomo fosfór spełnia istotną rolę w metabolizmie ustroju, szczególnie w wapnieniu kości. Dotychczas opublikowano bardzo dużo prac o zawartości fosforu w artykułach spożywczych, jednak o występowaniu jego w miodach wiemy dotychczas niewiele. Ostatnią pracę opublikował von Fellenberg wspólnie z Rusieckim (1938), oznaczając kwas fosforowy w 149 próbkach miodów szwajcarskich. Ilościowe oznaczenie fosforu w miodach krajowych wydawało się celowe, tym bardziej, że nikt dotychczas nie opublikował doniesienia na ten temat.
CZĘŚĆ DOŚWIADCZALNA
MATERIAŁ
Nektar do badań zbierany był z różnych gatunków roślin za pomocą specjalnego aparatu, działającego na zasadzie pompy ssącej z motorkiem, zasilanym prądem stałym z akumulatora — Bornus (1962). Kwiaty zabezpieczano przed odwiedzinami owadów, osłaniając je poprzedniego dnia izolatorami z gazy technicznej. Technika pobierania nektaru polegała na ostrożnym dotykaniu końcówką kapilary kropel nektaru w kwiatach. Końcówka kapilary, którą pobierano nektar, zaopatrzona była w elastyczną nasadkę z plastiku, która chroniła przed ewentualnymi uszkodzeniami miękkiej, delikatnej tkanki nektarników i przedostawaniem się soku komórkowego do nektarników. Nektar zbierano do probówek
strona 5szklanych i przechowywano w lodówce do chwili wykonania oznaczeń aktywności fosfataz w temperaturze —4°.
Zbieranie nektaru jest czynnością bardzo czasochłonną. Na uzyskanie 5—6 ml nektaru z trędownika lub trojeści potrzeba przeciętnie 2—3 godzin, z naparstnicy czy jasnoty białej natomiast 6—8 godzin. Zbieranie nektaru można było dokonywać tylko w godzinach rannych (po wyschnięciu rosy) lub wieczorem. Ze względu na wysoką temperaturę w południe, nektarniki nie wydzielały nektaru, a znajdujące się od rana krople bardzo szybko wysychały i nie nadawały się do pobierania kapilarą.
Obnóża pyłkowe odbierano pszczołom przy użyciu połowiaczy z kratówką Böttchera, zakładanych na wylotki uli. Pyłek dla oznaczeń aktywności fosfatazy kwaśnej zbierano, wytrząsając go do naczynek wagowych z pylników kwiatów ciętych.
Pszczoły, w których ciele oznaczano aktywność fosfatazy kwaśnej i alkalicznej, pochodziły z pasieki Zakładu Pszczelnictwa w Skierniewicach. Badania powyższe przeprowadzano kilkakrotnie w miesiącu maju i czerwcu pobierając z uli do oznaczeń próbki zawierające około 200 żywych pszczół lotnych. Do bezpośrednich oznaczeń używano 50 pszczół, w których głowach i w tułowiach oznaczano aktywność fosfatazy metodą opisaną na s. 11 niniejszej pracy.
WYBÓR SUBSTRATU
Przy oznaczaniu aktywności fosfataz w produktach spożywczych używane są różne substraty. Przed seryjnymi oznaczeniami sprawdzono zatem przydatność niektórych z nich do określania aktywności fosfataz w miodach. W doświadczeniach użyto takie substraty, które dawały produkty rozpadu łatwe do oznaczeń kolorymetrycznych. Stwierdzono bowiem, że nie wszystkie produkty hydrolizy substratu można oznaczyć ilościowo ze względu na podobne zabarwienia roztworu miodu oraz powstającego związku. Istotnym momentem był też czas trwania oznaczeń.
Do seryjnych oznaczeń nie zastosowano soli sodowej kwasu fenoloftaleinofosforowego, ponieważ wydzielonej fenoloftaleiny nie można było oznaczyć ilościowo.
Soli sodowej kwasu p-nitrofenylofosforowego również nie użyto do seryjnych oznaczeń, ponieważ czas inkubacji w oznaczeniach aktywności fosfatazy alkalicznej wynosi 24 godz., a dla kwaśnej 48 godz. Również poważnym mankamentem tej metody była trudność ilościowego oznaczenia żółtego barwnika — nitrofenolu, wydzielonego w wyniku enzymatycznej hydrolizy substratu, w środowisku roztworu miodu przeważnie
strona 6zabarwionego na żółto. Błąd oznaczeń dochodził do kilkudziesięciu procent.
Badając wiele substratów do oznaczeń aktywności fosfataz w miodach wybrano taki, który wymagał krótkiego czasu termostatowania oraz dawał związek dający się stosunkowo łatwo i szybko oznaczać kolorymetrycznie.
Wymagania metodyczne spełniała sól dwusodowa kwasu fenylofosforowego, używana do oznaczeń fosfataz w środkach spożywanych; Schormüller i Lehmann (1955, 1956b), Schormüller, Lehmann i Langer (1960), Kiermeier i Meinl (1961a) oraz Lück i Schillinger (1958).
Wzorując się na metodzie Schormüllera i współpracowników dla oznaczania aktywności fosfatazy kwaśnej i alkalicznej w miodach, opracowano własną oryginalną metodę.
METODA OZNACZANIA FOSFATAZY KWAŚNEJ W MIODACH I NEKTARACH
Odczynniki: a) Weronalowy roztwór buforowy o pH 5,6 przygotowany wg Michaelisa-Bömer (1935). W przypadku oznaczania aktywności fosfatazy alkalicznej przygotowywano również wg Michaelisa weronalowy roztwór burofowy o pH 9,6,
b) Substrat do oznaczania aktywności fosfatazy. Odważone 50 mg (z dokładnością do 0,1 mg) soli dwusodowej kwasu fenylofosforowego, rozpuszczano w weronalowym roztworze buforowym, przygotowanym wg punktu a, przenoszono ilościowo do kolbki miarowej na 100 ml i uzupełniano weronalowym roztworem buforowym,
c) Roztwór 0,5% 2,6 dwubromochinonochlorimidu. Odważano na wadze analitycznej 50 mg 2,6 dwubromochinonochlorimidu i rozpuszczano w 10 ml 96-procentowego etanolu. Roztwór należało przygotowywać na 5—10 minut przed użyciem,
d) 20% roztwór kwasu trójchlorooctowego,
e) 1% roztwór MgSO4 · 7 H2O,
f) 0,5 molowy roztwór Na2 CO3 bezwodnego,
g) woda chloroformowa przygotowana na wodzie redestylowanej.
Wykonanie oznaczeń. Przygotowywano 10-procentowy roztwór podstawowy miodu. W tym celu odważono na wadze analitycznej z dokładnością do 0,1 mg 10 g miodu pobranego z większej, dokładnie wymieszanej ca 250—500-gramowej próbki, rozpuszczano w wodzie redestylowanej, przenoszono ilościowo do kolbki miarowej na 100 ml i uzupełniano wodą chloroformową. Do kolbki stożkowej pojemności 50 ml wlewano 5 ml 10-procentowego podstawowego roztworu miodu, następnie
strona 7kolejno 6 ml roztworu substratu, 3 ml weronalowego roztworu buforowego, 0,5 ml roztworu MgSO4 i 0,5 ml wody redestylowanej, nasyconej chloroformem. Ogólna objętość mieszaniny powinna wynosić 15 ml. Oznaczanie wykonywano w 3 do 5 powtórzeniach tego samego podstawowego roztworu miodu.
Po dodaniu wszystkich odczynników zamykano kolbki szczelnie korkami gumowymi i umieszczano w termostacie o temperaturze 37° na 2 godziny i 15 minut (w ciągu 15 minut zawartość kolbek osiągała temperaturę 37°). Równocześnie przygotowywano dwie ślepe próby a i b. Do pierwszej (a) w miejsce 6 ml substratu dodawano taką samą objętość weronalowego roztworu buforowego, natomiast do drugiej (b) w miejsce roztworu 5 ml miodu, 5 ml wody redestylowanej nasyconej chloroformem. Próba a służyła jako „standard” w spektrofotometrycznych oznaczeniach, natomiast próba (b) wskazywała, czy same odczynniki nie powodują wydzielania fenolu z substratu. Pozostałe odczynniki dodawano w ilościach wyżej podanych. Po 2 godz. i 15 minutach próbki wyjmowano z termostatu i w celu przerwania reakcji enzymatycznej dodawano 2 ml 20% roztworu kwasu trójchlorooctowego, następnie pozostawiano w spokoju na 30 minut. Dla oddzielenia wytrąconego z miodu osadu badany roztwór sączono przez twardy sączek. Pipetą na wylew pobierano, do kolbek stożkowych na 50 ml klarownego przesączu 10 ml, dodawano 6 ml wody redestylowanej i doprowadzono roztworem węglanu sodu do pH w granicach 8,8—9,2. Następnie wywoływano niebieskie zabarwienie wydzielonego z substratu fenolu, dodając do każdego powtórzenia 0,2 ml świeżo przygotowanego etanolowego roztworu 2,6 dwubromochinonochlorimidu i uzupełniano wodą chloroformową w kolbkach na 22 ml do kreski. Zawartość kolbek miarowych po dokładnym wymieszaniu pozostawiano w ciemności przez 30 minut.
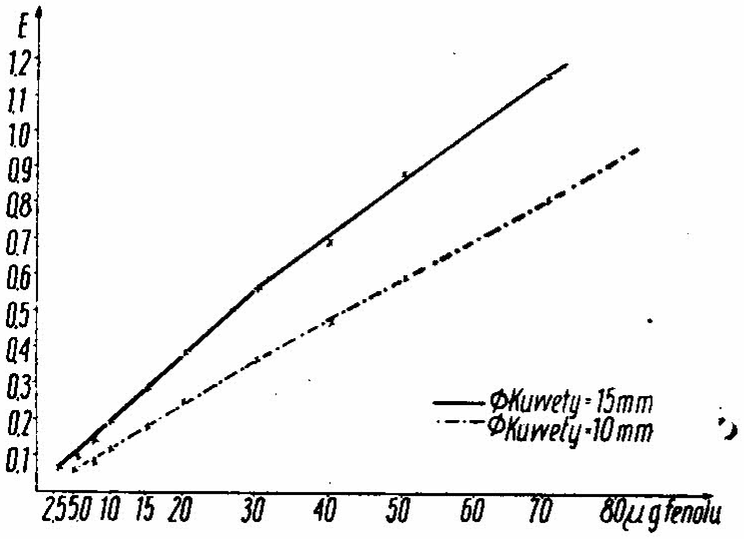
Intensywność niebieskiego zabarwienia oznaczano na spektrofotometrze przy długości fali 610 mμ, stosując kuwety średnicy 10 lub 15 mm.
Aktywność enzymatyczną fosfataz, wyliczoną z krzywej kalibracji dla roztworu fenolu, podawano w mikromolach hydrolizowanego substratu, w przeliczeniu na 100 g suchej masy nektaru lub miodu.
Po przeprowadzeniu kilkunastu wstępnych oznaczeń, postanowiono
strona 8określić dokładność zaadaptowanej przeze mnie metody przez obliczenie współczynnika zmienności. W tym celu wykonano 12 oznaczeń aktywności fosfatazy kwaśnej miodu akacjowego (dośw. 68) i stwierdzono, że wartość średnia wynosiła 480 μmoli hydrolizowanego substratu (463—497 μmoli). Dla otrzymanych wyników obliczono wariancję (zmienność) oraz współczynnik zmienności i stwierdzono, że wynosi on dla badanego miodu 2,23%. Metoda daje więc wyniki wyrównane i dlatego należy ją uznać za wystarczająco dokładną. W tego rodzaju doświadczeniach dopuszcza się 5 procentowy współczynnik zmienności.
Zmienność błędu uzyskano po wyeliminowaniu ze zmienności całkowitej składnika zmienności obiektywnej. Pojedyńcze powtórzenia stanowiły średnie dla naważek miodów. Przy ocenie istotności różnic korzystano z testu „t” Studenta. W badaniach przyjęto trzy poziomy wiarygodności α1 = 0,05, α2 = 0,01 i α3 = 0,001. Odpowiadające im wartości różnicy granicznej (wartości przedziału ufności dla różnic) obliczono z wzoru: m = t · Sd, gdzie t — jest współczynnikiem rozkładu Studenta.
Sd — jest błędem standardowym różnicy.
Schematycznie reakcja hydrolizy substratu przez enzym ma następujący przebieg:
2Na+ + HPO4– HPO4 C6H5N2O4 P · 2H2O fosfataza ⇄ C6H5OH + H3PO4 wyrażony jako kw. fos forowy 254,1 μg 94,11 μg 98,00 μg cząsteczka substratu zwalnia cząsteczkę oraz cząsteczkę ↓ ↓ fenolu kwasu fosforowego
Z równania tego wynika, że 1 μmol soli dwusodowej kwasu fenylofosforowego odpowiada 254,1 μg substratu i zwalnia 94,11 μg fenylu oraz 98 μg kwasu fosforowego. Przez kilka pierwszych lat oznaczeń aktywność fosfatazy kwaśnej podawano w μg wydzielonego z substratu fenolu. Na rok przed ukończeniem pracy po zapoznaniu się z wymaganiami Komisji Enzymowej — Enzymy (1963) przeliczono dotychczasowe wyniki na μmole hydrolizowanego substratu. Aktywność fosfatazy kwaśnej oznaczono po 135 minutach inkubacji w termostacie, a nie po pierwszej minucie, ponieważ aktywność fosfatazy kwaśnej w miodach jest raczej niska i podawane wyniki po 1-szej minucie byłyby rzędu 2,1, 1/2, 1/30, 1/80 μmola, co utrudniałoby ich interpretację.
Przy oznaczaniu aktywności fosfataz w nektarach postępowano podobnie jak przy miodach, lecz odważano 5 g nektaru, zebranego z roślin jednego gatunku, przenoszono ilościowo do kolbki miarowej na 50 ml i uzupełniano wodą chloroformową.
strona 9OZNACZANIE AKTYWNOŚCI FOSFATAZY KWAŚNEJ W PYŁKACH LUB W OBNÓŻACH
Odważone 0,1 g pyłku lub obnóży *) (z dokładnością do 0,1 mg) rozcierano z małą ilością wody redestylowanej na gęstą papkę w zlewce na 50 ml, następnie przenoszono ilościowo do kolbki miarowej na 100 ml i uzupełniano wodą redestylowaną, nasyconą chloroformem. Kolbkę z zawiesiną pyłków, po dokładnym wymieszaniu pozostawiano na 12—18 godzin w temperaturze +4°, wstrząsając nią od czasu do czasu. Osad pyłków wirowano następnie przez 7 minut przy 4 tys. obrotów na minutę, pobierano pipetą 10 ml klarownego roztworu przenoszono do kolbki miarowej na 100 ml i uzupełniano wodą redestylowaną. Był to wyciąg zawiesiny pyłków. Z przygotowanego w ten sposób wyciągu pobierano 5 ml płynu, oznaczano w nim aktywność fosfatazy, dodając pozostałe odczynniki w takich samych ilościach, jak podczas oznaczania fosfatazy w miodach. W przypadku, gdy aktywność fosfatazy kwaśnej badanych pyłków była wysoka (ponad 600 μmoli), rozcieńczano odpowiednio roztwór podstawowy, aby można było wykonać pomiary na spektrofotometrze. Wyniki podawano w μmolach rozkładanego substratu w czasie enzymatycznej hydrclizy, w przeliczeniu na 100 g pyłków lub obnóży.
OZNACZANIE AKTYWNOŚCI FOSFATAZ W CIELE PSZCZÓŁ
Oznaczenie aktywności fosfatazy kwaśnej i alkalicznej w ciele pszczół wykonano kilkakrotnie. Odcięte pszczołom 50 głów lub 50 tułowi ucierano w moździerzu w weronalowym roztworze buforowym o pH 5,6 lub 9,6 (dla oznaczeń fosfatazy alkalicznej). Otrzymaną zawiesinę zlewano następnie do kolbek miarowych pojemności 50 ml i uzupełniano do kreski odpowiednim roztworem buforowym. Następnie, po odwirowaniu roztartych głów i tułowi przy 3,5—4 tys. obrotów na minutę, oznaczano w klarownym roztworze aktywność fosfatazy kwaśnej i alkalicznej. Wyniki aktywności fosfatazy kwaśnej i alkalicznej podawano w μmolach w przeliczeniu na jedną głowę lub jeden tułów.
OZNACZANIE FOSFORU OGÓLNEGO (NIEORGANICZNEGO)
Na podstawie wstępnych doświadczeń ustalono, że w miodach występują stosunkowo małe ilości fosforu, rzędu 3—5 mg w przeliczeniu na 100 g suchej masy. Do oznaczeń fosforu ogólnego w miodach zastosowano
*) Pszczoły zbierające pyłek formują z niego obnóża w tak zwanych koszyczkach na goleniach odnóży tylnej pary. Obnóża zawierają niewielki dodatek nektaru lub miodu.
strona 10metodę Lowry-Lopeza, podaną przez Schormüllera (1954). Metoda ta w przeciwieństwie do innych ma tę zaletę, że jest bardzo dokładna, selektywna i wymaga tylko niewielkiej ilości badanego materiału.
Odczynniki a) octanowy roztwór buforowy o pH 4,0,
b) 1-procentowy roztwór kwasu askorbinowego w wodzie,
c) 2-procentowy roztwór molibdenianu amonu w 0,05 n kwasie siarkowym.
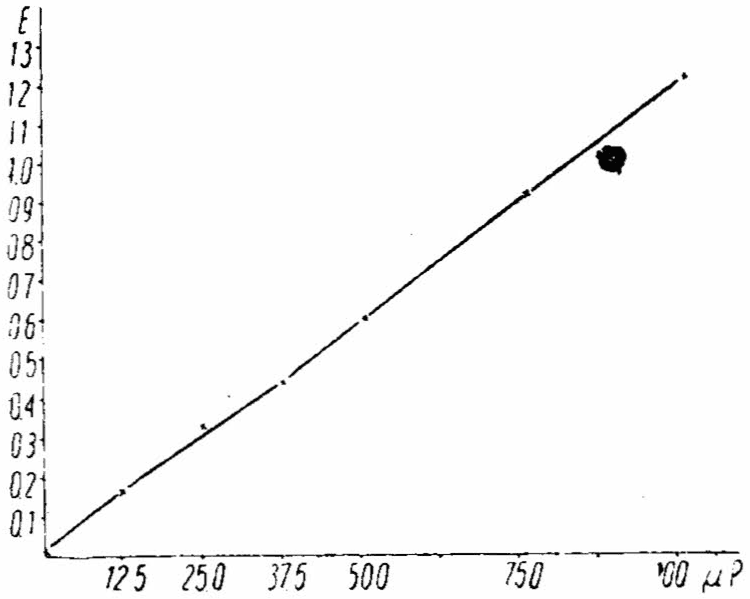
Wykonanie oznaczeń. Przygotowywano 20% roztwór, odważając 10,0 g badanego miodu z dokładnością do 0,1 mg i rozpuszczając następnie odważkę w małej ilości wody destylowanej. Tak przygotowany roztwór przenoszono ilościowo do kolby miarowej na 50 ml i uzupełniano wodą destylowaną do kreski, pozostawiając go w spokoju na 1 godzinę. Następnie płyn wirowano przy 3,5 tys. obr./min. przez 10 minut. Do oznaczeń pobierano do kolbki miarowej na 10 ml od 2 do 6 ml klarownego przesączu, dodawano 2 ml octanowego roztworu buforowego, 0,8 ml roztworu molibdenianu amonowego, 0,8 ml roztworu kwasu askorbinowego i uzupełniano do kreski octanowym roztworem buforowym. Zawartość kolbki, po zamknięciu korkiem szklanym, dokładnie mieszano i pozostawiano w ciemności na 10 minut. Po tym czasie mierzono intensywność niebieskiego zabarwienia na kolorymetrze Pulfricha w stosunku do ślepej próby, przy użyciu filtru S 66 i kuwety o grubości warstwy 10 mm. Wyniki odczytywano z dokładnością ± 2 μg fosforu z krzywej kalibracji, przygotowanej na czystym KH2PO4 (otrzymanym wg Sörensena), podając je następnie w μg fosforu, w przeliczeniu na 100 g suchej masy miodu.
WYNIKI
Badania nad występowaniem fosfataz w ciele pszczół. W celu wszechstronnego przebadnia źródeł pochodzenia fosfataz miodowych, postanowiono sprawdzić, czy w ciele pszczół występuje fosfataza kwaśna i alkaliczna i czy enzymy te są wydzielane do miodu. Na załączonej
strona 11tabeli przedstawiono wyniki oznaczeń. Stwierdzono, że aktywność fosfatazy kwaśnej i alkalicznej w głowach pszczół była prawie taka sama i wynosiła odpowiednio dla fosfatazy kwaśnej 0,17 μmola, a dla alkalicznej 0,20 μmola. Natomiast aktywność fosfatazy alkalicznej w tułowiach była przeszło osiem razy niższa niż kwaśnej.
Tabela 1 Aktywność fosfataz w organizmie pszczół
| Część ciała | Ilość hydrolizowanego substratu w μmolach — Fosfataza: kwaśna | Ilość hydrolizowanego substratu w μmolach — Fosfataza: alkaliczna |
|---|---|---|
| główki | 0,17 | 0,20 |
| tułowia | 0,53 | 0,07 |
Zastanawiające jest, że w miodach stwierdzono tylko obecność fosfatazy kwaśnej a nigdy alkalicznej, chociaż występowanie fosfatazy alkalicznej udowodniono zarówno w głowach jak i tułowiach pszczół. Wskazywałoby to, że fosfataza alkaliczna jest tu raczej enzymem wewnątrzkomórkowym, natomiast fosfatazę kwaśną pszczoły wydzielają, chociaż w niewielkich ilościach, także do miodu.
AKTYWNOŚĆ FOSFATAZY KWAŚNEJ NEKTARÓW I PYŁKÓW
Po wykonaniu wielu badań wstępnych przekonano się, że w nektarach znajduje się również niewielki dodatek pyłków, pochodzących z roślin badanych gatunków.
Jak wynika z załączonej tabeli 2 aktywność fosfatazy kwaśnej przebadanych nektarów wahała się w bardzo szerokich granicach, bo od 15 μmoli dla nektaru ze żmijowca do 2750 μmoli dla nektaru z pszczelnika mołdawskiego. Tylko z 4 gatunków roślin aktywność fosfatazy była niższa od 100. Pszczoły odparowują z przyniesionego do ula nektaru część wody i dlatego aktywność fosfatazy kwaśnej powinna w miodzie nawet wzrosnąć. Powyższe wyniki uzupełniały więc prace Lüttego (1961, 1962) nad biochemicznym składem nektarów, gdyż wspomniany autor o aktywności fosfatazy kwaśnej nic nie pisze.
W dalszej części pracy stwierdzono, że pyłki kwiatowe, znoszone masowo przez pszczoły do ula wykazują bardzo wysoką aktywność fosfatazy kwaśnej.
strona 12Barwa obnóży zależy przeważnie od gatunku roślin, z których były one zbierane. Brane do doświadczeń obnóża miały zabarwienie szarożółte, brązowe lub pomarańczowe. W dwóch rodzajach obnóży oznaczano pyłek w celu określenia gatunków roślin, z których one pochodziły *) W doświadczeniu 157 obnóża posiadały przewagę pyłków z koniczyny
Tabela 2 Aktywność fosfatazy kwaśnej nektarów
| Pochodzenie nektaru | Liczba prób | Ilość hydrolizowanego substratu w μmolach |
|---|---|---|
| Żmijowiec pospolity — Echium vulgare L. | 3 | 15,0 |
| Trojeść syryjska — Asclepias syriac L. | 2 | 44,0 |
| Szałwia lekarska — Salvia officinalis L. | 2 | 66,0 |
| Ruta ogrodowa — Ruta graveolens L. | 2 | 88,0 |
| Jasnota biała — Lamium album L. | 3 | 486,0 |
| Trędownik bulwiasty — Scrophularia nodosa L. | 3 | 516,0 |
| Trędownik bulwiasty — Scrophularia nodosa L. | 2 | 578,0 |
| Naparstnica wełnista — Digitalis lanata Ehrh. | 3 | 923,0 |
| Naparstnica purpurowa — Digitalis purpurea L. | 2 | 973,0 |
| Pszczelnik mołdawski — Dracocephalum moldavicum L. | 3 | 2.750,0 |
czerwonej, a w doświadczeniacu 158 z bławatka. Oznaczenie aktywności fosfatazy kwaśnej w pyłkach przeprowadzono po rozcieńczeniu analizowanego materiału ze względu na bardzo wysoką jego aktywność. Ogółem oznaczeń aktywności tego enzymu w nektarach, pyłkach i obnóżach wykonano 25.
Aktywność fosfatazy w przebadanych obnóżach i pyłkach kwiatowych była nadspodziewanie wysoka. Z wyjątkiem pierzgi z dziurawca, której aktywność wynosiła 12,60 μmola pozostałe obnóża charakteryzowały się o wiele wyższą aktywnością. Obnóża żółtobrązowe (dośw. 164) wykazały aktywność 7250 μmoli, obnóża z przewagą pyłków bławatka — 12 700 μmoli (dośw. 158), obnóża z koniczyny czerwonej — 13 100 μmoli (dośw. 157). Największą jednak aktywność wykazywały obnóża żółto-brązowe (dośw. 153) — 133 000 i jasnożółte (dośw. 163) 176 000 μmoli. Aktywność enzymatyczna badanych obnóży wahała się więc w bardzo szerokich granicach. Po statystycznym przeanalizowaniu wyników nie stwierdzono żadnej korelacji pomiędzy barwą obnóży, terminem ich zbioru i aktywnością enzymatyczną.
*) Mikroskopowe badania niektórych pyłków wykonała Pani Prof. Z. Demianowicz, za co składam Jej w tym miejscu serdeczne podziękowanie.
strona 13Oprócz obnóży zbadano także i pyłek kwiatowy kilku gatunków roślin. Pyłek z astrów ogrodowych wykazywał aktywność fosfatazy kwaśnej 30 000 μmoli (dośw. 181), ze słonecznika 37 000 i 67 400 (dośw. 180
Tabela 3 Aktywność fosfatazy kwaśnej obnóży i pyłków
| Rodzaj surowca | Liczba prób | Ilość hydrolizowanego substratu w μmolach |
|---|---|---|
| Pierzga dziurawca | 2 | 1.260 |
| Obnóża żółto-brązowe | 2 | 7.250 |
| Obnóża żółto-brązowe z przewagą pyłku bławatka | 3 | 12.650 |
| Obnóża żółto-brązowe z przewagą pyłku koniczyny | 2 | 13.100 |
| Obnóża szaro-żółte | 2 | 13.700 |
| Obnóża szaro-żółte | 2 | 19,000 |
| Obnóża szaro-żółte | 2 | 40.700 |
| Obnóża pomarańczowe | 2 | 59.000 |
| Obnóża żółto-brązowe | 2 | 59.300 |
| Obnóża żółto-brązowe | 2 | 133.000 |
| Obnóża jasnożółte | 2 | 176.000 |
| Pyłek z astrów ogrodowych | 3 | 30.000 |
| Pyłek z słonecznika | 3 | 37.000 |
| Pyłek z słonecznika | 3 | 67.400 |
| Pyłek z łubinu ozdobnego | 2 | 145.500 |
i 316) a z łubinu ozdobnego 145 500 μmoli (dośw. 185). Aktywność fosfatazy kwaśnej pyłków wahała się więc w szerokich granicach, analogicznie zresztą jak i w obnóżach.
Oznaczanie aktywności fosfatazy w pyłkach przeprowadzano w materiale powietrznie suchym, a więc zawierającym jeszcze stosunkowo dużo wody. Obnóża przechowywane przez kilka tygodni w pomieszczeniach suchych i przewiewnych traciły część wody i to powodowało wzrost aktywności fosfatazy o 50 a nawet i 100%. W nektarach, pyłkach oraz obnóżach nie stwierdzono wcale aktywności fosfatazy alkalicznej.
AKTYWNOŚĆ FOSFATAZY KWAŚNEJ MIODÓW OTRZYMANYCH Z SACHAROZY
Fosfataza kwaśna występuje w dość dużych ilościach w surowcach (nektar i pyłek), z których pszczoły produkują miód. Z surowców tych przedostaje się ona następnie do miodu i dlatego aktywność fosfatazy można by prawdopodobnie wykorzystać jako kryterium pochodzenia
strona 14miodu naturalnego. Dla sprawdzenia tego przypuszczenia należało wyprodukować miód z sacharozy i oznaczyć aktywność jego fosfatazy kwaśnej.
Wyniki mogłyby dać rozwiązanie problemu, absorbującego od szeregu lat badaczy, jak na drodze chemicznej lub fizyko-chemicznej odróżnić miody naturalne od zafałszowanych syropem cukrowym. Małe rodzinki pszczele umieszczano pod karkasami, zajmującymi powierzchnię ca 36 m2, odbierając im z plasterka cały zapas pożywienia. Następnie podkarmiano je przez 3 do 5 dni małymi, około 100 ml porcjami 60% syropu cukrowego. Na poletkach pod karkasami, w których znajdowały się rodzinki, rosła tylko kilkucentymetrowa trawa i pszczoły nie mając naturalnego wziątku pobierały wyłącznie podawany im syrop. Po ostatnim podkarmieniu odczekiwano 2—3 dni, ażeby pszczoły miały czas odparować zgromadzoną w plastrach substancję do konsystencji miodu, po czym oznaczano aktywność fosfatazy kwaśnej. Aktywność fosfatazy otrzymanego w ten sposób produktu, który trudno nazwać miodem, wynosiła poniżej 10,6 μmola (dośw. 288), a w dośw. 285 — 11,6 μmola.
W jednym z przeprowadzanych doświadczeń pod karkasem obok trawy znajdowało się poletko o powierzchni kilku m2 z kwitnącym dziurawcem. Pszczołom znajdującym się pod karkasem podawano syrop cukrowy analogicznie jak w poprzednich doświadczeniach. W plasterku wspomnianej rodzinki zaobserwowano obok komórek z miodem z syropu cukrowego kilka komórek z pierzgą dziurawca. W tym przypadku aktywność fosfatazy badanego miodu była nieco wyższa i wynosiła 22,8 μmola.
Na podstawie wyników doświadczeń wnioskować należy, że aktywność fosfatazy kwaśnej miodów otrzymanych przez podkarmianie pszczół syropem cukrowym jest bardzo niska, mniejsza około 4—8 razy od aktywności naturalnych miodów charakteryzujących się niską aktywnością enzymatyczną, a niższa około 16 razy od wyliczonej dla miodów średniej aktywności. Przytoczone doświadczenia wskazywałyby, że pszczoły same wydzielają i dodają do miodu nieznaczne ilości fosfatazy kwaśnej, o której w zasadzie nie wiemy, czy jest ona identyczna z fosfatazą kwaśną pochodzenia roślinnego — z nektaru lub pyłku.
OZNACZENIA FOSFORU OGÓLNEGO W MIODACH
Zawartość fosforu ogólnego (nieorganicznego) w przebadanych próbkach miodu była bardzo różna i wynosiła w przypadku miodu akacjowego 3470 μg — jest to najniższy wynik. Największe ilości fosforu wykryto w próbkach miodu spadziowego, bo aż 7390 μg i gryczanego — 8020 μg.
strona 15W pracy niniejszej wyniki oznaczeń wyrażono w μg fosforu na 100 g suchej masy miodu. Chcąc więc porównać te wyniki z wynikami von Fellenberga i Rusieckiego (1938), przeliczano je na mg P2O5 w 100 g miodu. Po wykonaniu tych obliczeń dla miodu akacjowego otrzymano 18,44 mg a dla gryczanego 42,5 mg % P2O5. Otrzymane wy-
Tabela 4 Zawartość fosforu ogólnego w miodach
| Odmiana miodu | Liczba prób | Ilość μg fosforu w przeliczeniu na 100 g s.m. miodu |
|---|---|---|
| Akacjowy | 3 | 3470 |
| wielokwiatowy | 2 | 3530 |
| wielokwiatowy | 2 | 3790 |
| wrzosowy | 3 | 4120 |
| wrzosowy | 3 | 4830 |
| rzepakowy | 2 | 5070 |
| rzepakowy | 2 | 5490 |
| wielokwiatowy | 2 | 5920 |
| rzepakowy | 3 | 6030 |
| spadziowy | 2 | 7060 |
| spadziowy | 2 | 7390 |
| gryczany | 3 | 7780 |
| gryczany | 3 | 8020 |
niki okazały się zbliżone do przytoczonych przez wyżej wspomnianych autorów. Stwierdzono, że miód wrzosowy zawierał w 100 g s. m. 4120 μg fosforu ogólnego i wykazywał aktywność fosfatazy kwaśnej 504,6 μmola, inny natomiast miód wrzosowy zawierał fosforu 4830 μg, a aktywność fosfotazy tego miodu wynosiła 145,8 μmola. Z przebadanych dwóch próbek miodów spadziowych pierwszy zawierał 7060 μg fosforu, a drugi 7390 μg, natomiast obydwa te miody wykazywały różną aktywność fosfatazy kwaśnej, pierwszy — 291,8 μmola, a drugi tylko 87,4 μmola. Miód drugi oznaczał się nieznacznie wyższą zawartością fosforu, jednak wykazywał przeszło trzy razy niższą aktywność fosfatazy kwaśnej. Przebadane dwa miody gryczane wykazywały podobną zawartość fosforu chociaż charakteryzowały się różną aktywnością fosfatazy kwaśnej.
Porównując wyniki oznaczeń zawartości fosforu ogólnego z aktywnością fosfatazy kwaśnej w miodach nie zaobserwowano żadnej korelacji pomiędzy tymi dwoma składnikami.
Ze względu na bardzo małe ilości fosforu organicznego, nie można było oznaczyć go ilościowo.
strona 16WYZNACZENIE OPTYMALNEGO STĘŻENIA MIODU PRZY OZNACZENIU AKTYWNOŚCI FOSFATAZY
W pracach nad oznaczaniem aktywności fosfataz Schormüller i Lehmann (1955), Kiermeier i Meinl (1961a) wykazali potrzebę ustalenia optymalnego stężenia substratu rozpuszczonego w weronalowym roztworze buforowym. Doniesienie Schormüllera i Lehmanna dotyczyły oznaczenia aktywności fosfatazy w serach bądź w jajach kurzych, a więc w produktach wybitnie białkowych. Autorzy ustalili, że optymalne stężenie substratu do tych oznaczeń wynosić powinno 50 mg soli dwusodowej kwasu fenylofosforowego, rozpuszczonego w 100 ml roztworu buforowego. W oznaczeniu aktywności fosfatazy kwaśnej miodów nikt dotychczas nie stosował wspomnianego substratu. Wzorując się na pracach Schormüllera i Lehmanna należało ustalić najodpowiedniejsze jego stężenie. W tym celu wykonano serię doświadczeń, stosując 6 ml 0,05-procentowego roztworu substratu rozpuszczonego w weronalowym roztworze buforowym o pH 5,6 i 5 ml roztworu miodu wielokwiatowego o stężeniu 5, 10, 25 albo 40-procentowym. Pozostałe odczynniki używano w ilościach podanych w metodzie oznaczeń. Po 1, 2, 3, i 4-godzinnym inkubowaniu w termostacie w 37° oznaczano kolorymetrycznie ilość fenolu wydzielonego z substratu. Obliczono, że 6 ml roztworu substratu odpowiada 3 mg soli dwusodowej kwasu fenylofosforowego i że odpowiada to 4,4 μmolom substratu. Do doświadczeń brano więc wystarczającą jego ilość, gdyż w wykonanych oznaczeniach nie rozkładało się substratu więcej niż 5 do 10%.
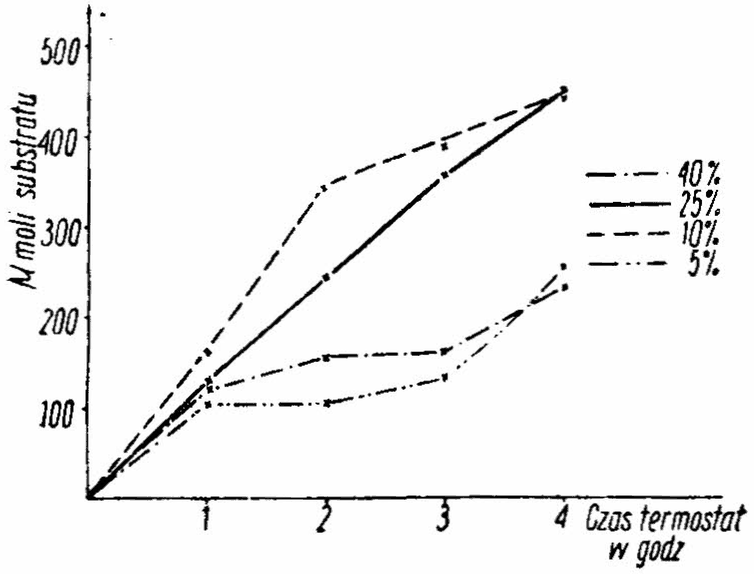
Przebieg zmian w aktywności fosfatazy kwaśnej roztworów miodów 5- i 40-procentowych wykazywał duże podobieństwo, co wyraźnie obrazują zbliżone kształty krzywych aktywności obu próbek (ryc. 3), jakkolwiek stężenie miodu różniło się ośmiokrotnie.
W pierwszej godzinie analizowane roztwory wydzieliły z substratu podobne ilości fenolu, następnie do trzeciej godziny trwania doświadczenia ilość oznaczonego fenolu wzrosła tylko o 28%, aby znów wzrosnąć
strona 17znacznie po czwartej godzinie. W 5-procentowym roztworze miodu po godzinie aktywność fosfatazy wynosiła 101 μmoli, a po trzech 129 μmoli. Aktywność enzymatyczna roztworu 40-procentowego po pierwszej godzinie wynosiła 121 μmoli i zwiększała się nadal przez następne dwie godziny trwania doświadczenia. Aktywność w roztworach 5- i 40-procentowych miodu po dwugodzinnym termostatowaniu (z uwzględnieniem 15 minutowego wstępnego ogrzewania) była o przeszło połowę niższa od aktywności w 10-procentowym roztworze.
Zupełnie inaczej przebiegała zmiana aktywności fosfatazy w roztworze 10 i 25-procentowym tej samej próbki miodu. Przez cały czas doświadczenia ilość uwalnianego fenolu w 10-procentowym roztworze miodu wykazywała tendencję wyraźnie wzrostową. Rycina 2 wskazuje, że w czasie pierwszych dwóch godzin doświadczenia krzywa wznosi się pod kątem około 50°, aby w przedziale czasu od 2 do 4 godzin ulec niewielkiemu odchyleniu w stosunku do osi odciętych. Po dwóch godzinach doświadczenia aktywność fosfatazy kwaśnej 10-procentowego roztworu miodu wynosiła 237 μmoli, a po dwóch następnych godzinach wzrosła już tylko o ca 29%, to jest do 433 μmoli. Większość fenolu wydzieliła się zatem w ciągu dwóch pierwszych godzin po czym, jak to poleca Schormüller, wstrzymywano dalszą hydrolizę enzymatyczną fosfatazy kwaśnej z substratem, dodając 2 ml 20-procentowego roztworu kwasu trójchlorooctowego i oznaczano kolorymetrycznie ilość uwalnianego fenolu. Jeżeli nie przerywa się reakcji enzymatycznej, to fenol dalej wydziela się z substratu, nawet po 48 godzinach trwania doświadczenia.
Zmiana aktywności fosfatazy kwaśnej w 25-procentowym roztworze miodu wyglądała podobnie jak w 10-procentowym. Aktywność 25-procentowego roztworu była jednak nieco mniejsza niż roztworu 10-procentowego. Mimo to po czwartej godzinie doświadczenia ilość wydzielonego fenolu była taka sama jak w roztworze 10-procentowym. Na podstawie tych doświadczeń stężenie 10-procentowego miodu przyjęto jako najkorzystniejsze dla oznaczeń aktywności fosfatazy kwaśnej miodu wobec substratu soli dwusodowej kwasu fenylofosforowego.
WYNIKI OZNACZEŃ AKTYWNOŚCI FOSFATAZY KWAŚNEJ W MIODACH
Oznaczano aktywność fosfatazy kwaśnej w 69 próbkach miodów pochodzących z różnych rejonów w kraju.
Średnia arytmetyczna aktywności fosfatazy kwaśnej przebadanych miodów wynosiła 197,2 μmola. Obliczony dla niej przedział ufności mieścił się w granicach dla t0,05 = 63 μmoli, a dla t0,01 = 83 μmoli.
strona 18Wyniki oznaczeń przedstawiono w tabeli 5. Średnie dla przebadanych próbek miodów wykazywały dużą zmienność (od 29,8 do 2140 μmoli). Ze wzrostem średnich wzrastały także różnice między średnimi poszczególnych naważek. W związku z tym wyniki podzielono na dwie grupy. Do grupy pierwszej zaliczono miody o aktywności fosfatazy do 127
Tabela 5 Zestawienie miodów według klas aktywności fosfatazy kwaśnej
| Klasa | Aktywność wg otrzymanych wyników w molach hydrolizowanego substratu | Ilość próbek |
|---|---|---|
| 1 | od 21,2 do 64,0 | 15 |
| 2 | od 64,0 do 106,0 | 24 |
| 3 | od 106,0 do 170,0 | 7 |
| 4 | od 170,0 do 319,0 | 14 |
| 5 | powyżej 319,0 | 9 |
X̄ = 197,2 μmola t0,05 = ± 63,0 μmola t0,01 = ± 83,0 μmoli
μmoli, do grupy drugiej wszystkie pozostałe miody. W ten sposób uzyskano lepszą ocenę błędu standardowego różnicy, a tym samym możliwość dokładniejszego rozpatrzenia istotności różnic między średnimi badanych próbek miodów.
Dla grupy miodów o mniejszej aktywności fosfatazy kwaśnej, wartości różnicy granicznej wynosiły: m0,05 = 4,4; m0,01 = 5,9 i m0,001 = 7,2 μmola. Dla pozostałych miodów wartości te wynosiły: m0,05 = 16,4; m0,01 = 22,1 i m00,1 = 25,7 μmola.
Umownie podzielono wszystkie miody na 5 klas o bardzo małej, małej, średniej, dużej i bardzo dużej aktywności fosfatazy kwaśnej. W ramach każdej klasy miody różnią się w sposób istotny między sobą pod względem aktywności fosfatazy kwaśnej. Każdy badany miód wykazywał aktywność fosfatazy kwaśnej. W przebadanych próbkach miodów nie stwierdzono nigdy aktywności fosfatazy alkalicznej. Ogólnie można powiedzieć, że miody jasne lub z odcieniem jasnosłomkowym charakteryzowały się niską aktywnością fosfatazy, natomiast w miarę pogłębiania się barwy miodów aktywność ich fosfotaz była wyższa
Do miodów o zabarwieniu jasnym lub jasnosłomkowym zaliczyć należy miody rzepakowe, których aktywność wynosiła 32,8, 41,4, 43,4, 74, 75, 82 μmoli w przeliczeniu na 100 g suchej masy miodu (dośw. 302, 111, 292, 149, 230, 109). Miody o zabarwieniu jasnosłomkowym, to
strona 19przeważnie miody akacjowe o aktywności również niskiej, wynoszącej: 29,8 39,4, 54, 101, 104 μmoli (dośw. 113, 266, 265, 233, 68). Aktywność jasnych miodów wielokwiatowych była również niska i wynosiła odpowiednio: 43,4, 65, 66,66 μmola, (dośw. 292, 307, 308, 162).
Miody o zabarwieniu ciemnobursztynowym lub ciemnożółtym odznaczały się wyższą aktywnością niż miody jasne, wynoszącą odpowiednio: 112, 118, 136, 149, 159, 176 μmoli (dośw. 268, 161, 209, 118, 293, 384).
Miody o barwie bursztynowej, ciemnożółtej lub zielono-szarej, to przeważnie miody wielokwiatowe, lipowe lub spadziowe. Miody tej grupy wyróżniały się aktywnością wynoszącą: 181, 182, 203, 210, 216, 227 μmoli (dośw. 185, 195, 63, 237, 234, 231).
Miody o zabarwieniu ciemnobrunatnym, to przeważnie miody gryczane, wrzosowe, charakteryzujące się bardzo wysoką aktywnością, wynoszącą: 219, 271, 320, 750, 1424, 2140 μmoli (dośw. 323, 117, 104, 227, 327, 190).
Trafiały się jednak wyjątki, jeden miód wrzosowy wykazywał aktywność fosfatazy tylko 46 μmoli chociaż inne charakteryzowały się cztero, a nawet i dziesięciokrotnie wyższą aktywnością. W grupie miodów o niskiej aktywności, jak miody rzepakowe, czy akacjowe, stwierdzono również próbki o aktywności fosfataz rzędu 133 czy 189 μmoli.
Przebadane próbki miodów można również posegregować według terminów zbioru. W tym przypadku miody z pożytków wczesnowiosennych charakteryzowały się najniższą aktywnością fosfatazy kwaśnej. Do tej grupy zaliczyć należy w pierwszym rzędzie miody rzepakowe i częściowo akacjowe. Znacznie wyższą aktywność wykazywały miody z pożytków wczesno-letnich, np. większość miodów akacjowych, lipowych, wielokwiatowych. Najwyższą aktywnością fosfatazy kwaśnej charakteryzowały się miody pochodzące z pożytków letnich i wczesno-jesiennych, np. miody gryczane czy wrzosowe *).
Oprócz omawianych powyżej miodów w handlu uspołecznionym znajdują się również miody standaryzowane, dostarczane przez Okręgowe Spółdzielnie Pszczelarskie. Miody te, sprzedawane przeważnie w naczyniach po 100, 250 i 500 g są podgrzewane przez około 24 godzin w temperaturze 50—60° w kotłach o pojemności 1—2 tony, ujednolicane masywnym mieszadłem i następnie rozlewane do naczyń. Stwierdzono, że aktywność fosfatazy kwaśnej tych miodów była o wiele niższa niż miodów innych i wynosiła średnio 64,2 μmola w przeliczeniu na 100 g suchej masy miodu, w granicach dla t = 0,05 ± 30 μmoli,
*) Odmiany miodów określano według terminów zbioru oraz cech organoleptycznych.
strona 20Tabela 6 Aktywność fosfatazy kwaśnej miodów standaryzowanych
| Nr doświadczenia | Odmiana miodu | Liczba prób | Ilość hydrolizowanego substratu w μmolach |
|---|---|---|---|
| 310 | Miód wielokwiatowy próbka nr 191 | 2 | 47,8 |
| 311 | „ „ „ nr 198 | 2 | 47,8 |
| 313 | „ „ „ nr 213 | 2 | 50 |
| 314 | „ „ „ nr 217 | 2 | 50 |
| 309 | „ „ „ nr 195 | 2 | 75 |
| 312 | „ „ „ nr 207 | 2 | 114 |
X̄ = 64,2 μmola t0,05 = ± 30,0 μmoli t0,01 = ± 43,8 μmoli
a dla t = 0,01 ± 43,8 μmola. Najwyższa aktywność przebadanych próbek nie przekroczyła 114 μmoli. Badania te wskazywały, że taki sposób standaryzacji, jak zresztą każde ogrzewanie, wpływa ujemnie na aktywność fosfatazy kwaśnej w miodzie.
OZNACZANIE OPORNOŚCI FOSFATAZY KWAŚNEJ NA OGRZEWANIE
W pracy niniejszej przeprowadzono 88 oznaczeń aktywności fosfatazy kwaśnej w miodach z uwzględnieniem różnych temperatur oraz czasu ogrzewania. Rozcieńczanie miodu wodą może zmienić oporność fosfatazy na ogrzewanie, dlatego przeprowadzono równoległe oznaczanie aktywności tego enzymu w miodach nierozcieńczonych oraz po rozcieńczeniu ich wodą w różnym stosunku.
W pierwszych doświadczeniach tego cyklu, tab. 7 przebadano aktywność fosfatazy w próbkach trzech miodów niepodgrzewanych, mianowicie w miodzie lipowym, akacjowym i spadziowym oraz po ich ogrzewaniu przez 60 minut w temperaturze 75°. Równocześnie w celu porównania wpływu rozcieńczenia na aktywność fosfatazy, zbadano aktywność tych miodów, rozcieńczonych wodą w stosunku 1 : 8. Obniżenie aktywności fosfatazy pod wpływem ogrzewania przebiegało nie jednakowo. Aktywność miodu lipowego obniżyła się najwięcej, bo o 78,3%, miodu akacjowego o 58,3%, natomiast miód spadziowy wykazywał najmniejszy spadek aktywności, bo 34-procentowy. Aktywność fosfatazy w roztworach wodnych rozcieńczonych w stosunku 1 : 8 i podgrzanych zanikała całkowicie. Powyższe badania skłoniły do przeprowadzenia no-
strona 21Tabela 7 Oporność fosfatazy kwaśnej miodów ogrzewanych w 75° przez 60 minut
| Odmiana miodu | Liczba prób | Liczba μmoli hydrolizowanego substratu — Miód niepodgrzewany | Liczba μmoli hydrolizowanego substratu — Miód podgrzewany bez rozcieńczenia w temp. 75° przez 60 min. | Liczba μmoli hydrolizowanego substratu — Straty w % | Liczba μmoli hydrolizowanego substratu — Miód rozcieńczony w stosunku 1 : 8 i ogrzewany w 75° przez 60 min. | Liczba μmoli hydrolizowanego substratu — Straty w % |
|---|---|---|---|---|---|---|
| lipowy | 2 | 202 | 43,8 | 78,3 | 0 | 100 |
| akacjowy | 2 | 104,0 | 43,4 | 58,3 | 0 | 100 |
| spadziowy | 2 | 87 | 58,0 | 34,0 | 0 | 100 |
wej serii doświadczeń, z uwzględnieniem różnych temperatur, rozcieńczeń oraz czasu trwania ogrzewania.
Mając na uwadze wszystkie te czynniki przebadano miód wielokwiatowy, o aktywności wyjściowej 66 μmoli, podgrzewając go w temperaturze 58, 68 i 75° w ciągu 15, 25, 30 lub 60 minut i biorąc do badań rozcieńczenia w stosunku 1 : 1 i 1 : 2. Stwierdzono, że w miarę przedłużania czasu ogrzewania oraz zwiększania rozcieńczenia miodu aktywność fosfatazy kwaśnej maleje. Spadek aktywności najwyraźniej zaznaczył się w przypadku ogrzewania miodów w temperaturze 74—75°. Ten sam miód bez rozcieńczeń, ogrzewany w temperaturze również 75° przez 10 minut wykazywał spadek aktywności o 47%.
W przypadku rozcieńczenia miodu wodą w stosunku 1 : 1, po 15 minutach ogrzewania aktywność fosfatazy obniżyła się o 56%, po 30 minutach o 78,4%, a po 60 minutach o 84,7%, natomiast przy rozcień-
Tabela 8 Oporność fosfatazy kwaśnej miodu na ogrzewanie w zależności od temperatury, czasu i rozcieńczenia
| Temperatura ogrzewania miodu | Ilość hydrolizowanego substratu w μmolach — Miód nierozcieńczony ogrzewany 10 minut | Ilość hydrolizowanego substratu w μmolach — Straty | Ilość hydrolizowanego substratu w μmolach — Miód rozcieńczony wodą w stosunku 1 : 1 ogrzewano minut: 15 | Ilość hydrolizowanego substratu w μmolach — Miód rozcieńczony wodą w stosunku 1 : 1 ogrzewano minut: Straty | Ilość hydrolizowanego substratu w μmolach — Miód rozcieńczony wodą w stosunku 1 : 1 ogrzewano minut: 25 | Ilość hydrolizowanego substratu w μmolach — Miód rozcieńczony wodą w stosunku 1 : 1 ogrzewano minut: Straty | Ilość hydrolizowanego substratu w μmolach — Miód rozcieńczony wodą w stosunku 1 : 1 ogrzewano minut: 30 | Ilość hydrolizowanego substratu w μmolach — Miód rozcieńczony wodą w stosunku 1 : 1 ogrzewano minut: Straty | Ilość hydrolizowanego substratu w μmolach — Miód rozcieńczony wodą w stosunku 1 : 1 ogrzewano minut: 60 | Ilość hydrolizowanego substratu w μmolach — Miód rozcieńczony wodą w stosunku 1 : 1 ogrzewano minut: Straty | Ilość hydrolizowanego substratu w μmolach — Miód rozcieńczony w stosunku 1 : 2 i podgrzewany 25 min. | Straty w % |
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| 58—59° | 60,0 | 8,8% | 58,0 | 12,1% | 52,4 | 30,9 | ||||||
| 68—69° | 44,6 | 32,5% | 32,8% | 50,4% | 31,8 | 51,8 | 24,0 | 63,8% | ||||
| 74—75° | 35,0 | 47% | 29,2 | 56% | 14,3 | 78,4% | 10,2 | 84,7% | 0 | 100% |
czeniu wodą w stosunku 1 : 2, po 25 minutach ogrzewanią w temperaturze 75° miód nie wykazywał już wcale aktywności fosfatazy. Okazało się również, że podwyższenie temperatury ogrzewania z 75° o dalsze 5° znacznie obniżało aktywność fosfatazy we wszystkich próbkach nierozcieńczonego i rozcieńczonego miodu.
Stwierdzono, że nie wszystkie miody charakteryzują się takim samym spadkiem aktywności. Doświadczenia z 4 próbkami różnych miodów odmianowych wykazały, że obniżenie aktywności fosfatazy kwaśnej po ich ogrzewaniu w temperaturze 68° przez 15 minut, wahało się w dość szerokich granicach. Jedna z próbek miodu wielokwiatowego nie wykazywała spadku aktywności nawet po 43 minutach ogrzewania natomiast inne miody wykazywały spadek aktywności od 9,6 do 23%. Przetrzymywanie tych próbek miodów w 68° przez dalsze 15 minut powodowało spadek aktywności od 19,2 do 33,3%, natomiast podgrzewanie wspomnianych próbek w temperaturze 75° przez 30 minut powodowało straty aktywności w granicach od 34,5 do 80% aktywności wyjściowej. Wyniki omawianych powyżej doświadczeń przedstawiono graficznie na ryc. 4. W czterech próbkach miodów ogrzewanych w temperaturze 75° przez 15,30 i 45 minut, obniżenie aktywności fosfatazy kwaśnej przebiega o wiele szybciej niż w próbkach ogrzewanych w ciągu tego samego czasu w temperaturze 68°. Przedstawione po prawej stronie cztery krzywe, przedstawiające spadek aktywności fosfatazy badanych odmian miodów, przebiegają mniej stromo w stosunku do osi odciętych niż wykresy umieszczone po lewej stronie ryciny, przedstawiające przebieg analogicznych doświadczeń w temperaturze 68°.
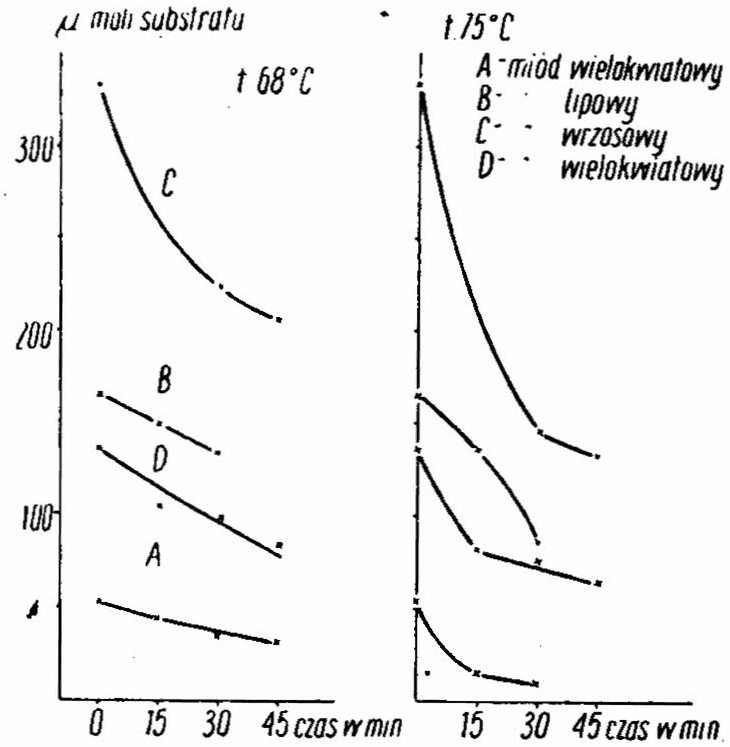
Doświadczenia te zostały potwierdzone w dalszych badaniach na miodach podgrzewanych z Kijaszkowa (dośw. 199 i 202), z okolic Skierniewic (dośw. 221 i 222) oraz Braniewa (dośw. 213 i 214).
Aby otrzymane wyniki były porównywalne miody podgrzewano do pożądanych temperatur z zachowaniem ściśle tych samych warunków. Miody o konsystencji gęstej cieczy przepuszczano przez rurkę szklaną
strona 23o średnicy 5—6 mm i długości 120 cm ustawioną pionowo i zamontowaną w płaszczu wodnym, podobnie jak w chłodnicy Liebiega. Płaszcz wodny chłodnicy ogrzewano wodą z termostatu i to umożliwiało doprowadzanie temperatury z dużą dokładnością do wymaganej w doświadczeniu wysokości. Sprawdzano ją na termometrze zamontowanym w dolnej części rurki. Szybkość przepływu ogrzewanego miodu regulowano za pomocą kranu znajdującego się w dolnej części opisanego przyrządu (zestawu).
Ujemny wpływ podwyższonych temperatur rzędu 75 czy 85° na aktywność fosfatazy kwaśnej potwierdziły dalsze badania przeprowadzone na wielu próbkach miodów z uwzględnieniem różnych czasów ogrzewania (dośw. 176—179 i 186, 187). Stwierdzono, że ogrzewanie miodu w temperaturze 75° przez 40 minut powodowało spadek aktywności o 65%, natomiast ten sam miód ogrzewany w temperaturze 85°, również przez 40 minut, wykazywał prawie całkowity zanik aktywności, strata 92,1%. Ogrzewanie więc próbek miodów powyżej 75° jest bardzo niewskazane, ponieważ temperatura ta inaktywuje w krótkim czasie działanie fosfatazy kwaśnej, jak zresztą i wielu innych enzymów, co powinno być uwzględniane podczas podgrzewania miodów w celu ich standaryzacji.
WPŁYW MAGAZYNOWANIA MIODÓW NA ZMIANY W AKTYWNOŚCI FOSFATAZY KWAŚNEJ
Zgodnie z istniejącym obecnie poglądm, referowanym na VIII Międzynarodowym Konwencie w sprawie Substancji Życiowych, Żywienia i Chorób Cywilizacyjnych (Krauze, 1963), zwraca się uwagę, aby własności biochemiczne, szczególnie enzymatyczne produktów spożywczych zachować bez strat w czasie ich magazynowania. Miodowi na tym konwencie poświęcono też dużo uwagi. Straty w aktywności enzymatycznej miodów uważa się w dietetyce za niekorzystne, Duisberg i Warneck (1959), Gontarski (1960) oraz White (1961).
W piśmiennictwie nie natrafiono na prace dotyczące problemu trwałości fosfatazy kwaśnej. Przeprowadzono stosowne doświadczenie na próbkach miodów pięciu odmian, magazynując je w szczelnie zamkniętych słoikach w temperaturze pokojowej, bez dostępu światła.
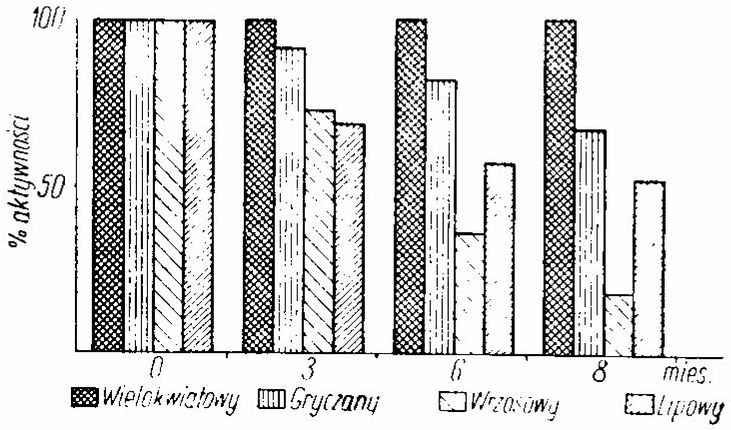
W próbkach miodów określano aktywność fosfatazy kwaśnej na początku doświadczenia a następnie po 3—6- i 8-miesięcznym magazynowaniu. Wyniki oznaczeń przedstawiono graficznie na ryc. 5. Aktywność fosfatazy kwaśnej badanych próbek obniżała się w dość szerokich granicach, bo od 48 do 82% i była zależna w dużym stopniu od ilości suchej masy. Z przebadanych próbek jeden miód, mianowicie wielokwiatowy nie wykazywał wcale spadku aktywności, nawet po 8-miesięcznym magazynowaniu. Największym spadkiem aktywności, bo wynoszącym 82%, wyróżniał się miód wrzosowy. Inne miody, np. lipowy, wykazywał po 8-miesięcznym magazynowaniu spadek aktywności o 48%, a gryczany o 33%. Wyniki oznaczeń miodu rzepakowego nie były brane pod uwagę, gdyż po trzymiesięcznym magazynowaniu miód zaczął fermentować, co powodowało znaczny wzrost a nie spadek aktywności fosfatazy kwaśnej. Miody rzepakowe stosunkowo łatwo fermentują, a w omawianym przypadku próba wykazywała po 3-miesięcznym magazynowaniu wzrost aktywności o 36%, a po 6 miesiącach — 63%.
ZAGADNIENIE REAKTYWACJI FOSFATAZY KWAŚNEJ W MIODACH PODGRZEWANYCH, NASTĘPNIE MAGAZYNOWANYCH
Wiadomo, że źródłem pochodzenia fosfatazy kwaśnej są również drobnoustroje i dlatego w okresie ich rozwoju w produktach stwierdza się tam ciągły wzrost aktywności fosfatazy, np. w mleku i jego produktach oraz różnego rodzaju mięsie. Stosowanie przemysłowej pasteryzacji i sterylizacji jest niepożądane, gdyż długotrwałe działanie temperatur na produkty spożywcze powoduje ich dezagregację. Zauważono, że w mleku pasteryzowanym albo w mięsie poddanym termicznej obróbce, obserwuje się powolny wzrost aktywności fosfatazy wywołany rozwojem drobnoustrojów.
W badaniach własnych stwierdzono, że w 50-procentowych wodnych
Tabela 9 Aktywność fosfatozy kwaśnej miodów ogrzewanych następnie magazynowanych w temp. 28°
| Nr doświadczenia | Liczba prób | Magazynowano dni | Ilość substratu w μmolach |
|---|---|---|---|
| 101 | 3 | Zaraz po ogrzaniu | 0 |
| 114 | 3 | 9 | 0 |
| 121 | 2 | 20 | 5,2 |
| 130 | 3 | 35 | 10,2 |
roztworach miodów aktywność fosfatazy ulegała całkowitemu zahamowaniu przez podgrzewanie przez 30 minut w łaźni wodnej w temperaturze 80°. Tak przygotowane roztwory miodów były następnie inkubowane w temperaturze 28°. Do oznaczeń aktywności fosfatazy kwaśnej próbki pobierano co 5—10 dni, aż do 35 dnia trwania doświadczenia. Wyniki oznaczeń przedstawiono w tabeli 9. W inkubowanych próbkach do dziesiątego dnia nie stwierdzono jakiejkolwiek aktywności fosfatazy. Dopiero po 20 dniach aktywność wynosiła 5,2 μmola a po 35 dniach 10,2 μmola, w przeliczeniu na 100 g suchej masy miodu. Nastąpiło to wskutek rozwoju grzybów.
Taki sam wzrost aktywności fosfatazy kwaśnej stwierdzono również w miodach niepodgrzewanych, w których po jakimś czasie zaczyna się fermentacją drożdżowa, np. w miodach rzepakowych.
WPŁYW NIEKTÓRYCH ZWIĄZKÓW NA ZMIANĘ AKTYWNOŚCI FOSFATAZY KWAŚNEJ MIODÓW
Wykonując pomiary aktywności fosfatazy kwaśnej w miodach należało liczyć się z czynnikami obniżającymi lub stymulującymi aktywność tego enzymu. Było zatem celowe zbadanie, czy niektóre naturalne związki, np. flawony, karoteny, występują w miodach w ilościach śladowych, nie powodują zmian w aktywności fosfatazy kwaśnej.
Ustalając dla pomiarów swojej pracy weronalowy roztwór buforowy o pH 5,6 postanowiono sprawdzić, czy stosowane zahamowanie czynności enzymatycznej za pomocą kwasu trójchlorooctowego jest odpowiednio obiektywne. W tym celu wykonano kilka pomiarów hydrolizy substratu przez enzym po dodaniu 2 ml kwasu trójchlorooctowego do 15 ml badanego roztworu miodu. Po dodaniu kwasu trójchlorooctowego pH obniżyło się do 0,6 jednostek. Przeprowadzając porównawczo oznaczenia aktywności fosfatazy kwaśnej dla miodu z dodatkiem tego kwasu i bez niego, uzyskano wyniki podane w załączonej tabeli 10.
Stwierdzono, że sole magnezu dodawane w ilości 0,5 ml 1-procentowego roztworu MgSO4 na jedno powtórzenie, powodowały wzrost aktywności z 132 μ mola do 222 μ mola (dośw. 63, 64 i 125). Dodatek soli magnezu do badanych próbek miodu wydaje się więc uzasadniony, gdyż powodował wzrost aktywności fosfatazy kwaśnej w przeszło 53%. W ten sposób reagują fosfatazy miodu, które są w przeważającej ilości fosfatazami roślinnymi (z wyjątkiem niewielkich ilości fosfatazy kwaśnej, wydzielanej przez same pszczoły).
Badania nad zachowaniem się fosfatazy kwaśnej w miodach wykonano stosując następujące odczynniki:
strona 26Tabela 10 Wpływ pH na aktywność fosfatazy kwaśnej miodów
| Liczba prób | Odmiana miodu | pH oznaczenia | Ilość hydrolizowanego substratu w μmolach |
|---|---|---|---|
| 2 | lipowy | 5,6 | 202 |
| 2 | lipowy | 0,6 | 0 |
| 3 | spadziowy z woj. krakowskiego | 5,6 | 87,4 |
| 3 | spadziowy z woj. krakowskiego | 0,6 | 0 |
| 2 | akacjowy rumuński | 5,6 | 189 |
| 2 | akacjowy rumuński | 0,6 | 0 |
etanol podwójnie destylowany w temperaturze 78°,
aceton podwójnie destylowany w temperaturze 56°,
odczynnik Carreza oraz roztwory: rutyny, kwercetyny, jodu świeżo resublimowanego w jodku patosawym, arsenianu dwusodowego, fluorku sodowego, siarczanu magnezowego i winianu sodowego.
Klarowanie miodu za pomocą odczynnika Carreza, używanego do odbiałczania roztworu miodu przy kuprometrycznym lub polarymetrycznym oznaczaniu cukrów, powodowało całkowity zanik aktywności fosfatazy kwaśnej. Potwierdzono to wielokrotnie, wykonując oznaczenie aktywności fosfatazy kwaśnej miodów rzepakowych, gryczanych i spadziowych (dośw. 241—248). Interesujące, że odczynnik Carreza, hamował działanie biochemiczne różnych enzymów w stopniu jednakowym. Całkowita np. inaktywacja inwertazy miodowej zachodziła dopiero w środowisku alkalicznym (Feodorowska 1962). Podobnie jak odczynnik Carreza na wspomniane trzy odmiany miodów działały jak inhibitory: aceton i etanol (dośw. 253—260).
Zakładając, że flawony poprzez grupy fenolowe mogą wywierać wpływ na aktywność fosfataz, sprawdzono działanie kwercetyny i rutyny na aktywność fosfatazy kwaśnej miodów. Stwierdzono, że wspmoniane związki wpływały w różnym stopniu na aktywność tego enzymu. Kwercetyna wyraźnie wstrzymywała działanie fosfatazy kwaśnej (doświadczenie 402 i 404) i to już w ilościach śladowych, natomiast rutyna, stosowana w takim samym stężeniu co kwercetyna (około 30 μg w 1 ml badanego roztworu) nie stymulowała ani nie hamowała działania fosfatazy kwaśnej. Aktywność miodu zarówno bez dodatku rutyny jak i z dodatkiem tego flawonu była zawsze taka sama i wynosiła około 246 μmoli (dośw. 385, 405 i 406).
Hamujące działanie niektórych inhibitorów na fosfatazę kwaśną
strona 27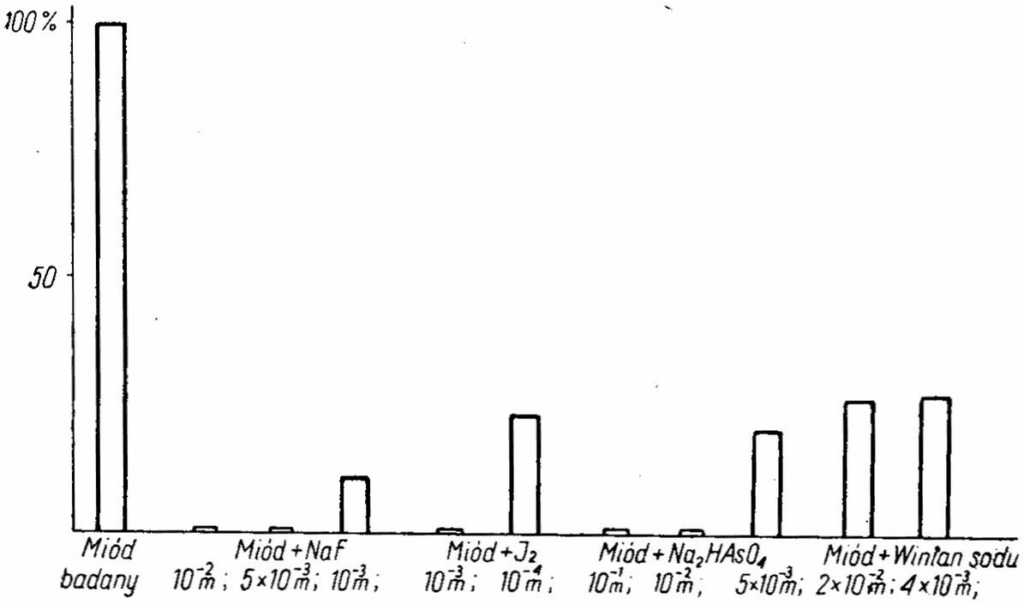
miodu wielokwiatowego z okolic Skierniewic przedstawiono na załączonej ryc. 6. Najsilniejszym inhibitorem fosfatazy kwaśnej miodu okazał się fluorek sodowy a także roztwór jodu. Jeżeli przyjmie się, że aktywność badanej próbki miodu wynosiła 246 μmoli (100% aktywności), to miód z dodatkiem roztworu fluorku sodu o stężeniu 0,01 i 0,005 M nie wykazywał wcale aktywności fosfatazy kwaśnej (100% strat), natomiast w przypadku stężenia 0,001 M aktywność wynosiła 28,4 μmola, co odpowiadało 11,5% aktywności wyjściowej badanego miodu. Również dodatek roztworu jodu w stężeniu 0,0001 M powodował hydrolizę tylko 56,8 μmola substratu, co odpowiadało 23% aktywności badanego miodu. Inne sole, jak arsenian dwusodowy i winian sodowy hamował znacznie słabiej działanie fosfatazy.
Charakterystyczne jest, że dodatek winianu sodowego w stężeniu 0,02 i 0,004 M w stężeniu pięciokrotnie mniejszym, powodował prawie taką samą aktywność, wynoszącą około 65 μmoli, co odpowiadało w przybliżeniu 26,5% aktywności wyjściowej fosfatazy kwaśnej badanego miodu. Dopiero wyższe stężenie tej soli wywołało całkowite jej zahamowanie.
Porównując wyniki własne z wynikami Kiermeiera i Meinla (1961) wnioskować należy, że fosfataza kwaśna miodu nie jest identyczna z fosfatazą kwaśną mleka. Przekonano się np., że arsenian sodu w stężeniu 0,005 M obniżał bardzo znacznie aktywność fosfatazy kwaśnej miodu z 246 μmoli na 49 μmoli (co odpowiada około 20% aktwności wyjściowej), natomiast w doświadczeniu Kiermeiera i Meinla
strona 28arsenian działał na fosfatazę w mleku raczej stymulująco a nie inaktywująco. Również fluorek sodu, używany przeze mnie do oznaczeń aktywności fosfatazy kwaśnej miodu o stężeniu 0,01 i 0,005 M, powodował całkowity spadek aktywności fosfatazy, natomiast przy oznaczaniu aktywności fosfatazy kwaśnej mleka wg Kiermeiera i Meinla w stężeniu 0,01 M wykazywał jeszcze 8% aktywności wyjściowej a w stężeniu 0,001 M —14%.
PRZEMIANY JONU FOSFORANOWEGO WYDZIELONEGO Z SUBSTRATU W WYNIKU HYDROLIZY ENZYMATYCZNEJ
W wyniku przemian substratu (soli dwusodowej kwasu fenylofosforowego) wydziela się fenol wolny, którego ilość jest miernikiem aktywności fosfatazy. Jednocześnie pojawia się w roztworze miodu jon ortofosforanowy w ilościach równoważnych w stosunku do fenolu. Wydawało się niezbędne stwierdzenie zmian ilościowych tego jonu po hydralizie wobec fosfatazy.
Tabela 11 Wpływ czasu inkubacji na ilość oznaczonego i teoretycznie wyliczonego kwasu ortofosforowego
| Czas inkubacji | Oznaczona ilość wydzielonego fenolu w μg | Oznaczona ilość kw. ortofosforowego w μg | Wyliczona ilość kw. ortofosforowego w μg |
|---|---|---|---|
| 12 | 1093 | 450 | 1242 |
| 24 | 2928 | 675 | 3048 |
| 48 | 3742 | 739 | 3895 |
Wynik tych oznaczeń przedstawiono na załączonej tabeli. Jak wynika z przeprowadzonych doświadczeń, oznaczona ilość kwasu fosforowego była niższa od stechiometrycznie obliczonej, gdyż po 48 godz. inkubowania stężenie jego było 5 razy niższe niż wypadało z wyliczenia. Dowodziłoby to, że w okresie inkubacji jon ortofosforanowy wchodzi w reakcje ze związkami towarzyszącymi, co może świadczyć o obecności w miodzie innego enzymu typu fosforylaz.
OSIĄGNIĘCIA WŁASNE I WNIOSKI
- Zaadaptowana przeze mnie metoda nadaje się do seryjnych oznaczeń aktywności fosfatazy kwaśnej w miodach, nektarach, pyłkach oraz w ciele pszczół. Metoda jest wystarczająco dokładna gdyż współczynnik
zmienności wynosi 2,23%, a więc mieści się w granicach od 15 do 2750 μmoli, a pyłków kwiatowych od 1264 do 145.430 μmoli (na 100 g s. m.).
- Do miodu otrzymanego z sacharozy pszczoły wydzielają nieznaczne ilości fosfatazy kwaśnej. Aktywność takiego miodu była około osiem razy mniejsza niż miodów o niskiej aktywności i około szesnastokrotnie mniejsza od wyliczonej średniej aktywności wszystkich przebadanych miodów naturalnych.
Przypuszcza się, że będzie to droga do rozróżnienia miodów naturalnych od pochodzących z sacharozy.
- Wszystkie przebadane miody wykazywały aktywność fosfatazy kwaśnej (nie stwierdzono aktywności fosfatazy alkalicznej). Wynosiła ona średnio 197,2 μmola (na 100 g s.m.) z przedziałem ufności dla t0,01 ± 83,2 μmola. Rozpiętość aktywności fosfatazy kwaśnej przebadanych próbek miodów była znaczna i wahała się od 29,8 do 2140 μmoli. Jednak większość przebadanych próbek, bo aż 23 znajdowała się w klasie od 64,0 do 106 μmola.
Stwierdzono, że miody jasne lub jasnosłomkowe (przeważnie z pożytków wczesnowiosennych) charakteryzowała niska aktywność fosfatazy wynosząca od 29,8 do 104 μmoli. Miody o zabarwieniu ciemnobursztynowym lub ciemnożółtym (przeważnie wielokwiatowe) wykazywały aktywność od 112 do 176 μmoli. Miody o zabarwieniu ciemnobursztynowym, ciemnożółtym lub zielono-szarym wykazywały aktywność rzędu 191—212 μmoli. Miody o zabarwieniu brunatnym lub ciemnobrunatnym (przeważnie gryczane i wrzosowe) charakteryzowały się bardzo wysoką aktywnością, mieszczącą się w granicach od 219 do 2140 μmoli.
- Miody standaryzowane wykazywały niską aktywność fosfatazy — średnio 64 μmoli, z przedziałem ufności dla t0,01 ± 43,8 μmola.
- Podgrzewanie miodów powodowało obniżenie aktywności fosfatazy kwaśnej. Miody ogrzewane do temp. 75° wykazywały o wiele większy spadek aktywności niż w temp. 58°. Jeszcze większym spadkiem aktywności charakteryzowały się miody ogrzewane w temperaturze 85°. Badania te potwierdziły przypuszczenia ujemnego wpływu ogrzewania miodów na aktywność fosfatazy, dlatego w przypadku standaryzacji miodów nie należy stosować temperatur wyższych niż 60°. Pożądane byłoby nawet całkowite zaniechanie ogrzewania miodów.
- Magazynowanie miodów inaktywuje fosfatazę kwaśną. Stwierdzono, że ośmiomiesięczne przechowywanie próbek miodów bez dostępu światła w temperaturze pokojowej powoduje spadek aktywności, wahającej się w granicach od 0 do 82% aktywności wyjściowej.
- Jony Mg++ zwiększają aktywność fosfatazy kwaśnej miodu o przeszło 50% aktywności początkowej. Stwierdzono, że istnieje wiele
różnych związków, które działają hamująco na aktywność tego enzymu. Najsilniejszymi inhibitorami okazały się: fluorek sodowy, jod oraz arsenian dwusodowy. Z odczynników używanych do odbiałczania miodów odczynnik Carreza inaktywował fosfatazę całkowicie a oceton lub etanol tylko częściowo. Z przebadanych flawonów kwercetyna całkowicie hamowała działanie fostatazy, natomiast rutyna nie stymulowała ani nie obniżała działania tego enzymu.
- Reaktywacja fosfatazy kwaśnej miodów ogrzewanych, pozbawionych całkowicie aktywności przebiegała bardzo powoli i dopiero po 35 dniach inkubowania w termostacie w 28° wynosiła około 1/6 aktywności początkowej miodu. Aktywność ta była prawdopodobnie wywołana działaniem rozwijającym się mikroorganizmów lub grzybów.
- Ilość wydzielonego fosforu nieorganicznego z substratu i fenolu pozwala przypuszczać, że w miodzie znajduje się jeszcze inny enzym typu fosforylaz, ponieważ w badanych próbkach zawartość oznaczonego fosforu nieorganicznego, wyliczona z ilości wydzielonego fenolu, była pięciokrotnie mniejsza od ilości teoretycznie obliczonej.
- W miodach występują zmienne ilości fosforu nieorganicznego, wahające się w granicach od 3470 do 8020 μg (na 100 g s.m. miodu) w zależności od odmiany. Nie stwierdzono jednak żadnej korelacji dodatniej lub ujemnej pomiędzy zawartością fosforu nieorganicznego a aktywnością fosfatazy kwaśnej.
LITERATURA
Acker L., Lück E. (1958) — Über den Einfluss der Feuchtigkeit auf den Ablauf enzymatischer Reaktionen in wasserarmen Lebensmitteln. I Mitteilung Z. Lebensmitt.-Untersuch. 108: 256—269.
Ahmed Z., King E. J. (1960) — Kinetics of placental alkaline phosphatase. Biochim. Biophys. Acta. 45: 581.
Baldwin E. (1959) — Biochemia dynamiczna. Warszawa PWRiL.: 106—108.
Bogojawlenskaja A. G. (1956) — Kisłaja i szczałocznaja fosfatazy syworotki krowi u zdorowych i balnych predrakom i rakom mołocznoj żelezy. Trudy Inst. Ekstl. Med. Akad. Nauk, Łatwian SSR 10: 97—103.
Budsławski J. (1959) — Mleko spożywcze. Warszawa WPL: 44.
Bömer A. Juckenack A. Tillmans J. (1935) — Handbuch der Lebesmittel —Chemie II Allgemeine Untersuchungsmethoden zweiter Teil Chemische und Biologische Methoden. Berlin, J. Springer: 709.
Bömer A., Juckenack A., Tillmans J. (1938) — Handbuch der Lebensmittel — Chemie V. Getredemehle — Honig — Zucker — Früchte — Gemüse. Berlin, J. Springer.: 314—355.
Bornus L. (1962) — Le Recherche Apicole en Pologne. Ann. Abeille 5: (2) 155—168.
Colowick S., Kaplan N. O. (1955) — Methods in Enzymology. vol.
strona 31II New Jork Academic Press. Inc.: 569: 570.
Courtois J. E., Perles R. (1959) — Precis de Chimie Biologique. Paris VI^e, Masson.: 304—305.
Duisberg H., Warnecke B. (1959) — Erhitzungs — und Lichteinfluss auf Fermente und Inhibine des Honigs. Z. Lebensmitt. Untersuch., 111: 111—119.
Działaszyński L., Kuik K. (1963) — Aktywność kwaśnej fosfatazy, α-amylazy i katalazy w miodach z okolic Torunia. Pszczel. Zesz. Nauk. 7: 33—39.
Enzymy. (1963) — Praca zbiorowa. Warszawa, PWN: 18.
Fedorowska Z. (1962) O wpływie różnych środków oczyszczających na wyniki badania miodu. Acta Pol. Pharmac. 19: 79—90.
Von Fellenberg Th., Rusiecki W. (1938) — Phosphorsäurebestimmung in Honig. Mitt. Lebensmitt.-Untersuch. Hyg. 29: 311—313.
Giri K. V. (1938) — The chemical composition and enzyme content of Indian honey. Madras Agric. J. 26: 68—72.
Giri K. V., Prasad A. L. N., Govri Devi S., Sri Ram J. (1952) — A technique for the identification and separation of enzymes by paper chromatography. Biochem. J. 51: 123—128.
Glick D. (1957) — Methods of Biochemical Analysis. vol IV, New York, Inters. Publ. Inc.: 264—268.
Gontarski H. (1960) — Fermentbiologische Studien an Honigen. Z. Bienenforsch. 5: 30—39.
Hansson H. E. (1961) — Die Reaktivierung der alkalischen Phosphatase der Milch. Svenska Mejeritind. 53: 183—184; 186—187, 190—192.
Hansson E., Rasmusson Y. (1962) — Weitere Untersuchungen über die saure Phosphatase der Milch. Z. Lebensmitt.-Untersuch. 118: 141—147.
Jacquet J., Villette O. (1954) — Phosphatases of cow milk. Bull. acad. vet. France, 27: 429—433.
Joyce B. K., Grisolia S. (1960) — Purification and properties of a nonspecific acid phosphatase from wheat germ. J. Biol. Chem. 235: 2278—2281.
Kay H. D. (1930) — Plasma phosphatase. II The enzyme in Disease particularly in bone Disease. J. Biol. Chem. 89: 240—260.
Kiermeier Fr., Meinl E. (1961a) Zur Kenntnis der Milchphosphatasen. Zur Bestimmung der Phosphomonoesterasen in Rohmilch. Z. Lebensmitt.-Untersuch. 114: 110—127.
Kiermeier Fr., Meinl E. (1961b) — Zur Kenntnis der Milchphosphatasen. Verhalten der sauren Phosphatase neben der alkalischen in Kuhmilch. Z. Lebensmitt.-Untersuch. 114: 189—202.
Kiermeier Fr., Fahmy T. K., Kern R. (1961c) — Untersuchungen zur Kenntnis der Prosphataseaktivität in Käse. Z. Lebensmitt.-Untersuch. 114: 203—207.
Kiermeier Fr., Meinl E. (1961d) — Zur Kenntnis der Milchphospatasen. Einfluss der Temperatur auf die Aktivität der sauren Milchphosphatase. Z. Lebensmitt.-Untersuch. 114: 407—416.
Kiermeier Fr., Meinl (1961e) — Zur Kenntnis der Milchphosphatasen. Über Regenerationserscheinungen der alkalischen Phosphatasen in Kuhmilch. Z. Lebensmitt.-Untersuch. 114: 481—488.
Kiermeier Fr., Meinl E. (1961f) — Zur Kenntnis der Milchphosphatasen. Einfluss von Effectoren auf die Aktivität der sauren Phosphatase in Kuhmilch. Z. Lebensmitt.-Untersuch. 114: 488—491.
Krauze St. (1963) — VIII Międzynarodowy Konwent w sprawie substancji życiowych, żywienia i chorób
strona 32cywilizacyjnych. Roczniki PZH. 14, 129—132.
Lück H., Schillinger A. (1958) — Untersuchungen zur H2O2 Behandlung der Milch. I Mitteilung. Z. Lebensmittel-Unters. u.-Forsch. 107: 512—520.
Lüttge U. (1962) — Über die Zusammensetzung des Nektars und den Mechanismus seiren sekretion I. Planta 56, 189—212 (1961); 59, 108—114; 175—194.
Madsen N. B., Tuba J. (1952) — On the source of the alkaline phosphatase in rat serum. J. Biol. Chem. 195: 741—750.
Mayer F. C., Campbell R. E., Smith A. K., Mc Kiney L. L. (1961) — Soybean phosphatase. Purification and properties. Arch. Biochem. 94: 301—307.
Mc Farren E. F., Thomas R. C., Black L. A., Campbell J. E. (1961) — Differentation of reactivated from residual phosphatase in high temperature short time pasteurized milk and cream. J. Ass. off. Agric. Chem. 43: 414—426.
Monikowski K. (1961) — Zawartość związków żelaza w miodach. Pszczelarstwo 12: 163—164.
Nakamura M. (1959) — Einflüsse von Phosphatase und Phosphoglucomutase auf die Bestimmung der Phosphorylase Aktivität in ungereinigten Extrakten aus pflanzlichen Materialen. Bull. Agric. Chem. Soc. Japan 23: 383—388.
Posthumus G. (1956) — A positive phosphatase reaction in pasteurized cream and butter. Offic. Orgoan Koninki Ned. Znivelbond. 48: 660—661.
Schormüller J., Huth H. (1954) — Beiträge zur Biochemie der Käsereifung. Z. Lebensmittel — Unters. u. Forsch. 99: 280—299.
Schormüller J., Lehmann E. (1955) — Beiträge zur Biochemie der Käsereifung. Untersuchungen zur Methodik der Phosphatasenbestimmung in reifenden Sauermilchkäse Z. Lebensmittel — Unters. u.-Forsch. 100: 114—135.
Schormüller J., Hothorn S. (1956a) Ein Beitrag zur Phosphatasenbestimmung in Hühnerei. Dtsch. Lebensmitt.-Rundsch. 52: 57—66.
Schormüller J., Lehmann E. (1956b) — Beiträge zur Biochemie der Käsereifung. Die Phosphatasensysteme des Sauermilchkäses und ihre Entwicklung während der Reifung Z. Lebensmittel — Unters. u. Forsch. 103: 211—238.
Schormüller J., Hothorn S. (1959) — Die Phosphatasensysteme des Hühnereies und ihr Verhalten bei der Eilagerung. Dtsch. Lebensmitt.-Rundsch. 55: 29—37.
Schormüller J., Lehmann E., Langer H. (1960) — Über die Zusammensetzung der „Tränenflüssigkeit” von Emmentaler Käse. Phosphatasenaktiwität der Käse. Phosphatasenaktivität der Käsetränenflüssigkeit. Z. Lebensmitt.-Untersuch. 112: 364—375.
Schwendinger W. (1960) — Die Wirkung der Mehrfachpasteurisierung auf die alkalische Milchphosphatase. Milchwiss. Ber 10: 23—56.
Skarżyński B. (1956) — Chemia fizjologiczna. Warszawa. PWRiL: 410—415.
Sterkowicz St. (1964) — Interpretacja badań biochemicznych. Warszawa, PZWL: 165—166.
Szczygłowa M., Secomska B. (1955) — Przydatność oznaczania fosfatazy alkalicznej w surowicy krwi do masowych badań nad stanem odżywienia oraz do celów diagnostycznych. Roczniki PZH 6: 379—387.
White J. W. jr, Riethof M. L., Kushnir I. (1961) — Composition of honey VI, The effect of storage on carbohydrates, acidity and diastase content. J. Food Sci. 26: 63—71.
strona 33Więckowska E., Monikowski K. (1956) — Próba fosfatazowa dla mięsa i przetworów mięsnych. Roczniki PZH 7: 79—88.
Wiśniewski J. (1963) — Chemiczne badania kwaśnej fosfatazy skóry ludzkiej. Post. Bioch. 9: 281—282.
Витольд Залевски
ФОСФАТАЗЫ В МЕДАХ
Резюме
Основываясь на работах Шормюллера и его сотрудников разработано собственный метод определения активности кислой фосфатазы с применением в качестве субстрата вторичного фенилофосфата натрия. Этот метод оказался достаточно точным, так как вычисленный коэффициент изменчивости равнялся 2,23%. Проведено свыше 400 определений активности кислой фосфатазы в медах, нектарах, обножках, цветочной пыльце и теле пчел и установлено, что в медах она колебалась в границах от 29,8 до 2140 микромолей а нектара от 15 до 2750 микромоли. Найболее высокой активностью отличалась цветочная пыльца — от 1260 до 145,000 микромолей. В теле пчел констатировано только незначительную активность кислой и щелочной фосфатаз. Опыты с маленькими пчелосемями, поставленными в изоляторах из сетки и получавшими сахарный сыроп (сахарозу), доказывают что пчель: переработывая его на „мед” прибавляли к нему очень мало кислой и щелочной фосфатаз. Активность фосфатазы в полученном таким способом сахарном меде была 16 раз меньше средней активности проанализированных натуральных медов.
Исследования показали, что активность кислой фосфатазы образцов разных медов при подогревании их в течении 10-60 минут в температуре 60° обыкновенно оставалась без перемен, реже уменьшалась, однако страты не превышали 33% первоначальной активности. При подогревании этих самых образцов в температуре 75° убыток активности колебался от 34,5 до 80%, а в температуре 85° активность снижалась почти до нуля.
Было установлено что образцы медов, хранившихся в закрытых стекляных бонках без доступа света, по истечении 6-8 месяцев теряли от 48 до 82% первоначальной активности кислой фосфатазы. Исключение представлял только один образец цветочного меда, в котором после восьмимесячного хранения эта активность не изменилась
Было установлено что Mg++ увеличивали активность кислой фосфатазы более чем на 50%. Найболее сильными ингибитароми были фтористый натрий, раствор иода в JK и вторичный арсенат натрия. Среди исследованных флавонов кверцитин полностью преостанавливал действие фосфатазы, тогда как рутин не оказывал на этот энзим никакого влияния.
В исследованных образцах содержание фосфора вычисленное на основании количества фенола было несколько раз ниже общего количества фосфора выделенного из субстрата. Это позваляет предполагать, что в меде находится иной еще энзим типа фосфорилаз. Количество общего фосфора, найденного в медах, колебалось в границах от 3470 до 8020 мкг, но между содержанием общего фосфора и кислой фосфатазы не найдено никакой кореляции.
strona 34Witold Zalewski
PHOSPHATASES IN HONEYS
Summary
According to the procedure of Schormuller and collaborators outhor elaborated own method of quantitative measurment of acid phosphotase in honeys. As a substrate phenyl disodium arthophosphate was used. This method show to be sufficient because emmerated variation coefficient was 2.23%. More than 400 samples of honeys, nectars, pollens, pollen loads and living bees were used for measuring of acid phosphatase and it was stated that activity of acid phosphatase in honeys oscillate between 29.8 — 2140 mc/moles and in nectars from 15 to 2750 mc/moles. Pollens were characterized by the highest activity of acid phosphatase from 1260 to 145500 mc/moles. In the body of bees it was stated only very slight activity of acid and alcaline phosphatase. In the experiments performed under the cages with bees in nuclei it was observed that bees added to the honey, made with beat sugar, trace quantity of phosphatase. Activity of phosphatase in this honey was about 16 times lover than the average others samples of honey.
Futher experiments showed that different samples of heated honey for 10—60 minutes in temperature of 60°C did not change greatly activity of acid phosphatase. Lost of it did not exceed 33% of primery value. Heating of these samples in temperature of 75°C decreased activity of acid phosphatase from 34.5 to 80% and in temperature of 85°C activity dropped to zero. Samples of honeys stored in glass containers in dark room after 6—8 months lost 48—82% activity of acid phosphatase. Only one sample after 8 months of storage did not show decrease activity of acid phosphatase.
It was stated that ions Mg++ incresed activity of acid phosphatase over 50%. The strongest inhibitors were the folloving: sodium fluoride, iodine in potassium iodide and sodium arsenate hydrated. Among investigated flavones quercetin complitly restrained activity of acid phosphatase, but rutin did not simulate or dicreased activity of his enzyme.
In the investigated samples of honeys the content of phosphorus was enumerated from secreated phenol and was few times lower from quantity of general phosphorus secreated from subsrate. It is suppose that in honeys there is also different enzyme of phosphorilase type. In the investigated honeys quantity of general phosphorus osccillated from 3470 to 8020 μg, however we did not find any correlation between content of inorganic phosphorus and activity of acid phosphatase.
Errata — błędy druku znalezione podczas digitalizacji
- s. 1: „Caurtois” → Courtois
- s. 2: „Schwendiger” → Schwendinger
- s. 2: „fosfonoesterazę” → fosfomonoesterazę
- s. 3: „Hothorm” → Hothorn
- s. 3: „Ahmedá” → Ahmeda
- s. 3: „odmiennie własności” → odmienne własności
- s. 3, 4, 15 (3×): „fosfotazy” → fosfatazy
- s. 18: „fosfotaz” → fosfataz
- s. 4: „W występowaniu fosfataz” → O występowaniu fosfataz
- s. 4: „fosfór” → fosfor
- s. 4: „Bodanskýego” → Bodansky’ego
- s. 5: „połowiaczy” → poławiaczy
- s. 6: „burofowy” → buforowy
- s. 8, wzór: „C6H5N2O4 P” → C6H5Na2O4P
- s. 8: „94,11 μg fenylu” → 94,11 μg fenolu
- s. 9: „hydrclizy” → hydrolizy
- s. 10: „przebadnia” → przebadania
- s. 12, tab. 2: „Asclepias syriac” → Asclepias syriaca
- s. 12: „doświadczeniacu” → doświadczeniu
- s. 13, tab. 3: „19,000″ → 19.000
- s. 15: „oznaczał się” → odznaczał się
- s. 17: „Rycina 2 wskazuje” → Rycina 3 wskazuje
- s. 18, tab. 5: „w molach” → w μmolach
- s. 18: „m00,1″ → m0,001
- s. 22: „ogrzewanią” → ogrzewania
- s. 23: „poglądm” → poglądem
- s. 23: „Warneck (1959)” → Warnecke (1959)
- s. 24, tab. 9: „fosfatozy” → fosfatazy
- s. 25: „fermentacją drożdżowa” → fermentacja drożdżowa
- s. 26: „patosawym” → potasowym
- s. 26: „Feodorowska” → Fedorowska
- s. 26: „wspmoniane” → wspomniane
- s. 27: „aktwności” → aktywności
- s. 28: „hydralizie” → hydrolizie
- s. 30: „oceton” → aceton
- s. 30: „fostatazy” → fosfatazy
- s. 30, piśmiennictwo: „Lebesmittel” → Lebensmittel
- s. 30, piśmiennictwo: „Getredemehle” → Getreidemehle
- s. 30, piśmiennictwo: „Le Recherche Apicole” → La Recherche Apicole
- s. 31, piśmiennictwo: „New Jork” → New York
- s. 31, piśmiennictwo: „Działaszyński” → Działoszyński
- s. 31, piśmiennictwo: „Prosphataseaktivität” → Phosphataseaktivität
- s. 31, piśmiennictwo: „Milchphospatasen” → Milchphosphatasen
- s. 32, piśmiennictwo: „seiren” → seiner
- s. 32, piśmiennictwo: „Differentation” → Differentiation
- s. 32, piśmiennictwo: „Materialen” → Materialien
- s. 32, piśmiennictwo: „Orgoan” → Orgaan
- s. 32, piśmiennictwo: „Znivelbond” → Zuivelbond
- s. 32, piśmiennictwo: „Phosphatasenaktiwität” → Phosphatasenaktivität
- s. 33, streszczenie (2×): „Найболее” → Наиболее
- s. 33, streszczenie: „пчелосемями” → пчелосемьями
- s. 33, streszczenie: „пчель” → пчелы
- s. 33, streszczenie: „переработывая” → перерабатывая
- s. 33, streszczenie: „стекляных” → стеклянных
- s. 33, streszczenie: „бонках” → банках
- s. 33, streszczenie: „ингибитароми” → ингибиторами
- s. 33, streszczenie: „кверцитин” → кверцетин
- s. 33, streszczenie: „преостанавливал” → приостанавливал
- s. 33, streszczenie: „позваляет” → позволяет
- s. 33, streszczenie: „кореляции” → корреляции
- s. 34, summary: „outhor” → author
- s. 34, summary: „measurment” → measurement
- s. 34, summary: „phosphotase” → phosphatase
- s. 34, summary: „arthophosphate” → orthophosphate
- s. 34, summary: „emmerated” → enumerated
- s. 34, summary: „alcaline” → alkaline
- s. 34, summary: „beat sugar” → beet sugar
- s. 34, summary: „lover” → lower
- s. 34, summary: „Futher” → Further
- s. 34, summary: „Lost of it” → Loss of it
- s. 34, summary: „primery” → primary
- s. 34, summary: „incresed” → increased
- s. 34, summary: „folloving” → following
- s. 34, summary: „complitly” → completely
- s. 34, summary: „did not simulate” → did not stimulate
- s. 34, summary: „dicreased” → decreased
- s. 34, summary: „of his enzyme” → of this enzyme
- s. 34, summary (2×): „secreated” → secreted
- s. 34, summary: „subsrate” → substrate
- s. 34, summary: „phosphorilase” → phosphorylase
- s. 34, summary: „osccillated” → oscillated