

BADANIA NAD MIĘDZYRASOWYMI MIESZAŃCAMI PSZCZOŁY MIODNEJ. III. OCENA MORFOLOGICZNA MIESZAŃCÓW MIĘDZYRASOWYCH PSZCZOŁY MIODNEJ
tekst: Michał Gromisz, Leon Bornus, Jerzy Bobrzecki, Czesław Bojarczuk, Józef Kalinowski, Anna Król, J. Nowakowski, Wanda Ostrowska, Jan Woźnica, J. Zaremba
Pszczelnicze Zeszyty Naukowe, Rok XVIII, 1974 — M. Gromisz, L. Bornus, J. Bobrzecki, Cz. Bojarczuk, J. Kalinowski, A. Król, J. Nowakowski, W. Ostrowska, J. Woźnica, J. Zaremba
strona 77PSZCZELNICZE ZESZYTY NAUKOWE ROK XVIII GRUDZIEŃ 1974
Kierownik Zespołu Badawczego — Prof. dr L. Bornus
III. OCENA MORFOLOGICZNA MIESZAŃCÓW MIĘDZYRASOWYCH PSZCZOŁY MIODNEJ
M. Gromisz, L. Bornus, J. Bobrzecki, Cz. Bojarczuk, J. Kalinowski, A. Król, J. Nowakowski, W. Ostrowska, J. Woźnica, J. Zaremba
WPROWADZENIE
W opisie populacji pszczół chętnie posługujemy się charakterystyką morfologiczną. Zaletą jej jest możliwość wyodrębnienia ras pszczół a nawet linii, bo zmienność wewnątrz jednorodnych populacji pszczół, na przykład tej samej linii, jest stosunkowo niewielka. Podnosi to bardzo znaczenie opracowań morfologicznych w informacji o strukturze genetycznej populacji. Dodatkowy argument na korzyść takich charakterystyk to ten, że cechy morfologiczne pszczół można w sposób stosunkowo obiektywny określić bardzo precyzyjnie.
W pracach Oddziału Pszczelnictwa IS można znaleźć wyczerpującą charakterstykę morfologiczną pszczoły krajowej i ras obcych (Bornus, Demianowicz, Gromisz 1966, Bornus i Gromisz 1969, Gromisz 1967a). Znamy też dokładnie pod tym względem pszczoły poszczególnych linii selekcjonowanych w kraju (Gromisz i Cieśla 1973). W Oddziale Pszczelnictwa IS dokonano również oceny przydatności poszczególnych cech morfologicznych w systematyce wewnątrz gatunku Apis mellifica (Gromisz 1967b). Zwrócono poza tym uwagę na gospodarcze znaczenie cech morfologicznych pszczół. W wyniku tych badań wytypowano do oceny morfologicznej krajowego materiału zarodowego trzy podstawowe cechy: sumę szerokości III i IV tergitu odwłokowego (wskaźnik wielkości ciała pszczoły), długość języczka i indeks kubitalny (Bornus, Gromisz i Weliczkow 1967). Ostatnio w miejsce sumy
strona 78szerokości III i IV tergitu wprowadzono szerokość IV tergitu (Gromisz 1971).
Z długością języczka pszczół robotnic jest wiązana ich zdolność do gromadzenia miodu z roślin o głęboko ukrytym nektarze, przede wszystkim z koniczyny czerwonej. Pszczoły ras południowych, o długich języczkach, chętniej od pszczół środkowoeuropejskich oblatują koniczynę czerwoną i zbierają nektar z tej rośliny (Goetze 1930, Gubin 1936, Wawryn 1969, Gromisz 1974).
Wprowadzane obecnie do naszego rolnictwa mieszańce pszczoły miejscowej z pszczołą ras południowych otrzymują materiał dziedziczny po rodzicach, różniących się cechami morfologicznymi i innymi. Fenotyp tych mieszańców jest więc wynikiem współdziałania założeń dziedzicznych pszczół ras, dobieranych do krzyżowania.
Celem tej pracy jest scharakteryzowanie pod względem morfologicznym mieszańców pszczół-robotnic F1 między pszczołą miejscową a pszczołami kaukaskimi i kraińskimi.
MATERIAŁ I METODA
W latach 1970—1972 przeprowadzono zespołowe doświadczenie pasieczne nad oceną wartości użytkowej mieszańców ze skrzyżowania pszczoły miejscowej (Apis mellifica mellifica) z pszczołami rasy szarej wysokogórskiej kaukaskiej (Apis mellifica caucasica) i rasy kraińskiej (Apis mellifica carnica). Pszczołę miejscową reprezentowały następujące linie: Mazurka, Pokrowka, Lechitka, Luboszanka, hodowli RRZD Końskowola i hodowli Akademii Rolniczej w Lublinie. Rasy obce pochodziły z importu, z ZSRR (kaukaska) i z Niemieckiej Republiki Demokratycznej (kraińska). Wychów matek z obcorasowych do krzyżowania przeprowadzono centralnie w Pszczelniczym Zakładzie Doświadczalnym Górna Niwa. Do unasieniania dostarczano je na trutowiska przeznaczone dla poszczególnych linii hodowlanych pszczoły krajowej. Zakład ten organizował także trutowiska, gdzie wystawiano matki linii krajowych do unasieniania przez trutnie rasy kaukaskiej i kraińskiej.
Do doświadczenia, zlokalizowanego w 9 miejscowościach na terenie kraju, wprowadzono następujące grupy mieszańców pokolenia F1: cau×m — matki rasy kaukaskiej unasienione przez trutnie linii krajowych, car×m — matki rasy kraińskiej unasienione przez trutnie linii krajowych, oraz m×cau i m×car — mieszańce z krzyżowania zwrotnego. Grupy kontrolne stanowiły pszczoły miejscowe (m×m), linii odpowiadających terytorialnie poszczególnym pasiekom Zespołu Badawczego.
Materiał do badań morfologicznych zgromadzono w sezonie pasiecznym 1971 roku. Z ogólne liczby 311 rojów doświadczalnych pobrano 101 próbek z każdej grupy porównawczej w poszczególnych pasiekach Zespołu
strona 79Badawczego (poza Trzcińcem i Cieszanowem). Poszczególne linie pszczół i ich mieszańce reprezentowane były przez następującą liczbę próbek:
Mazurka — 27 (Siejnik, Olsztyn — brak grupy m×car) Pokrowka — 14 (Szepietowo — w grupie car×m 2 próbki) Lechitka — 15 (Sielinko) hodowli Końskowoli — 30 (Końskowola, Zaklików) Luboszanka — 15 (Wrocław).
Pszczoły w próbce zabijano przez zanurzenie we wrzącej wodzie, następnie umieszczano je w 70% denaturacie i przechowywano do czasu oznaczania cech. W przygotowaniu preparatów i dokonywaniu pomiarów cech pod mikroskopem korzystano z metodyki przyjętej do tego rodzaju badań w Oddziale Pszczelnictwa IS (Bornus, Demianowicz, Gromisz 1966). Oznaczano następujące cechy: sumę szerokości III i IV tergitu odwłokowego (wskaźnik wielkości pszczoły), długość języczka, indeks kubitalny.
W każdej próbce oznaczano cechy 30 robotnic, następnie obliczano dla tych próbek średnie wartości (x̄) poszczególnych cech, standardowe odchylenie (S) i wskaźnik zmienności (V) według wzoru: V=100 S : x̄. Te same parametry obliczano także dla poszczególnych grup porównawczych, wykorzystując do tego celu średnie wartości cech dla rojów.
W celu oceny zbiorczej materiału badanego na podstawie wartości 3 oznaczanych cech, dokonano normalizacji tych cech według wzoru y=(x−x̄) : S, gdzie y wyraża wartość unormowaną cechy, x — średnią wartość dla roju, x̄ i S — średnią wartość i standardowe odchylenie dla grupy rojów. Wartość x̄ obliczano tu z wyników pomiarów pszczół ze wszystkich badanych rojów, niezależnie od ich przynależności rasowej, natomiast wartość S przyjęto z pracy Bornusa i Gromisza (1969), gdzie wyraża ona standardowe odchylenie dla populacji pszczoły miejscowej.
Wartości unormowane umożliwiają ocenę stopnia podobieństwa pomiędzy rojami na podstawie zespołu cech. Zastosowano tutaj wzór:
odległość A−B = Σ|yA − yB|
Znaczy to, że odległość (stopień podobieństwa) roju A do roju B równa się sumie bezwzględnych wartości różnic między cechami unormowanymi roju A i roju B dla sumy szerokości III i IV tergitu, długości języczka i indeksu kubitalnego. Im większą otrzymujemy liczbę, tym odległość między rojami wzrasta, to znaczy maleje ich wzajemne podobieństwo. Na podstawie w ten sposób obliczonych odległości pomiędzy rojami narysowano dendryt, gdzie połączone są roje najbardziej do siebie podobne pod względem morfologicznym.
W interpretowaniu wyników korzystaliśmy także z materiałów zebranych w ramach innego tematu doświadczalnego Oddziału Pszczelnictwa
strona 80IS, jeszcze nie opracowanego. Zaczerpnęliśmy stamtąd wyniki oceny morfologicznej pszczół mieszańców F1 typu cau×m i m×cau oraz pszczół kaukaskich (cau×cau) od matek unasienionych sztucznie.
WYNIKI
Charakterystykę morfologiczną pszczół w doświadczeniu Zespołu Badawczego dokonano na podstawie pomiarów szerokości III i IV tergitu odwłokowego, długości języczka i indeksu kubitalnego, a więc tych cech, które są uwzględnione w ocenie krajowego materiału zarodowego. Rasy pszczół wprowadzone do krzyżowania różniły się przede wszystkim długością języczka, zwłaszcza pszczoły miejscowe (m×m) i kaukaskie (cau×cau). Pszczoły kraińskie zajmowały pod tym względem pośrednie miejsce. W sumie szerokości tergitów III i IV (wielkości pszczoły) oraz wartości indeksu kubitalnego różnice pomiędzy tymi trzema rasami były niezbyt duże. Pszczoły miejscowe i kraińskie wielkością ciała prawie się nie różniły, kaukaskie były natomiast nieco mniejsze. Największą wartością indeksu kubitalnego charakteryzowały się pszczoły miejscowe, ustępowały im pod tym względem pszczoły kaukaskie i następnie kraińskie. Pomiędzy liniami pszczoły miejscowej (Mazurka, Pokrowka, Lechitka, Luboszanka i hodowli Końskowoli), wprowadzonymi do krzyżowania z pszczołami ras obcych, nie było znaczniejszych różnic w określonych cechach morfologicznych. Średnie wartości sumy szerokości III i IV tergitu (t) w mm, długości języczka (j) w mm i indeksu kubitalnego (i) dla pszczół tych ras i linii spodziewamy się znaleźć w następujących przedziałach (poziom istotności 0,05).
| n | t | j | i | |
|---|---|---|---|---|
| cau×cau | 22 | 4,66 < × < 4,71 | 7,02 < × < 7,08 | 52,6 < × < 54,7 |
| car×car | 4 | 4,70 < × < 4,95 | 6,40 < × < 6,56 | 33,2 < × < 51,2 |
| Mazurka | 20 | 4,81 < × < 4,87 | 6,10 < × < 6,18 | 60,9 < × < 67,3 |
| Pokrowka | 9 | 4,76 < × < 4,88 | 6,02 < × < 6,13 | 57,6 < × < 63,1 |
| Lechitka | 7 | 4,81 < × < 4,85 | 6,05 < × < 6,26 | 60,1 < × < 63,1 |
| hod. Końskowoli | 3 | 4,75 < × < 5,23 | 5,77 < × < 6,44 | 44,8 < × < 75,2 |
| Luboszanka | 5 | 4,75 < × < 4,92 | 6,07 < × < 6,32 | 50,5 < × < 56,7 |
Przez n oznaczono liczbę badanych rojów. Dane dla linii pszczoły krajowej zaczerpnięto z pracy Gromisza i Cieśli (1973), pozostałe opracowano na podstawie materiałów zgromadzonych w Oddziale Pszczelnictwa IS (car×car — pnie zarodowe, stąd brano materiał do wychowu matek i trutni do krzyżowania w naszym doświadczeniu).
Wartością cech morfologicznych pszczoły miejscowe w naszym doświadczeniu nie zawsze mieszczą się w przedziałach, jakie podaliśmy w charakterystyce poszczególnych linii hodowlanych (tab. 1). Jest to
strona 81Tabela 1 Średnia wartość 3 cech morfologicznych pszczół linii krajowych i ich mieszańców z krzyżowania zwrotnego z pszczołami obcych ras
| Wyszczególnienie | strona rodzicielska | Pszczoły miejscowe (m): Mazurka | Pszczoły miejscowe (m): Pokrowka | Pszczoły miejscowe (m): Lechitka | Pszczoły miejscowe (m): hodowli Końskowoli | Pszczoły miejscowe (m): Luboszanka |
|---|---|---|---|---|---|---|
| Szerokość 3 i 4 tergitu w mm | ||||||
| m | 4,914 | 4,856 | 4,802 | 4,839 | 4,757 | |
| cau | matka | 4,845 | 4,822 | 4,796 | 4,806 | 4,737 |
| truteń | 4,852 | 4,873 | 4,833 | 4,808 | 4,744 | |
| car | matka | 4,880 | 4,868 | 4,744 | 4,812 | 4,812 |
| truteń | 4,922 | 4,810 | 4,846 | 4,825 | 4,777 | |
| Długość języczka w mm | ||||||
| m | 6,172 | 5,995 | 5,970 | 6,207 | 6,069 | |
| cau | matka | 6,528 | 6,549 | 6,576 | 6,446 | 6,446 |
| truteń | 6,198 | 6,031 | 6,204 | 6,286 | 6,329 | |
| car | matka | 6,222 | 6,226 | 6,232 | 6,460 | 6,256 |
| truteń | 6,175 | 6,045 | 6,056 | 6,265 | 6,198 | |
| Indeks kubitalny | ||||||
| m | 61,3 | 58,2 | 61,4 | 61,4 | 59,4 | |
| cau | matka | 56,3 | 58,5 | 53,7 | 59,6 | 62,3 |
| truteń | 60,6 | 60,8 | 60,1 | 60,2 | 59,5 | |
| car | matka | 59,6 | 54,4 | 49,4 | 57,3 | 49,1 |
| truteń | 65,8 | 60,0 | 64,9 | 59,3 | 56,6 |
oczywiste, bo pszczoły grupy m×m w pasiekach Zespołu Badawczego należały wprawdzie do tych linii, ale reprezentowały w ich obrębie kolejne, dalsze pokolenie, i stąd mogą zachodzić pewne odchylenia.
Wartość cech mieszańców F1 pszczół-robotnic w naszych krzyżówkach różnicowała się znacznie. U części rojów mieszańców przejawia się pośrednie dziedziczenie badanych przez nas cech morfologicznych. Roje te należą wyłącznie do grup porównawczych cau×m i car×m, a więc do tego typu krzyżowania, gdzie matki reprezentują rasy obce, trutnie natomiast — pszczołę miejscową. W grupach porównawczych m×cau i m×car pszczoły mieszańce były bliskie lub identyczne wartością cech morfologicznych pszczołom miejscowym, czyli tym, z których pochodziła matka. W warunkach naszego doświadczenia uzyskano zatem niezgodność wartości cech morfologicznych u mieszańców F1 z krzyżowania obukierunkowego. Omówimy obszerniej to zagadnienie, ale przed tym poświęcimy trochę miejsca scharakteryzowaniu zmienności osobniczej wewnątrz rojów i zmienności pomiędzy rojami w grupach porównawczych.
Jako miarę zmienności osobniczej wewnątrz rojów przyjęliśmy wskaźniki zmienności (V). Ich średnia wartość dla sumy szerokości III
strona 82i IV tergitu (t), długości języczka (j) i indeksu kubitalnego (i) w poszczególnych grupach rasowych układała się następująco:
| t | j | i | |
|---|---|---|---|
| m×m | 1,88 | 2,39 | 12,60 |
| cau×m | 1,93 | 2,52 | 12,24 |
| m×cau | 1,93 | 3,00 | 12,50 |
| car×m | 1,98 | 2,43 | 13,36 |
| m×car | 2,18 | 3,05 | 12,99 |
Przeciętne wyrównanie pogłowia pszczół w rojach kształtuje się na podobnym poziomie we wszystkich grupach. Grupy te różnią się jednak nieco rozkładem wartości wskaźników zmienności. Na przykład krańcowe wartości V dla długości języczka pszczół w rojach grupy cau×m wynoszą 1,57 i 3,54, podczas gdy w grupie m×cau — 1,33 i 2,80. Tego rodzaju różnicowanie się pragniemy zilustrować, podając procentowy udział rojów w uporządkowaniu ich według wartości wskaźników zmienności. Podajemy tutaj także rozkład wskaźników zmienności dla 389 rojów nieselekcjonowanej populacji pszczoły krajowej, opracowany na podstawie danych z publikacji Bornusa, Demianowicza i Gromisza (1966). Otrzymamy następującą frekwencję rojów w %:
dla sumy szerokości III i IV tergitu:
| V : ≤2,2 | 2,3—3,4 | 3,4 < | |
|---|---|---|---|
| m×m | 90,5 | 9,5 | — |
| cau×m | 85,7 | 14,3 | — |
| m×cau | 81,0 | 19,0 | — |
| car×m | 85,0 | 15,0 | — |
| m×car | 72,2 | 27,8 | — |
| nieselekcjonowane | 31,6 | 38,3 | 30,1 |
dla długości języczka:
| V : ≤1,5 | 1,6—2,5 | 2,6—3,5 | 3,5 < | |
|---|---|---|---|---|
| m×m | 4,8 | 47,6 | 38,1 | 9,5 |
| cau×m | — | 47,6 | 52,4 | — |
| m×cau | — | 33,3 | 42,9 | 23,8 |
| car×m | 5,2 | 68,4 | 21,1 | 5,3 |
| m×car | 11,1 | 27,8 | 27,8 | 33,3 |
| nieselekcjonowane | 52,2 | 36,0 | 8,5 | 3,3 |
dla indeksu kubitalnego:
| V : ≤9,0 | 10,0—15,0 | 15,0 < | |
|---|---|---|---|
| m×m | 4,8 | 76,2 | 19,0 |
| cau×m | 9,5 | 90,5 | — |
| m×cau | — | 90,5 | 9,5 |
| car×m | 5,0 | 70,0 | 25,0 |
| m×car | 11,1 | 66,7 | 22,2 |
| nieselekcjonowane | 6,7 | 75,6 | 17,7 |
W kształtowaniu się zmieności indeksu kubitalnego roje naszych grup rasowych nie różniły się w zasadzie od rojów populacji rozmnażającej się losowo, w sumie szerokości III i IV tergitu osiągnęły one od nich większe wyrównanie, natomiast w długości języczka ustępowały im pod tym względem. Duża zmienność długości języczka, większa niż przeciętnie występująca w rojach, była pewnym zaskoczeniem. W rojach mieszańców F1 spodziewaliśmy się znaleźć mniejszą zmienność osobniczą, a w każdym razie nie większą od tej, jaka występuje w rojach populacji nieselekcjonowanej. Mieszańce F1, zarówno zwierzęta jak i rośliny, charakteryzują się bowiem na ogół stosunkowo małą zmiennością cech. W naszym doświadczeniu sprawdziło się to całkowicie w stosunku do sumy szerokości III i IV tergitu, i także częściowo do wartości indeksu kubitalnego. Zwracamy uwagę, że zmienność tych dwóch cech była poza jedynym wyjątkiem (indeks kubitalny: car×m i m×car) najwyższa u mieszańców m×cau i m×car. Roje tych dwóch typów mieszańców i pod względem długości języczka przedstawiały małe wyrównanie.
Tabela 2 Uporządkowanie średnich sum szerokości III i IV tergitu dla rojów w szeregu rozdzielczym
| Grupa rasowa | 4,60–4,68 mm | 4,68–4,72 mm | 4,72–4,76 mm | 4,76–4,80 mm | 4,80–4,84 mm | 4,84–4,88 mm | 4,88–4,92 mm | 4,92–4,96 mm | 4,96–5,60 mm | S | V |
|---|---|---|---|---|---|---|---|---|---|---|---|
| m×m | — | — | 3 | 1 | 10 | 3 | 1 | — | 3 | 0,0729 | 1,50 |
| cau×m | — | 3 | 4 | 2 | 6 | 4 | 2 | — | — | 0,0616 | 1,28 |
| m×cau | 1 | 2 | — | 4 | 4 | 7 | 2 | 1 | — | 0,0693 | 1,44 |
| car×m | — | 1 | 2 | 6 | 5 | 2 | 3 | — | 1 | 0,0700 | 1,45 |
| m×car | — | — | 2 | 4 | 7 | 3 | 1 | — | 1 | 0,0538 | 1,11 |
Najmniejszy średni wskaźnik wielkości pszczoły (suma szerokości III i IV tergitu) wynosił 4,673 mm i należał do roju z grupy m×cau, największy — 5,002 mm — zanotowano natomiast w grupie pszczół miejscowych. Krańcowe wartości średnie długości języczka dla rojów wynosiły 5,873 mm (m×m) i 6,908 mm (cau×m) a dla indeksu kubitalnego — 44,6 (car×m) i 69,7 (m×m). Poszczególne grupy rasowe różniły się nie tylko wartością cech dla rojów, ale także i zmiennością tych wartości. Możemy mierzyć ją standardowym odchyleniem (tab. 2, 3, 4). Zaznacza się tutaj większa zmienność średnich z rojów w grupach cau×m i car×m w stosunku do mieszańców odwrotnych. Potwierdzają to także wskaźniki zmienności trzech badanych cech, obliczone dla tych grup.
Czy zmienność między rodzinami w obrębie grup jest duża czy mała? Spróbujemy znaleźć odpowiedź na to pytanie, porównując pod tym względem nasze roje doświadczalne z populacją pszczół rozmnażających się losowo. Wybraliśmy do tego celu populację pszczoły krajowej z południowo-zachodniego
strona 84Podlasia. W badaniach z lat 1957—1958 nie znaleziono tam domieszki obcych ras (Bornus, Demianowicz i Gromisz 1966). Z zebranych wówczas na tym terenie próbek pszczół wylosowano do naszego porównania 22 próbki, reprezentujące roje pszczół w dorzeczu dolnego Bugu. Standardowe odchylenie dla zbioru tych rojów wynosi: suma szerokości III i IV tergitu — 0,0469 mm, długości języczka — 0,0424 mm, indeks kubitalny — 2,52. Jeżeli te wartości przyjmiemy za 1,0, to standardowe odchylenie dla grup porównawczych w naszym doświadczeniu uzyskają wskaźniki następujące:
| t | j | i | |
|---|---|---|---|
| m×m | 1,55 | 3,75 | 1,43 |
| cau×m | 1,31 | 4,49 | 2,20 |
| m×cau | 1,48 | 3,95 | 1,38 |
| car×m | 1,49 | 4,27 | 2,24 |
| m×car | 1,15 | 3,56 | 2,17 |
Różnice morfologiczne pomiędzy rojami w poszczególnych grupach są więc o wiele większe niż się spotyka w nieselekcjonowanej populacji pszczół, w długości języczka nawet 3,5—4,5 razy. Roje z grupy m×m nie odróżniają się specjalnie pod tym względem od mieszańców, zwłaszcza z połączenia typu m×cau i m×car. Zmienność cech morfologicznych w tych grupach rasowych kształtuje się więc na podobnym poziomie. Jest ona natomiast przeciętnie większa u mieszańców, gdzie obce rasy reprezentowane są przez matki.
Tabela 3 Uporządkowanie średnich długości języczka rojów w szeregu rozdzielczym
| Grupa rasowa | 5,90–5,96 mm | 5,96–6,04 mm | 6,04–6,12 mm | 6,12–6,20 mm | 6,20–6,28 mm | 6,28–6,36 mm | 6,36–6,44 mm | 6,44–6,52 mm | 6,52–6,60 mm | 6,60–6,68 mm | 6,68–6,76 mm | S | V |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| m×m | 3 | 6 | 4 | 1 | 4 | 1 | 2 | — | — | — | — | 0,1590 | 2,60 |
| cau×m | — | — | — | 2 | 2 | — | 3 | 4 | 3 | 4 | 3 | 0,1905 | 2,93 |
| m×cau | 1 | — | 3 | 9 | 4 | 1 | — | 1 | 1 | 1 | — | 0,1673 | 2,69 |
| car×m | 1 | — | 1 | 5 | 3 | 3 | 4 | 1 | — | — | 1 | 0,1811 | 2,88 |
| m×car | 1 | 2 | 3 | 7 | 2 | 1 | 1 | 1 | — | — | — | 0,1510 | 2,45 |
W stosunku do grup rojów doświadczalnych wybrana przez nas nieselekcjonowana populacja pszczół otrzymuje korzystniejszą ocenę stopnia wyrównania cech morfologicznych. Ustępują jej znacznie pod tym wzglęwzględem także i pszczoły z grupy m×m. Nie powinniśmy się jednak temu dziwić. Roje typu m×m reprezentują w naszym doświadczeniu różne linie pszczoły krajowej, są przeto bardziej zróżnicowane morfologicznie, niż mogło to wystąpić w populacji z niewielkiej części kraju w dorzeczu
strona 85Bugu. W różnicowaniu się długości języczka roje grupy m×m, przekroczyły jednak granice zmienności, występującej w ogólnej populacji pszczół naszego kraju, której opis znamy z pracy Bornusa, Demianowicza i Gromisza (1966, 389 rojów). Stwierdziliśmy to na podstawie standardowych odchyleń, których wartość dla grupy m×m przyjęliśmy za 1,0. Otrzymaliśmy:
dla długości języczka — 1,44 dla szerokości III i IV tergitu — 0,61 dla indeksu kubitalnego — 0,67
Tabela 4 Uporządkowanie średnich wartości indeksu kubitalnego rojów w szeregu rozdzielczym
| Grupa rasowa | 44—46 | 46—48 | 48—52 | 52—56 | 56—60 | 60—64 | 64—68 | 68—72 | S | V |
|---|---|---|---|---|---|---|---|---|---|---|
| m×m | — | — | — | 2 | 9 | 9 | — | 1 | 3,60 | 6,0 |
| cau×m | — | 2 | 2 | 2 | 6 | 8 | 1 | — | 5,44 | 9,4 |
| m×cau | — | — | 1 | 2 | 7 | 9 | 2 | — | 3,47 | 5,8 |
| car×m | 1 | 3 | 3 | 2 | 7 | 3 | 1 | — | 5,64 | 10,0 |
| m×car | — | — | 2 | 2 | 3 | 5 | 6 | — | 5,47 | 9,0 |
Długość języczka jest więc cechą, która najbardziej różnicuje roje grupy porównywanej, reprezentującej w naszym doświadczeniu pszczołę miejscową. Nasuwają się także następne stwierdzenia:
a) zmienność cech morfologicznych mieszańców kształtuje się podobnie jak i zmienność rojów grupy m×m, inaczej mówiąc odrębność morfologiczna poszczególnych linii hodowlanych może potwórzyć się w cechach mieszańców;
b) istnieją możliwości osiągnięcia dużego wyrównania cech w populacji pszczół swobodnie się rozmnażającej bez nacisku selekcyjno-hodowlanego ze strony człowieka; to zagadnienie odbiega jednak od tematu naszej pracy.
Dotychczas omawialiśmy zakres zmienności rojów w grupach porównywanych dla każdej cechy oddzielnie. Można jednak dokonywać ogólnej oceny zmienności na podstawie cech, przeprowadzając do tego celu normalizację ich wartości. Otrzymujemy wtedy wskaźniki podobieństwa, na przykład pomiędzy rojami poszczególnych grup. Im wartości wskaźników podobieństwa są niższe, bliższe zeru, tym podobieństwo jest większe. Do porównywania tego rodzaju wybraliśmy losowo w grupie m×m po jednym roju z każdej linii pszczół i po jednym roju ich mieszańców z pszczołą kaukaską, a więc razem po 5 rojów typu m×m, cau×m i m×cau. Wykorzystaliśmy tutaj także z materiałów Oddziału Pszczelnictwa IS ocenę morfologiczną rojów typu cau×cau, cau×m i m×cau, z obsadą matek unasienionych sztucznie, po 5 w każdej grupie.
strona 86Wewnątrz tych grup otrzymaliśmy następujące wskaźniki podobieństwa pomiędzy rojami dla matek unasienionych naturalnie (a) i sztucznie (b):
| a | b | |
|---|---|---|
| m×m | 5,4 | — |
| cau×m | 6,9 | 7,3 |
| m×cau | 6,2 | 6,4 |
| cau×cau | — | 6,9 |
Różnice we wskaźnikach są nieznaczne. Pogłowie pszczół wszystkich grup jest zatem podobnie wyrównane, niezależnie od rasy, doboru rodziców do krzyżowania i od sposobu unasieniania matek. Przytoczone tu wartości wskaźników podobieństwa są jednak wysoce przekraczane przy porównywaniu pod tym względem poszczególnych grup rasowych w naszym doświadczeniu. Najbardziej różnią się między sobą, trzema cechami morfologicznymi, pszczoły typu m×m i cau×cau, ich wskaźnik podobieństwa wynosi 30,7. Świetnie ilustruje to dendryt, gdzie górną jego część zajmują pszczoły m×m, dolną — cau×cau (ryc. 1). Środek dendrytu wypełniają natomiast roje mieszańców tych dwóch ras. Taką kolejność na rysunku dendrytu zajmują roje zarówno z matkami unasienionymi na trutowisku jak i sztucznie w laboratorium, chociaż rozmieszczenie ich jest nieco odmienne. Pszczoły mieszańce typów m×cau i cau×m od matek sztucznie unasienionych przeplatają się w dendrycie nawzajem,
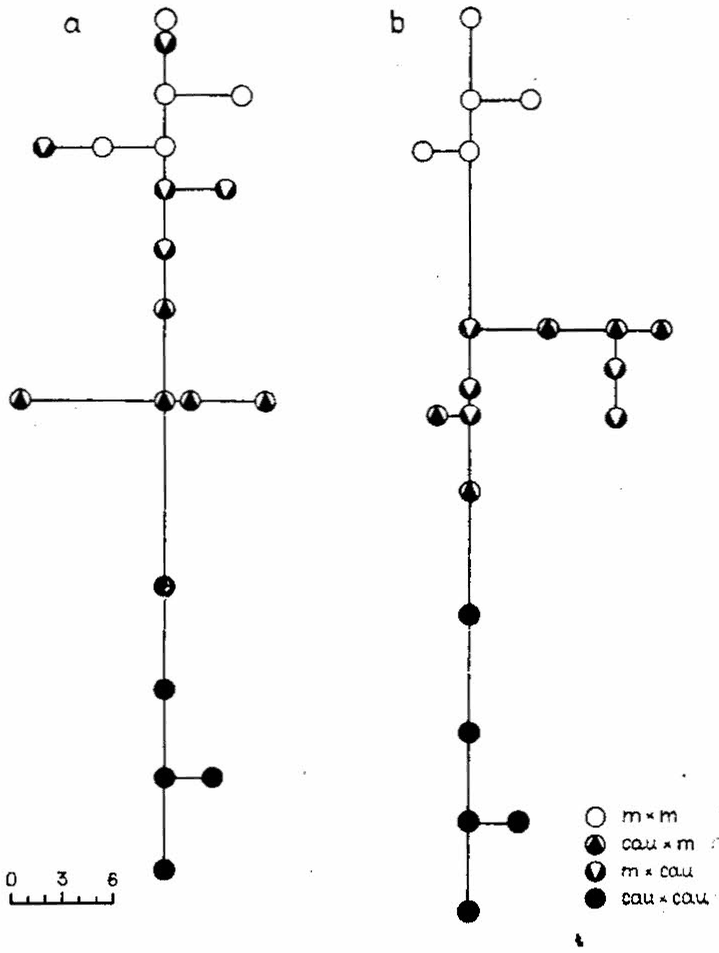
Ryc. 1. Dendryty wrocławskie zbiorów rojów z matkami naturalnie (a) i sztucznie (b) unasienionymi w grupach cau×m i m×cau
natomiast od matek naturalnie unasienionych rozdzielają się w odrębne skupiska i brakuje tu zdecydowanej różnicy między rojami typów m×m i m×cau. Można scharakteryzować wielkość różnic poszczególnych grup rojów w stosunku do m×m dla matek naturalnie (a) i sztucznie (b) unasienionych:
| a | b | |
|---|---|---|
| m×m: m×cau | 6,2 | 18,0 |
| cau×m | 15,8 | 18,6 |
| cau×cau | 30,7 | 30,7 |
Wskaźnik podobieństwa między mieszańcami zwrotnymi w obrębie matek naturalnie unasienionych wynosi 13,5, a sztucznie unasienionych — 6,0. Ta druga wartość kształtuje się więc na poziomie, jaki osiąga zróżnicowanie cech rojów w obrębie naszych grup rasowych. Możemy więc traktować mieszańców cau×m i m×cau od matek sztucznie unasienionych jako populację jednorodną. Brakuje między nimi na tyle dużych różnic w badanych przez nas cechach, żeby można było tu mówić o odrębności fenotypowej.
Inaczej przedstawia się rzecz z mieszańcami tych typów od matek unasienionych na trutowisku do obsady pni doświadczalnych. Odrębność morfologiczna zaznacza się między nimi wyraźnie. Mieszańce cau×m z tych krzyżówek odpowiadają wartością cech mieszańcom typu cau×m i m×cau od matek sztucznie unasienionych, wskaźniki podobieństwa między nimi wynoszą 7,31 i 7,28. Naturalne i sztuczne unasienienie matek pszczelich daje tutaj takie same rezultaty, mierzone fenotypem mieszańców. Inaczej było w naszym doświadczeniu przy unasienianiu na trutowisku matek krajowych przez trutnie ras obcych. Mieszańce z tego krzyżowania osiągały inne wartości cech niż występują u odpowiadających mieszańców zwrotnych, i przypominały nimi pszczołę miejscową. Na przykład dla długości języczka otrzymujemy następujące wartości w mm (a — naturalnie, b — sztucznie unasienione):
| a | b | |
|---|---|---|
| m×m | 6,043 | — |
| m×cau | 6,133 | 6,594 |
| cau×m | 6,538 | 6,602 |
| cau×cau | — | 7,004 |
Genetyczny materiał rasowy, wprowadzany do krzyżowania czy ze strony matki czy trutnia jest taki sam. Mieszańce otrzymują więc założenia dziedziczne podobne, niezależnie od tego, które z rodziców reprezentuje daną rasę. Sprawdziło się to w doświadczeniach Oddziału Pszczelnictwa IS, gdzie unasieniano matki sztucznie. Inne wyniki otrzymaliśmy w doświadczeniu Zespołu Badawczego przy unasienianiu matek na trutowiskach. Przyczyny chyba należy szukać w niedostatecznej izolacji
strona 88od trutni niepożądanych. Sprawa sprowadza się więc do kwestii techniki doboru rodziców do kojarzenia. Na trutowiskach, gdzie wystawiano do krzyżowania matki obcych ras, braki tego rodzaju nie mogły (o ile w ogóle zaistniały) uwidocznić się wyraźnie w fenotypie mieszańców, bo dobór trutni odbywał się w obrębie pszczoły krajowej. Różnice morfologiczne między pszczołami krajowymi selekcjonowanych linii i populacji nieselekcjonowanych wokół trutowisk nie są na tyle wielkie, żeby na nielicznym naszym materiale można było analizować czystość unasienienia. Niezależnie od tego czy dany mieszaniec międzyrasowy przedstawia produkt udanego lub nieudanego pod względem użytkowym połączenia rodziców, jest on mieszańcem typu cau×m czy car×m, bo matki zostały unasienione w środowisku pszczoły miejscowej.
Inaczej wygląda w naszych warunkach produkcja mieszańców na trutowiskach, gdzie zabezpiecza się dobór trutni ras obcych. Na skutek niedostatecznej izolacji otrzymujemy wtedy reprodukcję pszczoły miejscowej, tylko może w pewnym odsetku zmieszańcowanej. Na podstawie oceny morfologicznej możemy przypuszczać, że w unasienianiu matek do naszego doświadczenia dla grup porównawczych m×cau i m×car brał udział tylko pewien procent trutni ras obcych. Grupy te reprezentowały przede wszystkim pszczołę miejscową, pochodzącą z różnych linii hodowlanych, po matkach unasienionych na dwóch trutowiskach, przygotowywanych dla rasy kaukaskiej i kraińskiej, ale niedostatecznie izolowanych. Pod względem genetycznym grupy cau×m i m×cau oraz car×m i m×car nie były więc jednakowe.
Ocenę jakości trutowisk, a więc i charakterystykę genetyczną materiału doświadczalnego, przeprowadziliśmy na podstawie badań morfologicznych. Pragniemy na tym tutaj poprzestać, nie wyrażając ogólnej opinii o fenotypach mieszańców z krzyżowania zwrotnego, bo to byłoby pochopne. Przytoczony przez nas w tej pracy przykład schematu dziedziczenia cech jest niewystarczający do tego celu. Należy z tym poczekać do czasu całkowitego opracowania materiału zgromadzonego w Oddziale Pszczelnictwa IS na ten temat.
WNIOSKI
Z badań wynika, że pszczoły-robotnice mieszańce F1 pszczół krajowych i ras obcych pod względem wartości cech morfologicznych zajmują pośrednie miejsce pomiędzy formami rodzicielskimi. Mieszańce z krzyżowania zwrotnego nie różnią się cechami morfologicznymi. Inne wyniki świadczą o braku pełnej kontroli doboru rodziców do kojarzenia. W doświadczeniu Zespołu Badawczego miało to miejsce na trutowisku z obsadą pni ojcowskich pszczół obcych ras w środowisku populacji pszczoły krajowej. Od matek krajowych, unasienianych na tych trutowiskach, otrzymano robotnice podobne cechami morfologicznymi do pszczół miejscowych.
strona 89Badania morfologiczne pszczół pozwalają na przeprowadzenie oceny skuteczności doboru rodziców, czystości trutowiska, zwłaszcza przy krzyżówkach międzyrasowych.
U mieszańców F1 pszczół krajowych linii z obcymi rasami, zwłaszcza kaukaską, wystąpiła bardzo duża zmienność długości języczka. Dobór odpowiednich linii pszczół do krzyżowania międzyrasowego może zapewnić uzyskiwanie wartości tej cechy na wysokim poziomie, co podnosi gospodarcze znaczenie mieszańców tego typu w zapylaniu koniczyny czerwonej.
LITERATURA
Bornus L., Demianowicz A., Gromisz M. (1966) — Morfometryczne badania krajowej pszczoły miodnej Apis mellifica L. Pszczeln. Zesz. Nauk., 10(1—4): 1—46
Bornus L. i Gromisz M. (1969) — Matematyczne modele populacji pszczół różnych ras. Pszczeln. Zesz. Nauk., 13(1—3): 73—82
Bornus L., Gromisz M. i Velickov V. (1967) — Ocena linii zarodowych pszczół w Polsce metodą taksonomii wrocławskiej. Pszczeln. Zesz. Nauk., 11(1—3): 51—60
Goetze G. (1930) — Variabilitäts und Züchtungsstudien an der Honigbiene mit besonderer Berücksichtigung der Langrüsseligkeit. Archiv f. Bienen., 11: 185—279.
Gromisz M. (1967a) — Porównanie pszczoły Podkarpacia z pszczołami północnej Polski (Apis mellifica mellifica L.) i dorzecza Dunaju (Apis mellifica carnica Pollm.). Pszczeln. Zesz. Nauk., 11(1—3): 1—35
Gromisz M. (1967b) — Przydatność niektórych cech morfologicznych w systematyce wewnątrz gatunku Apis mellifica L. Pszczeln. Zesz. Nauk., 11(1—3): 37—50
Gromisz M. (1971) — Tergity odwłokowe jako wskaźnik wielkości ciała pszczoły. Pszczeln. Zesz. Nauk., 15(1—2) : 15—27
Gromisz M. (1974) — Długość języczka pszczół oblatujących koniczynę czerwoną. Pszczeln. Zesz. Nauk., 18 : 91—106
Gromisz M. i Cieśla L. (1973) — Charakterystyka morfologiczna pszczół linii selekcjonowanych w Polsce. Pszczeln. Zesz. Nauk., 17 : 17—27
Gubin A.F. (1936) — Bestäubung und Erhöhung der Samenernte bei Rotklee Trifolium pratense L. mit Hilfe der Bienen. Archiv f. Bienen., 17 : 209—264.
Wawryn T. (1969) — Wykorzystanie pszczół w podnoszeniu plonu nasion koniczyny czerwonej — Trifolium pratense L. Dyzertacja doktorska. Biblioteka Oddziału Pszczelnictwa IS.
МОРФОЛОГИЧЕСКАЯ ОЦЕНКА МЕЖПОРОДНЫХ ГИБРИДОВ МЕДОНОСНОЙ ПЧЕЛЫ
М. Громиш, Л. Борнус, Е. Бобжецки, Ч. Боярчук, Ю. Калиновски, А. Крул, Я. Новаковски, В. Островска, Я. Возьница, Я. Заремба
Резюме
Проведено морфологическую оценку гибридов, полученных путем скрещивания местных пчел с пчелами серой высокогорной кавказской породы и породы краинской. Скрещивание производили на пункте для осемения маток. В 9-ти опытных станциях, с общим числом
strona 90311 пчелосемей, взято 101 пробу рабочих пчел. Исходные породы взятые для скрещивания сильно разнились длиной хоботка, шириной III и IV абдоменального тергита и локтевым индексом. Значение этих признаков у гибридов от маток чужих пород осеменных местными трутнями занимали среднее место между родительскими формами, тогда как у гибридов от местных маток осемененных трутнями чужих пород приближались к местной форме.
В ином исследовании, в котором маток осеменяли искусственным путем, было установлено, что между гибрилами двух пород независимо от направления скрещивания не выступали существенные разницы в значении морфологических признаков. Следует полагать, что в нашем исследовании не удалось полностью избежать примеси трутней местной породы.
MORPHOLOGICAL EVALUATION OF INTERRACIAL HYBRIDS OF HONEY BEE
Gromisz M., Bornus L., Bobrzecki J, Bojarczuk Cz., Kalinowski J., Król A., Nowakowski J., Ostrowska W., Woźnica J., Zaremba J.
Summary
Performed morphological evaluation of interracial hybrids obtained by crossing local bees with Caucasian and Carniolan bess. Mating took place on the mating yard. From the whole number of 311 bee colonies collected 101 samples of bee workers in 9 experimental apiaries. Bee races used for crossing differs considerable in the length of tongue, width of III and IV sternite of abdomen and the cubital index.
Hybrids obtained by crossing Caucasian and Carniolan queens with local drones, had the value of morphological features distributed between parental forms, but hybrids of local queens with Caucasian and Carniolan drones were close in the morphological features to local bees. In other investigation where queens were artifically inseminated did not find such differences in two directions crossing. Therefore it is probable that in our investigation were unsuficant number of Caucasian and Carniolan drones in the mating yards.
Errata — błędy druku znalezione podczas digitalizacji
- s. 77: „charakterstykę” → charakterystykę
- s. 78: „Z ogólne liczby” → Z ogólnej liczby
- s. 83: „zmieności” → zmienności
- s. 84: „wzglęwzględem” → względem
- s. 85: „potwórzyć” → powtórzyć
- s. 90, streszczenie rosyjskie: „осеменных” → осемененных
- s. 90, streszczenie rosyjskie: „абдоменального” → абдоминального
- s. 90, streszczenie rosyjskie: „гибрилами” → гибридами
- s. 90, Summary: „bess” → bees
- s. 90, Summary: „artifically” → artificially
- s. 90, Summary: „unsuficant” → insufficient