

PRZYDATNOŚĆ NIEKTÓRYCH CECH MORFOLOGICZNYCH W SYSTEMATYCE WEWNĄTRZ GATUNKU APIS MELLIFICA L.
tekst: Michał Gromisz
Pszczelnicze Zeszyty Naukowe, Rok XI, 1967 — Michał Gromisz
strona 37PSZCZELNICZE ZESZYTY NAUKOWE ROK XI, nr 1—3 WRZESIEŃ 1967
Michał Gromisz
Oddział Pszczelnictwa I. S.
WSTĘP
W odróżnianiu podgatunków ras czy nawet lokalnych odmian pszczoły miodnej dobrym wskaźnikiem są cechy morfologiczne. Niekiedy nawet są one niezbędne.
Wiele jest znanych i oznaczanych cech morfologicznych pszczół. W zastosowaniu praktycznym hodowcy starają się ograniczać ich liczbę tylko do tych, które wydają się być zdecydowanie niezbędne przy odróżnianiu ras, lokalnych odmian czy grúp pszczół. Dążenia te wypływają z chęci zaoszczędzenia pracy przy morfologicznym opisie pszczół.
W pracy niniejszej starano się dokonać oceny przydatności niektórych cech morfologicznych w systematycznym porządkowaniu pszczół w obrębie gatunku Apis mellifica L., mając na względzie ułatwienie selekcji i hodowli.
PRZEGLĄD LITERATURY
Podział systematyczny gatunku Apis mellifica L. opiera się na cechach morfologicznych i biologicznych. Udział cech morfologicznych w badaniach taksonomicznych pszczół jest znacznie większy niż cech biologicznych. Przewaga ich polega raczej nie na ilości, ale na wartości obiektywnej pomiaru i na możliwości zastosowania tu na szeroką skalę metod statystyczno-matematycznych. Poza tym cechy morfologiczne w mniejszym stopniu podlegają zmienności pod wpływem środowiska niż niektóre z cech biologicznych.
Do najczęściej oznaczanych cech morfologicznych w badaniach systematycznych należą: wielkość pszczoły, długość języczka, wymiary przedniego skrzydła, kolor i rodzaj owłosienia pancerza, liczba haczyków na tylnym skrzydle (Skorikow 1929, Goetze 1930, 1940, 1964,
strona 38Michailoff 1931, Ałpatow 1948, Droege 1960). Rzadziej natomiast brane są pod uwagę: rysunek użyłkowania na przednim skrzydle, różnice w budowie organów płciowych trutnia i w budowie aparatu żądłowego robotnicy, wielkość poszczególnych członów tylnego odnóża, pojemność wola miodowego, liczba rureczek jajnikowych matek, wymiary sternitów, wielkość lusterka woskowego, długość członów czułka, układ szczecinek na pierwszym członie stopy robotnicy, liczba pierścieni, z których składa się glossa (Alpatow 1930, Komaroff i Alpatov 1934, Goetze 1959, 1964, Lukoschus 1954, Kolesnikow 1960, Bährmann 1965, Louis 1965, el Bandy 1965, Ruttner 1965, Sekczijew 1965). Poza wymienionymi badane są czasem i inne cechy fizyczne pszczoły. Poszukując cechy najlepiej określającej odrębność rasową badanej populacji niektórzy autorzy obliczają różne indeksy, wyrażające wzajemny stosunek określanych cech, czy też wielkości poszczególnych części ciała. Z tego typu oznaczeń duże znaczenie uzyskał indeks kubitalny na przednim skrzydle robotnic (Michailoff 1931, Goetze 1940, Ałpatow 1948). Inne indeksy, na przykład stosunek do siebie poszczególnych członów wargi dolnej (submentum, mentum, glossa) lub wzajemny stosunek członów tylnego odnóża itp. (Farcas 1939, Goetze 1940, Weiss 1955), wydają się nie mieć większego praktycznego znaczenia. Wyjątkowo dużo indeksów w pomiarach biometrycznych pszczół zastosował Kolesnikow (1960) i el Bandy (1965).
W badaniach morfologicznych prowadzonych w Polsce oznacza się następujące cechy pszczół: sumę szerokości III i IV tergitu odwłokowego (wielkość pszczoły) długość języczka, wymiary skrzydeł (długość i szerokość), szerokość IV sternitu, powierzchnia lusterka woskowego na IV sternicie, liczbę haczyków na tylnym skrzydle, kolor pancerza, indeks kubitalny. Na podstawie zespołu tych cech opisano i scharakteryzowano pszczołę krajową (Bornus i inni 1966). Wyodrębnione zostały typy pszczół związane ściśle z regionami.
MATERIAŁ I METODA
Jako materiał do badań posłużyły pszczoły z 24 rojów, reprezentujących 8 ras czy populacji z różnych geograficznie środowisk. Pobrano próbki z 3 rojów każdej rasy: polskie północne (Podlasie), polskie południowe (Podkarpacie), słowackie, rumuńskie, węgierskie, bułgarskie, włoskie i kaukaskie (szare górskie). Próbki pszczół polskich, węgierskich i bułgarskich zostały pobrane z terenu ich naturalnego zasięgu, natomiast wszystkie pozostałe pochodziły od matek importowanych do Polski.
Dokonano oznaczeń 10 cech morfologicznych: sumy szerokości III
strona 39i IV tergitu odwłokowego (sz-t), długości języczka (d-j), szerokość IV sternitu (sz-st), długości (d-l) i szerokości (sz-l) lusterka woskowego na IV sternicie, jego powierzchni (p-l), długości (d-s) i szerokości (sz-sk) prawego skrzydła przedniego, liczby haczyków na tylnym skrzydle (l-h) oraz indeksu kubitalnego (i-k).
Pomiary biometryczne i obliczenia wartości każdej cechy wykonano według metodyki stosowanej w Oddziale Pszczelnictwa IS (Bornus i inni 1966; jako szerokość lusterka woskowego przyjęto pomiar w linii równoległej do kierunku oznaczania szerokości IV sternitu). W próbce pszczół (roju) mierzono 30 robotnic. Z pomiarów tych obliczono następnie średnie wartości (x̄) cech dla roju. Dalsze obliczenia oparto na tych średnich.
Dla określenia stopnia wzajemnego podobieństwa rojów, a zatem i wielkości różnic między nimi, dokonano uporządkowania dendrytowego całego zbioru (24 roje), stosując metodę matematyków wrocławskich (Florek i inni 1951, Perkal 1953). Skonstruowanie dendrytu, przedstawiającego uporządkowany zbiór, poprzedzono zarytmetyzowaniem cech i sporządzeniem tablicy według wzoru Czekanowskiego. Do tablicy wpisywano odległości między rojami, obliczone na podstawie wartości wszystkich oznaczanych 10 cech, lub tylko niektórych, wybranych z tego zespołu. W rezultacie uzyskano kilka dendrytów, pozwalających na porównanie i ocenę poszczególnych zespołów cech, którymi posługiwano się w porządkowaniu tego zbioru rojów.
WYNIKI
Pszczoły reprezentujące 8 populacji różnią się między sobą mniej lub bardziej wartością poszczególnych cech morfologicznych (tab. 1). Brak było jednak cechy, która by w wyraźny sposób wyodrębniała te wszystkie grupy badanych rojów. Włoszki, bardzo różniące się długością języczka np. od naszych pszczół północnych, są podobne do pszczół bułgarskich i węgierskich. Różne natomiast od tych ostatnich pod względem indeksu kubitalnego pszczoły z Kaukazu podobne są pod względem tej cechy do pszczół z północnej Polski. Zależnie od tego jaką z cech morfologicznych bierzemy pod uwagę, otrzymamy różne opinie o stopniu podobieństwa pomiędzy pszczołami z odległych geograficznie środowisk. Wydaje się zatem słuszniejsze porównanie zespołu cech morfologicznych tych populacji. Uporządkowanie zbioru 24 rojów, które ilustruje rycina 1, zostało dokonane na podstawie zespołu 10 badanych cech. Widzimy na tym dendrycie, że niektóre rasy (populacje) pszczół: północno-polska, kaukaska, południowo-polska i słowacka, węgierska i bułgarska tworzą 4 oddzielne grupy. Można więc mówić, że pszczoły odległych geograficznie środowisk wykazują pewną odrębność.
Dotychczas zmierzaliśmy do określenia stopnia podobieństwa rojów-
strona 40Tabela 1 Charakterystyka morfologiczna 8 populacji pszczół — średnie z 3 rojów (cechy oznaczono symbolami jak na rycinie 2) Morphological characteristic of 8 bee populations — average from 3 colonies (description of features as in diagram 2)
| Numer populacji / Number of population | Pochodzenie populacji pszczół / Origin of bee population | sz-t (w mm) | d-j (w mm) | sz-st (w mm) | sz-l (w mm) | d-l (w mm) | p-l (w mm²) | sz-sk (w mm) | d-s (w mm) | l-h | i-k |
|---|---|---|---|---|---|---|---|---|---|---|---|
| 1 | Polska północna / Northern Poland | 4,997 | 6,092 | 2,741 | 1,639 | 2,495 | 2,828 | 3,234 | 9,484 | 20,34 | 63,1 |
| 2 | Polska południowa / Southern Poland | 4,839 | 6,334 | 2,744 | 1,589 | 2,451 | 2,690 | 3,219 | 9,399 | 21,18 | 52,0 |
| 3 | Słowacja / Slovakia | 4,866 | 6,430 | 2,817 | 1,617 | 2,499 | 2,793 | 3,284 | 9,390 | 20,39 | 49,6 |
| 4 | Węgry / Hungary | 4,710 | 6,434 | 2,722 | 1,400 | 2,430 | 2,344 | 3,191 | 9,249 | 21,03 | 44,8 |
| 5 | Rumunia / Romania | 4,561 | 6,273 | 2,748 | 1,462 | 2,442 | 2,468 | 3,147 | 9,071 | 21,09 | 44,8 |
| 6 | Bułgaria / Bulgaria | 4,526 | 6,398 | 2,738 | 1,401 | 2,434 | 2,355 | 3,206 | 9,223 | 21,77 | 44,6 |
| 7 | Włochy / Italy | 4,564 | 6,432 | 2,708 | 1,566 | 2,398 | 2,598 | 3,218 | 9,254 | 21,79 | 47,7 |
| 8 | Kaukaz / Caucasus | 4,709 | 6,785 | 2,806 | 1,500 | 2,466 | 2,554 | 3,243 | 9,446 | 20,78 | 60,3 |
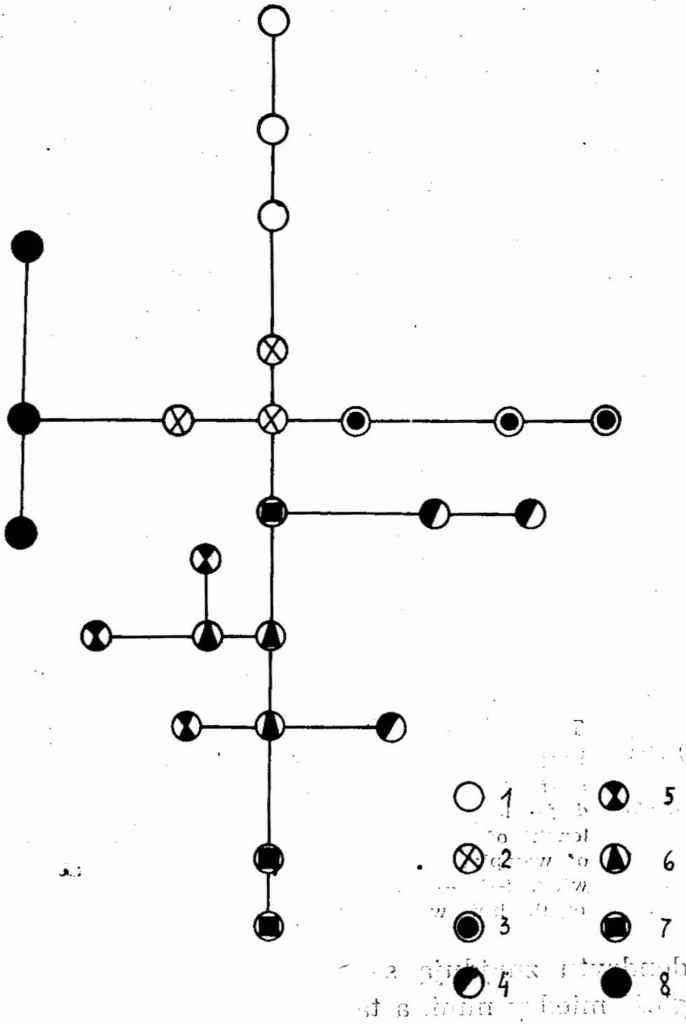
-jednostek ze względu na wartość cech morfologicznych. Lecz można także próbować określać podobieństwo między cechami morfologicznymi pod kątem ich wspólnej wartości dla rojów. Następuję wtedy odwrócenie; cechy morfologiczne traktuje się jako jednostki, a roje jako cechy. O ile przedtem był określany stopień podobieństwa (odległości) między rojami, charakteryzowanymi 10 cechami morfologicznymi, to teraz zachodzi zmiana ról: zostaje określane podobieństwo wzajemne tych cech, odległości między nimi, na podstawie kształtowania się ich wartości dla poszczególnych rojów. Badane roje stanowią tło, na którym przedstawia się stopień podobieństwa pomiędzy poszczególnymi cechami w zmienianiu
strona 42się ich wartości dla różnych populacji pszczół. Z tablicy wartości 10 cech dla zbioru 24 rojów można więc przedstawiać nie tylko podobieństwo rojów-jednostek na podstawie tych cech, ale także podobieństwo cech na tle zbioru rojów.
Odległość wzajemna 10 cech do tablicy wg wzoru Czekanowskiego obliczano z tablicy znormalizowanych cech dla zbioru 24 rojów (tab. 2).
Na odległość na przykład cechy sz-t od cechy d-j składa się suma bezwzględnych różnic pomiędzy znormalizowanymi wartościami cechy sz-t i d-j, obliczanych kolejno dla 24 rojów. Na ryc. 2 pokazano dendryt tych 10 cech morfologicznych.
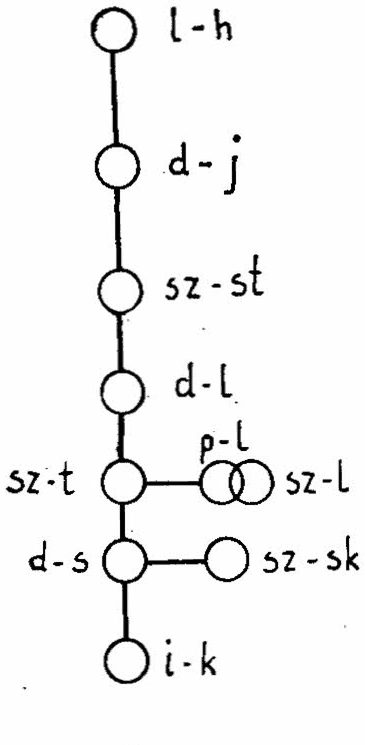
Na górze dendrytu znajdują się cechy: liczba haczyków i długość języczka; odległość między nimi, a także między długością języczka i szerokością IV sternitu, z którym się one łączą, są największe w całym dendrycie (23,29 i 21,17). W środku dendrytu występują: długość skrzydła, suma szerokości III i IV tergitu odwłokowego oraz łącząca się z tą cechą powierzchnia lusterka i szerokość lusterka woskowego. Cechy te wykazują najmniejszą odległość, szczególnie 2 ostatnie (odległość 4,13), co świadczy o tym, że są silnie skorelowane. Słabszą korelację z tą grupą cech wykazuje indeks kubitalny, szerokość skrzydła i szerokość lusterka woskowego (odległość rzędu 15,00—16,00). Natomiast duża ich odległość w stosunku do długości języczka i liczby haczyków informuje o bardzo małej lub zupełnym braku tu korelacji.
Uporządkowany zbiór cech-jednostek (dendryt) można podzielić na części (grupy cech). Może to ułatwić wybranie najważniejszych w zespole cech. W tym celu wystarczy wybrać cechę reprezentatywną w każdej części dendrytu. Za cechę reprezentującą określoną część zbioru uważa się cechę środkową, to znaczy cechę, której suma odległości od wszystkich pozostałych cech tej części zbioru jest najmniejsza. W oma-
strona 43Tabela 2 Tablica cech znormalizowanych dla zbioru 24 rojów (cechy oznaczono symbolami jak na rycinie 2) Table of normalized features for 24 colonies of bees (description of features as in diagram 2)
| Nr populacji / Number of population | Nr roju / Number of colony | sz-t | d-j | sz-st | sz-l | d-l | p-l | sz-sk | d-s | l-h | i-k |
|---|---|---|---|---|---|---|---|---|---|---|---|
| 1 | 1 | +1,42 | −1,62 | −0,96 | +1,07 | +0,86 | +1,14 | +0,59 | +0,51 | −1,43 | +1,43 |
| 2 | +1,79 | −1,31 | −0,26 | +1,22 | +1,10 | +1,34 | +0,80 | +2,23 | −0,23 | +1,72 | |
| 3 | +1,55 | −1,58 | +0,46 | +1,48 | +0,97 | +1,52 | −0,30 | +0,79 | −1,05 | +1,83 | |
| 2 | 4 | +0,91 | −0,82 | −0,09 | +0,76 | +0,14 | +0,66 | +0,57 | +0,85 | −0,58 | −0,15 |
| 5 | +0,63 | −0,10 | −0,22 | +0,72 | +0,36 | +0,51 | +0,09 | +0,42 | −0,15 | +0,27 | |
| 6 | +0,49 | −0,01 | −0,31 | +0,68 | +0,14 | +0,60 | −0,59 | +0,49 | +1,21 | +0,31 | |
| 3 | 7 | +1,02 | +0,53 | +2,25 | +1,32 | +1,37 | +1,48 | +1,96 | +0,42 | −0,84 | −0,53 |
| 8 | +1,03 | −0,02 | +1,53 | +0,46 | +1,17 | +0,71 | +1,75 | +0,46 | −1,98 | −0,16 | |
| 9 | +0,44 | −0,03 | +0,44 | +1,29 | +0,54 | +1,23 | +0,77 | +0,69 | +0,28 | +0,18 | |
| 4 | 10 | −0,28 | +0,12 | +0,35 | −1,25 | −1,24 | −1,39 | −1,28 | −0,71 | −0,54 | −0,21 |
| 11 | +0,37 | −0,05 | −1,27 | −1,27 | +0,14 | −1,11 | −0,16 | −0,41 | −0,96 | −0,96 | |
| 12 | −0,28 | +0,47 | −1,11 | −1,39 | −0,41 | −1,28 | −0,39 | −0,13 | +1,43 | −1,35 | |
| 5 | 13 | −0,57 | −0,50 | +0,66 | −0,29 | +0,79 | −0,06 | −1,69 | −1,40 | +0,79 | −0,51 |
| 14 | −1,01 | −0,53 | +0,31 | −0,55 | +0,59 | −0,33 | −2,42 | −1,93 | −0,45 | −1,11 | |
| 15 | −1,21 | −0,80 | −1,31 | −1,08 | −2,05 | −1,39 | −0,73 | −1,76 | −0,19 | −0,89 | |
| 6 | 16 | −1,23 | +0,15 | −0,37 | −1,31 | −1,19 | −1,40 | −0,43 | −0,85 | +0,54 | +0,03 |
| 17 | −1,62 | −0,29 | −0,44 | −1,27 | −0,07 | −1,06 | −0,27 | −0,58 | +0,87 | −1,19 | |
| 18 | −0,56 | +0,16 | −0,15 | −1,31 | +0,07 | −1,13 | −0,11 | −0,49 | +1,34 | −1,43 | |
| 7 | 19 | −0,77 | +0,72 | −1,29 | +0,28 | −1,69 | −0,18 | +0,48 | −0,72 | +1,30 | −0,38 |
| 20 | −1,31 | −0,28 | −1,53 | +0,17 | −1,87 | −0,32 | −0,25 | −0,60 | +1,18 | −0,38 | |
| 21 | −0,66 | +0,09 | −0,13 | +0,95 | −0,05 | +0,80 | −0,25 | +0,04 | +0,36 | −0,53 | |
| 8 | 22 | +0,46 | +1,56 | +1,73 | +0,09 | +1,22 | +0,33 | +1,19 | +1,30 | +0,15 | +1,30 |
| 23 | +0,32 | +1,09 | +1,00 | −0,36 | −0,09 | −0,33 | −0,27 | +1,28 | +0,49 | +1,19 | |
| 24 | −1,00 | +3,08 | +0,74 | −0,42 | −0,16 | −0,40 | +0,77 | +0,16 | −1,69 | +1,38 |
wianym zespole 10 cech, środkową cechą jest powierzchnia lusterka woskowego, bo suma jej odległości od 9 pozostałych cech zbioru jest mniejsza niż suma takich odległości dla każdej innej cechy. Powierzchnia lusterka woskowego daje więc charakterystykę morfologiczną badanych rojów najbardziej zbliżoną do tej, którą otrzymamy na podstawie zespołu 10 cech.
W celu wybrania najważniejszych cech uporządkowanie dendrytowe dzielono kolejno na 2, 3, 4, 5, 6, 7, 8, i 9 części, wyszukując każdorazowo dla poszczególnych części cechę środkową. Przy podziale na 2 części w drugiej znalazła się tylko liczba haczyków. Środkową cechą w głównej grupie była powierzchnia lusterka woskowego. Przy dalszych podziałach wyodrębniały się kolejno pojedyncze cechy: długość języczka, szerokość IV sternitu, indeks kubitalny, szerokość skrzydła, długość lusterka woskowego. W głównej grupie, ciągle uszczuplanej ilościowo, środkową cechą pozostawała zawsze powierzchnia lusterka woskowego. Przy podziale dendrytu na 8 części, obok wcześnie wyodrębnionych 6 cech utworzyły się dwie dalsze części po 2 cechy każda: suma szerokości III i IV tergitu odwłokowego z długością skrzydła oraz powierzchnia lusterka woskowego z jego szerokością. Dalszy podział — na 9 części — rozdzielił jeszcze pierwszą parę cech.
Po wykonaniu podziałów dendrytu na części ułożono cechy według ich malejącej ważności od powierzchni lusterka woskowego, przez liczbę haczyków, długość języczka itd. w kolejności, w jakiej wyodrębniały się one, aż do sumy szerokości III i IV tergitu, długości skrzydła i szerokości lusterka woskowego. Dobór cech do badań morfologicznych należałoby rozpocząć zawsze od pierwszej cechy tego szeregu i uwzględniać kolejno dalsze, w miarę wymagań metodycznych przy charakteryzowaniu populacji pszczół.
Sposób określania ważności cech na podstawie analizy matematycznej (dendrytów), nie zawsze może się wydawać przyrodnikom najlepszy. Prowadzi on bowiem do wybrania cech w pewnym sensie przeciętnych dla pewnego ich zespołu, do którego mogą wchodzić cechy zarówno silniej jak i też mniej podkreślające wewnętrzne zróżnicowanie badanego zbioru. W pracy, w której zależy przede wszystkim na wykazaniu odrębności badanych populacji, pożądany jest dobór cech, które te populacje „dzielą”, a nie „łączą”. Dlatego ocenę ważności cech przeprowadzono jeszcze innym sposobem.
Zbiór 24 próbek składał się z 8 rasowych grup, w każdej po 3 roje. Zmienność wartości cech morfologicznych mniejsza była wewnątrz poszczególnych grup (ras) niż w całym zbiorze. Rozmiary tej zmienności — wewnątrz grup i w całym zbiorze — określono dla poszczególnych cech na podstawie ich wartości znormalizowanych, obliczając wielkość przedziału, którego granice oznaczał rozrzut tych cech. Dla długości języczka na przykład krańcowe wartości tej cechy znormalizowanej w grupie
strona 45pszczół północno-polskich (3 roje) wynosiły — 1,617 i 1,308, a zatem wartość przedziału równała się 0,309. Obliczenie rozrzutu znormalizowanej tej cechy w całym zbiorze, przeprowadzonego w sposób analogiczny, przedstawiało się następująco 3,078 — (— 1,617) = 4695 (tab. 2). Dla każdej grupy rasowej uzyskano inną wartość rozrzutu. Z sumy tych wartości obliczono średnią, która charakteryzowała rozmiar rozrzutu w grupach zbioru dla danej cechy. Wyrażenie tej średniej w procentach wartości rozrzutu, jaką wyznaczają roje całego zbioru, daje nam pojęcie o rozmiarach zmienności pomiędzy poszczególnymi rasami. Im zmienność ta jest większa, to znaczy uzyskana wartość liczby procentowej mniejsza, tym cecha ją wykazująca staje się przydatniejsza w naszych badaniach.
W zespole 10 badanych cech morfologicznych najmniejszy wskaźnik procentowy, obrazujący rozmiary zmienności grupy rojów i zmienności całego zbioru, wykazały cechy: szerokość lusterka woskowego (15,7%), długość języczka (15,8%) i długość skrzydła (17,4%, tab. 3). Natomiast
Tabela 3 Rozrzut wartości cech znormalizowanych dla zbioru rojów 8 grup rasowych (cechy oznaczono symbolami jak na rycinie 2) Dispersion of vaule of normalized features for 8 groups of colonies (description of features as in diagram 2)
| Cecha / Feature | Wartość przedziału / Value of dispersion: dla całego zbioru / for all colonies (a) | Wartość przedziału / Value of dispersion: przeciętnie dla grupy / average for group (b) | Procentowy stosunek / Proportion b : a |
|---|---|---|---|
| sz—t | 3,409 | 0,730 | 21,4 |
| d—j | 4,695 | 0,740 | 15,8 |
| sz—st | 3,777 | 1,212 | 32,1 |
| sz—l | 2,870 | 0,450 | 15,7 |
| d—l | 3,424 | 1,247 | 36,4 |
| p—l | 2,920 | 0,635 | 21,7 |
| d—s | 4,160 | 0,725 | 17,4 |
| sz—sk | 4,374 | 1,094 | 25,0 |
| i—k | 3,264 | 0,640 | 19,6 |
| l—h | 3,412 | 1,601 | 46,9 |
cechy: szerokość skrzydła, szerokość IV sternitu, długość lusterka woskowego i liczba haczyków osiągnęły procentową wartość od 25,0% do 46,9%.
Na podstawie przedstawionych tu dwóch sposobów oceny ustalono, że spośród zespołu 10 cech: długość języczka, wielkość pszczoły, powierzchnia lusterka woskowego, indeks kubitalny i długość przedniego skrzydła są najodpowiedniejsze do dendrytowego uporządkowania badanych
strona 46rojów. Biorąc zatem do analizy tych 5 cech, skonstruowano nowy dendryt dla 24 rojów (ryc. 3). W tym z kolei uporządkowaniu zaszły korzystne — z naszego punktu widzenia — zmiany w porównaniu do dendrytu na ryc. 1. Została w nim silniej zaakcentowana odrębność grup
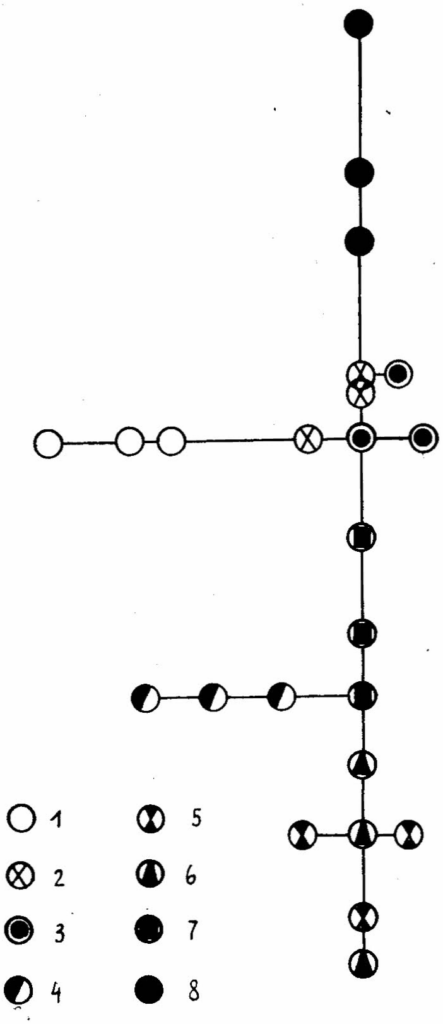
rasowych, przy czym wydzielone zostały także pszczoły rumuńskie i włoskie. Zaznaczyło się również wyraźniej podobieństwo naszych pszczół południowych ze słowackimi.
Wybierając do sporządzenia dendrytu pięć cech z ogólnej ich liczby 10, zyskano lepszą przejrzystość uporządkowanego zbioru rojów i dokładniejsze sprecyzowanie podobieństwa między pszczołami różnych ras. Nasuwa się pytanie, jaką postać przybrałoby uporządkowanie zbioru
strona 47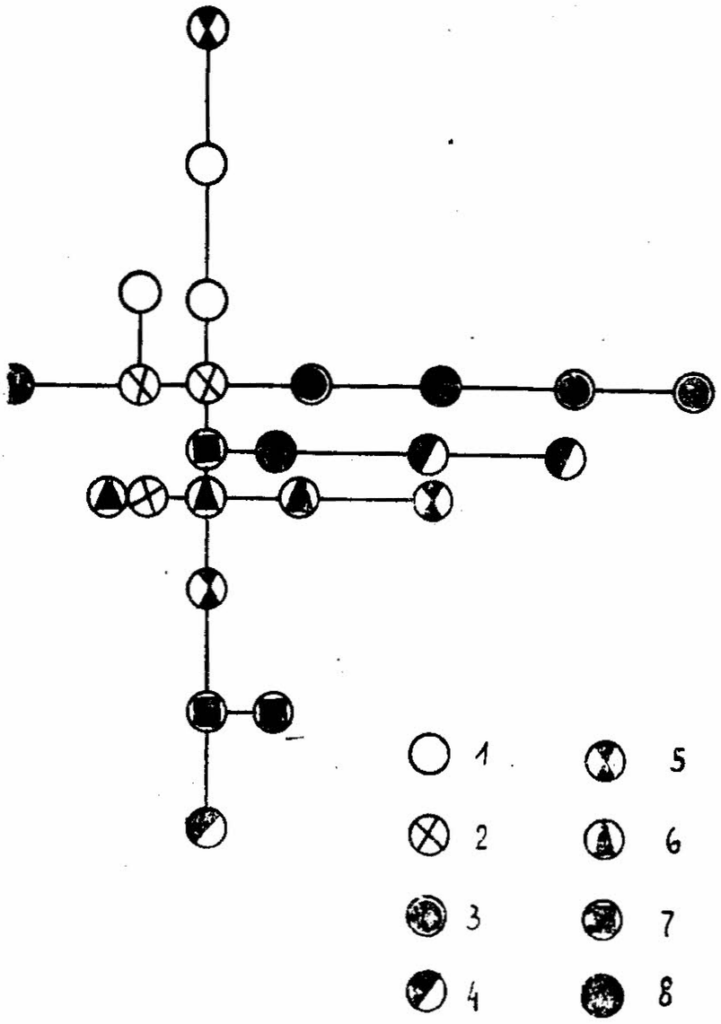
wykonane na podstawie cech wyeliminowanych? Wyczerpującą odpowieź na to pytanie prezentuje ryc. 4, na której przedstawiono dendryt 24 rojów, charakteryzowanych czterema najmniej ważnymi cechami: szerokością IV sternitu, długością lusterka woskowego, szerokością skrzydła i liczbą haczyków. Odrębności rasowe pszczół prawie nie są tu widoczne, co utwierdza nas w przekonaniu, że dobór cech ważnych (ryc. 3) został dokonany trafnie.
DYSKUSJA
Duża liczba cech stosowanych w opisach morfologicznych pszczół prowadzi niewątpliwie do lepszego poznania różnych form tego gatunku. Dla pszczelarza-hodowcy, którego interesuje przede wszystkim użytkowość pszczół, charakterystyka cech morfologicznych odgrywa tylko rolę pomocniczą w jego pracy. Cechy te służą przede wszystkim do rozpoznania ras, grup czy linii hodowlanych. Z tego względu istnieje słuszna tendencja do zmniejszania ich liczby w charakteryzowaniu materiału zarodowego. Jest to tym bardziej uzasadnione, że oznaczanie niektórych cech morfologicznych pochłania dużo czasu i pracy. Cechy, do których
strona 48ograniczy swoje badania hodowca, powinny jednak spełniać stawiane im wymagania. Powinny więc być charakterystyczne dla danej rasy czy grupy pszczół i odróżniać ją od innych. Wydaje się, że ocena i wybór cech pod tym względem zostały w tej pracy dokonane trafnie. W przekonaniu tym utwierdzają nas także badania innych autorów z zakresu morfologii pszczół, przede wszystkim Bornusa i innych (1966), Droege (1960), Goetze (1959, 1960).
W badaniach morfologicznych pewne znaczenie mogą mieć „cechy przeciętne”, reprezentatywne dla danego zespołu cech. Ocena populacji na podstawie cechy przeciętnej jest najbliższa ocenie dokonanej na podstwie całego zespołu cech. Może więc zupełnie dobrze służyć do wstępnej charakterystyki morfologicznej populacji. W naszych badaniach taką cechą przeciętną jest powierzchnia lusterka woskowego.
W ocenie morfologicznej psźczół powierzchnia lusterka woskowego wykazuje również silne związki korelacyjne z szerokością lusterka. Charakterystyka badanych populacji na podstawie jednej lub drugiej z tych cech byłaby zatem bardzo podobna. Bez wyraźnego uszczerbku w opisie morfologicznym pszczół można więc posługiwać się szerokością lusterka zamiast pracochłonną w obliczaniu jego powierzchnią.
Wśród innych par cech istnienie większej korelacji zarysowuje się wyraźniej między sumą szerokości III i IV tergitu odwłokowego (wielkość pszczoły) a długością skrzydła. O tej zależności wspomina również Goetze (1964).
WNIOSKI
Nie wszystkie z 10 badanych cech morfologicznych przedstawiają jednakowe znaczenie dla systematyki w obrębie gatunku pszczoła. W kolejności od największej do najmniejszej przydatności układają się one następująco: długość języczka, indeks kubitalny, szerokość lusterka woskowego, długość skrzydła przedniego, suma szerokości III i IV tergitu odwłokowego, powierzchnia lusterka woskowego, szerokość skrzydła przedniego, szerokość IV sternitu, długość lusterka woskowego, liczba haczyków na tylnym skrzydle.
Ze względu na dużą przydatność i łatwy sposób oznaczania w doborze cech dla oceny pszczół zarodowych linii hodowlanych powinny znaleźć się przede wszystkim: długość języczka, suma szerokości III i IV tergitu odwłokowego, indeks kubitalny.
Dla całego zespołu badanych cech powierzchnia lusterka woskowego jest cechą najbardziej reprezentatywną. Nadaje się ona dobrze do charakteryzowania większych populacji pszczół, o których chcemy uzyskać wstępne informacje pod względem morfologicznym.
strona 49Pomiędzy szerokością lusterka woskowego i jego powierzchnią istnieje silny związek korelacyjny. W doborze zespołu cech do badań morfologicznych można zatem uwzględnić tylko jedną z nich, mianowicie szerokość lusterka woskowego (łatwiejsze oznaczanie).
LITERATURA
Ałpatow W. W. (1930) — Zur Erkennung der Veränderungen der Bieneneigenschaften im europäischen Teil der Sovjetunion und des Kaukasus. Streszczenie w Archiw f. Bienen., (1931), 13: 380—382
Ałpatow W. W. (1948) — Porody miedonosnoj pczeły. Moskwa
Bährmann R. (1965) — Merkmalsstudien und infraspezifische Verwandtschaftsverhältnisse bei Apis mellifica L.Z. f. Bienenforsch., 8 (2): 17—47
Bornus L., Demianowicz A. i Gromisz M. (1966) — Morfometryczne badania krajowej pszczoły miodnej (Apis mellifica L.) Pszczeln. Zesz. Nauk. 10 (1—4): 1—46
Droege G. (1960) — Zur Frage der Unterscheidbarkeit der Carnica—Stämme. Archiv f. Gefl. u. Kleintierk., 9 (3): 182—202
el- Banby M. A. (1965) — The inheritance of some qualitative characters in the carnio- egyption honey- bee hybrid. XX I. B.J.C., Bucharest
Farcas A. (1939) — Variationsstatistische Untersuchungen des Bienenrüssels. Archiv f. Bienen., 21 (6): 216—224
Florek K., Łukaszewicz J., Perkal J., Steinhaus H. i Zubrzycki S. (1951) — Taksonomia Wrocławska. Przegląd Antropologiczny, 17: 193—211
Goetze G. (1930) — Variabilitäts- und Züchtungsstudien an der Honigbiene mit besonderer Berücksichtigung der Langrüsseligkeit. Archiv f. Bienen., 11: 185—225
Goetze G. (1940) — Die beste Biene. Leipzig, Liedloft, Loth u. Michaelis
Goetze G. (1959) — Die Bedeutung des Flügelgeäders für die züchterische Beurtelung der Honigbiene. Z. f. Bienenforsch., 4 (7): 141—148
Goetze G. (1959, 1960) — Welche Merkmale eignen sich zur Rassenbeurteilung im Körverfahren? Südwestdtsch. Imkerztg., 11: 229—230, 268—269, 300—301; 12: 10—11, 111—112, 165—168
Goetze G. (1964) — Die Honigbiene in natürlicher und künstlicher Zuchtauslese. Hamburg u. Berlin, Paul Parey
Kolesnikow A. N. (1960) — O niekotorych osobiennostiach eksteriera i interiera raboczych pczeł. Tr. obszcz. jestisp., 120 (16) : 271—321
Komaroff P. M., Alpatov W. W. (1934) — Beiträge zur Kenntnis der Variabilität der Honigbiene. Archiv f. Bienen., 15: 11—20
Louis J. (1963) — Étude de la translation du point discoidal (Discoidalverschiebung) de l’áile de l’ábeille (A. mellifica L.) Ann. Abeille 6 (4): 303—320
Lukoschus F. (1954) — Beobachtungen zur Entwicklung und zum Bau der Bienenzunge. Z. f. Bienenforsch., 2 (8): 219—223
Michailoff A. S. (1931) — Weitere Untersuchungen über die phänotypische Variabilität der Honigbiene (Apis mellifica L.) in Verbindung mit der Frage der Bienenrassen. Archiv f. Bienen., 12: 315—329
Perkal J. (1953) — Taksonomia wrocławska. Przegląd Antropologiczny, 19: 82—105
Ruttner F. (1965) — Versuch einer Charakterisierung der Carnica—Biene nach ihrem Flügelgeäder. Védecké práce Vyzkumného ústavu vćelaŕského v Dole, 4: 165—172
strona 50Sekczijew A. J. (1965) — Charakteristika morfobiołogiczeskich i choziajstwiennopoleznych priznakow prostych i słożonych pomiesiej pczeł. XX I.M.K.P. Bucharest
Skorikow A. S. (1929) — K poznaniu porod kawkaskich pczeł (Gen. Apis). Izw. Otd. Prikł. Entomoł., 4 (1): 1—60
Weiss K. (1955) — Messungen von Rüssellänge und Reichtiefe bei N-und K — Bienen. Z. f. Bienenforsch., 3 (3): 53—56
ПРИГОДНОСТЬ НЕКОТОРЫХ МОРФОЛОГИЧЕСКИХ ПРИЗНАКОВ В СИСТЕМАТИКЕ ВНУТРИ ВИДА APIS MELLIFICA L.
Михал Громиш
Математическое определение сходства 10 морфологических признаков у 24 пчелосемей показало, что наиболее пригодными признаками для характеристики пчелиных популяций есть: 1) длина хоботка, 2) кубитальный индекс, 3) длина воскового зеркальца, 4) длина переднего крыла и 5) сумма ширины III и IV тергита. Наиболее репрезентативным признаком в исследуемой совокупности оказалась поверхность воскового зеркальца, которая в свою очередь обнаруживает высокую корреляцию с его длиной. За наименее полезные признаки для биометрии пчел признано: 1) число зацепок на заднем крыле, 2) ширина воскового зеркальца и 3) ширина IV стернита.
USABILITY OF SOME MORPHOLOGICAL FEATURES IN SYSTEMATIC INSIDE THE SPECIES OF APIS MELLIFICA L.
Michał Gromisz
Mathematic description of analogy of 10 morphological features among 24 bee colonies shown that for the evaluation of bees the most usable are:
- the length of tongue
- cubital index
- the length of wax mirror
- the length of front wing
- sum of width of the III and IV tergites of abdomen.
The most characteristic feature is the surface of wax mirror, with which very strong is correlated the length of the wax mirror. The smallest usability in biometric work were: 1) number of hooks on the hind wing, 2) the width of wax plate and 3) the width of the IV sternite of abdomen.
Errata — błędy druku znalezione podczas digitalizacji
- s. 37: „grúp” → grup
- s. 38, 2×: „Bandy” → Banby
- s. 41: „Następuję” → Następuje
- s. 42, ryc. 2, 2×: „lenght” → length
- s. 45: „4695″ → 4,695
- s. 45, tab. 3: „vaule” → value
- s. 47: „odpowieź” → odpowiedź
- s. 48: „podstwie” → podstawie
- s. 48: „psźczół” → pszczół
- s. 49: „Archiw” → Archiv
- s. 49: „egyption” → egyptian
- s. 49: „Beurtelung” → Beurteilung
- s. 49: „l’áile” → l’aile
- s. 49: „l’ábeille” → l’abeille
- s. 49: „Védecké” → Vědecké
- s. 49: „Vyzkumného” → Výzkumného
- s. 49: „vćelaŕského” → včelařského