

ZMIENNOŚĆ POTOMSTWA W KOLEJNYCH POKOLENIACH MATEK UNASIENIANYCH MIESZANYM NASIENIEM OD WIELU TRUTNI NA PRZYKŁADZIE CECH MORFOLOGICZNYCH
tekst: Wojciech Skowronek, Jerzy Szymula
Pszczelnicze Zeszyty Naukowe, Rok XLI, 1997 — Wojciech Skowronek, Jerzy Szymula
strona 101PSZCZELNICZE ZESZYTY NAUKOWE Rok XLI 1997
Wojciech Skowronek, Jerzy Szymula
Instytut Sadownictwa i Kwiaciarstwa, Oddział Pszczelnictwa, ul. Kazimierska 2, 24-100 Puławy
Streszczenie
Z puli 23 matek rasy kraińskiej pochodzących z 9 różnych linii tej rasy rozpoczęto hodowlę prowadzoną w dwóch grupach. Grupy reprodukcyjnej, którą corocznie wyprowadzano od matek otrzymujących najwyższą ocenę za wartość użytkową oraz grupy zachowawczej wyprowadzanej od losowo wybranych matek. Córki wybranych matek unasieniano nasieniem mieszanym pobieranym od trutni ze wszystkich rodzin w grupie. Oceniono kształtowanie się wartości i zmienności trzech cech morfologicznych w kolejnych pokoleniach selekcjonowanej i nieselekcjonowanej populacji. Średnie wartości wszystkich badanych cech zmieniały się. Największe zmiany obserwowano w długości języczka, najmniejsze w szerokości IV tergitu, wszystkie jednak mieściły się w modelu rasowym przyjętym dla pszczół rasy kraińskiej. Zmienność wartości cech określana współczynnikiem zmienności (v) wewnątrz rodzin miała tendencję wzrostową, a między rodzinami w grupie malejącą. Powodowało to zwiększenie udziału zmienności wewnątrz rodzin w stosunku do zmienności ogólnej. Świadczy to o korzystnym wpływie unasieniania matek nasieniem mieszanym pochodzącym od wielu trutni na wyrównywanie się rodzin w grupie i zachowanie dużej zmienności pszczół w rodzinach.
Słowa kluczowe: zmienność, cechy morfologiczne, sztuczne unasienianie, nasienie mieszane
WPROWADZENIE
Zmienność jest miernikiem ustabilizowania danej cechy w populacji. W konsekwencji ustalenie zmienności pokoleń potomnych daje możliwość oceny skuteczności prowadzenia zabiegów hodowlanych.
W pszczelarstwie do oceny zmienności wykorzystywane są wybrane cechy morfologiczne. Pomiary wykonane na kilkudziesięciu osobnikach w rodzinie pozwalają na ocenę zmienności w rodzinie, a średnie wartości z rodzin dają szansę oceny zmienności rodzin w pasiece czy określonej populacji.
Wartość badanych w doświadczeniu cech morfologicznych: długość języczka, szerokość IV tergitu i indeks kubitalny uwarunkowana jest wieloma parami genów. Zatem zmienność tych cech ma charakter ciągły i występuje
strona 102duża liczba fenotypów ukształtowanych nie tylko przez genotyp ale i środowisko.
Cechy morfologiczne są wykorzystywane jako miernik przynależności pszczół do danej populacji (Gromisz 1967, Bornus, Gromisz 1969, Gromisz, Bornus 1971). Gromisz (1981) w prowadzonych przez siebie badaniach stwierdza, że wartości cech morfologicznych w określonych populacjach wykazują zmienność w stałych, charakterystycznych dla siebie granicach. Długotrwała izolacja powoduje tworzenie odrębnych populacji charakteryzujących się właściwymi dla siebie wartościami cech (Bornus i inni 1981). W przypadku selekcji stabilizującej zmienność maleje z pokolenia na pokolenie.U pszczół jednym z mechanizmów broniących przed tym zjawiskiem jest losowy dobór trutni w czasie lotów godowych. Stwierdzono (Kepena, Flak 1980), że wraz z wzrastającą liczbą trutni unasieniających matkę wzrasta zmienność wśród pszczół-robotnic, co daje potencjalną możliwość odchowania córek-matek o różnych genotypach. Zapewnia to utrzymywanie stałego stopnia heterozygotyczności z pokolenia na pokolenie.
Metoda inseminacji nasieniem mieszanym pochodzącym od wielu trutni (Skowronek, Kruk, Loc 1995) jest nowym sposobem prowadzenia doboru, zatem konieczne jest ustalenie wpływu tej metody na kształtowanie się wartości cech w pokoleniach potomnych. Celem niniejszej pracy jest ocena zmienności cech morfologicznych w kolejnych pokoleniach selekcjonowanej i nieselekcjonowanej populacji z zastosowaniem tego sposobu doboru.
MATERIAŁ I METODA
W 1993 roku sprowadzono do pasieki Zakładu Hodowli Oddziału Pszczelnictwa ISK 54 matki rasy kraińskiej, reprezentujące 9 różnych linii hodowlanych. Po stratach przy poddawaniu i zimowli z puli 23 matek w roku 1994 utworzono populację wyjściową będącą pokoleniem rodzicielskim. Po ocenie prowadzonej od początku sezonu do końca czerwca wytypowano matki przeznaczone do reprodukcji i z potomstwa tych matek utworzono grupę selekcyjną i zachowawczą pokolenia F1. Matki grupy selekcyjnej pochodziły od 6 rodzin, które otrzymały najwyższą ocenę za wartość użytkową, grupa zachowawcza odchowana została z 5 losowo wybranych rodzin. Wszystkie matki unasieniano sztucznie nasieniem mieszanym pochodzącym w równych proporcjach objętościowych od trutni ze wszystkich rodzin.
W latach 1995-96, postępując według tych samych zasad wychowano matki pokoleń F2 i F3, grupę selekcyjną od najlepszych rodzin w grupie, a grupę zachowawczą od losowo wybieranych rodzin tej grupy. Wszystkie matki unasieniane były nasieniem mieszanym od trutni ze wszystkich rodzin w grupach. Schemat prowadzenia selekcji przedstawia ryc. 1.
strona 103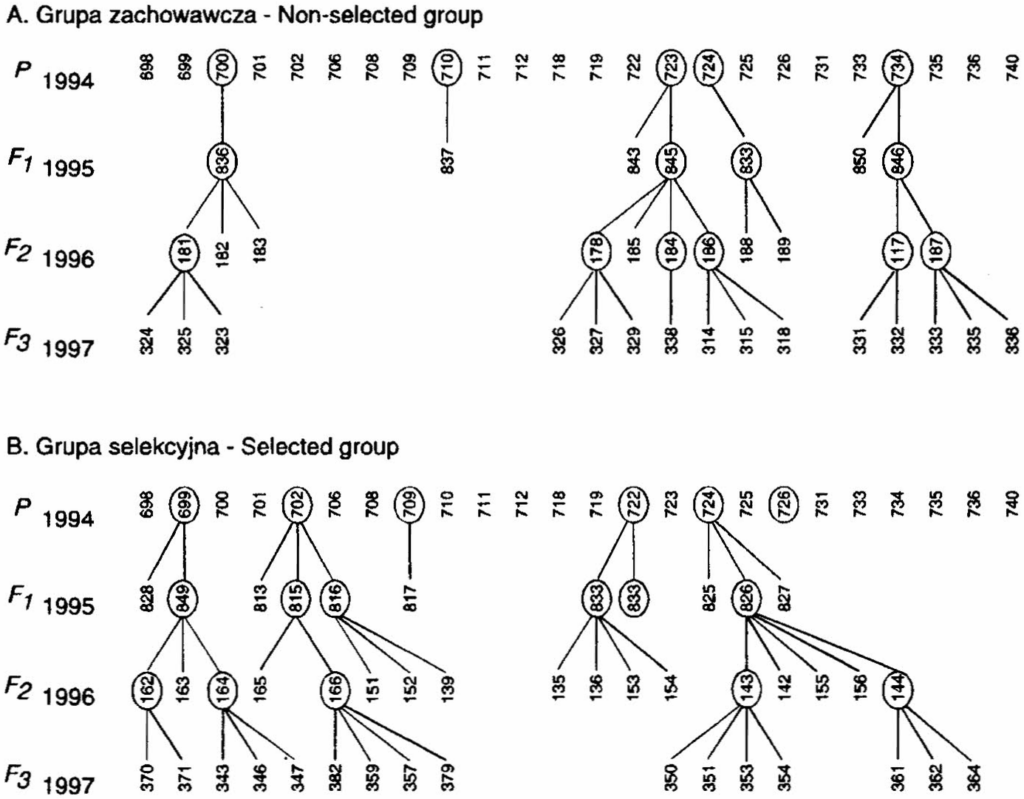
W każdym sezonie pobierano i utrwalano próbki pszczół pochodzące ze wszystkich rodzin w grupach. U pszczół tych przeprowadzano pomiary 3 cech morfologicznych: długości języczka, szerokości IV tergitu i indeksu kubitalnego. Pomiary prowadzono zgodnie z metodą przyjętą w Oddziale Pszczelnictwa ISK (Bornus, Demianowicz, Gromisz 1966). Opracowań matematyczno-statystycznych dokonano na podstawie wyników pomiaru 30 pszczół robotnic pochodzących od jednej matki. Porównano średnie wartości cech w grupach w kolejnych pokoleniach oraz oceniono zgodność średnich wartości w rodzinach z modelem rasowym obliczając wskaźniki wartości znormalizowanej z (Gromisz 1981). Jako miarę zmienności cech przyjęto współczynniki zmienności v (Ruszczyc 1970). Zmienność w rodzinie oceniono na podstawie wyników pomiaru wszystkich pszczół, do oceny zmienności w grupie posłużono się średnimi wartościami cech w rodzinie.
WYNIKI I DYSKUSJA
Średnie arytmetyczne cech poszczególnych populacji różniły się między sobą (tab.1). Długość języczka w dwóch grupach: selekcyjnej i zachowawczej w obrębie pokolenia wahała się w tych samych granicach. W pokoleniach F1
strona 104i F2 wartość cechy rosła, zmalała natomiast w pokoleniu F3 do wartości zbliżonych do pokolenia P. Wartości dwóch pozostałych badanych cech na przemian malały i rosły, zachowując się podobnie w grupie selekcyjnej i zachowawczej.
Tab. 1 Kształtowanie się średnich wartości cech morfologicznych w kolejnych pokoleniach grup: selekcjonowanej i zachowawczej. Distribution of mean morphological features in the succeeding generations of selected and non-selected groups.
| Pokolenie Generations | Grupa selekcyjna – Selected group: n | Grupa selekcyjna: X̄ | Grupa selekcyjna: S | Grupa zachowawcza Non-selected group: n | Grupa zachowawcza: X̄ | Grupa zachowawcza: S |
|---|---|---|---|---|---|---|
| Długość języczka [mm] – Length of the tongue [mm] | ||||||
| P | 23 | 6.454 | 0.1223 | 23 | 6.454 | 0.122 |
| F1 | 13 | 6.521 | 0.0754 | 13 | 6.523 | 0.090 |
| F2 | 15 | 6.585 | 0.0821 | 6 | 6.575 | 0.046 |
| F3 | 16 | 6.495 | 0.0662 | 23 | 6.383 | 0.074 |
| Szerokość IV tergitu [mm] – Width of tergit IV [mm] | ||||||
| P | 23 | 2.301 | 0.0401 | 23 | 2.301 | 0.040 |
| F1 | 13 | 2.272 | 0.0312 | 13 | 2.263 | 0.036 |
| F2 | 15 | 2.301 | 0.0192 | 6 | 2.296 | 0.045 |
| F3 | 16 | 2.275 | 0.0332 | 23 | 2.275 | 0.033 |
| Indeks kubitalny – Cubital index | ||||||
| P | 23 | 45.9 | 4.09 | 23 | 45.9 | 4.09 |
| F1 | 13 | 43.8 | 4.72 | 13 | 41.3 | 2.68 |
| F2 | 15 | 47.9 | 4.74 | 6 | 45.1 | 1.93 |
| F3 | 16 | 45.0 | 3.32 | 23 | 42.9 | 2.00 |
n – liczba rodzin – number of colonies
Ocena średnich wartości cech pod względem zgodności z modelem rasowym (tab.2) dała w przypadku długości języczka i szerokości IV tergitu wskaźnik wartości znormalizowanej (z) mieszczący się w przedziale od -3 do +3, co zgodnie z przyjętą zasadą (Gromisz 1981) pozwala zakwalifikować te rodziny, jako pszczoły rasy kraińskiej. Odmiennie kształtowały się średnie wartości indeksu kubitalnego. Niskie wartości tej cechy spowodowały, że wyliczony współczynnik w większości rodzin miał wartości ujemne, a w wielu przypadkach przekraczał poziom -3,0. Wskazuje to, że wykorzystany w doświadczeniu materiał hodowlany wyprowadzony był od matek pochodzących z importu. Model rasowy w cytowanej wyżej pracy opracowany został dla rodzimych pszczół kraińskich (linia Beskidka), które różniły się od typowych krainek występujących w południowo-wschodniej Europie wyższą wartością indeksu kubitalnego.
strona 105Tab.2 Kształtowanie się wskaźnika wartości znormalizowanej (z) modelu rasowego w kolejnych pokoleniach grup: selekcjonowanej i zachowawczej Distribution of similarity coefficient (z) with race model in succeeding generations of selected and non-selected groups.
| Pokolenie Generation | Długość języczka Length of the tongue: Gr. selekcyjna selected groups | Długość języczka: Gr.zachowawcza non-selected groups | Szerokość IV tergitu Width of tergit IV: Gr. selekcyjna selected groups | Szerokość IV tergitu: Gr.zachowawcza non-selected groups | Indeks kubitalny Cubital index: Gr. selekcyjna selected groups | Indeks kubitalny: Gr.zachowawcza non-selected groups |
|---|---|---|---|---|---|---|
| P | -1.9 – 2.2 | -1.9 – 2.2 | -1.9 – 2.0 | -1.9 – 2.0 | -3.6 – 0.3 | -3.4 – 0.3 |
| F1 | -0.4 – 0.7 | -1.9 – 2.1 | -1.8 – 0.9 | -2.0 – 0.8 | -4.1 – [-0.4] | -4.1 – [-0.4] |
| F2 | 0.5 – 2.3 | 0.7 – 2.1 | -1.0 – 0.6 | -0.8 – 1.5 | -3.7 – 1.3 | -2.8 – [-0.4] |
| F3 | -0.4 – 1.5 | -2.6 – 0.2 | -1.6 – 1.8 | -2.0 – 1.7 | -3.7 – 0.2 | -2.8 – [-1.3] |
W pokoleniu wyjściowym (P) zmienność wszystkich badanych trzech cech morfologicznych oceniona współczynnikiem zmienności (v) była większa w rodzinach niż między rodzinami (tab.3). Oznacza to, że wyjściowy materiał hodowlany mimo, iż pochodził z różnych źródeł był w miarę jednorodny. Zmienność w długości języczka i szerokości IV tergitu były podobne natomiast zdecydowanie wyższa zmienność występowała w wartości indeksu kubitalnego .
Tab 3 Wartości współczynnika zmienności wewnątrz i między rodzinami w kolejnych pokoleniach grup: selekcjonowanej i zachowawczej. Coefficient of variation values in colonies and among the colonies group in succeeding generation.
| Cecha Feature | Grupa Group | Zmienność Variability | Pokolenia – generation: P | Pokolenia: F1 | Pokolenia: F2 | Pokolenia: F3 |
|---|---|---|---|---|---|---|
| Długość języczka Length of the tongue | selekcyjna selected | między among | 1.89 | 1.50 | 1.24 | 1.01 |
| Długość języczka Length of the tongue | selekcyjna selected | wewnątrz inside | 2.01 | 2.41 | 2.27 | 2.33 |
| Długość języczka Length of the tongue | zachowawcza non-selected | między among | 1.89 | 1.37 | 0.69 | 1.59 |
| Długość języczka Length of the tongue | zachowawcza non-selected | wewnątrz inside | 2.01 | 2.19 | 2.19 | 2.23 |
| Indeks kubitalny Cubital index | selekcyjna selected | między among | 8.9 | 10.7 | 9.8 | 7.3 |
| Indeks kubitalny Cubital index | selekcyjna selected | wewnątrz inside | 13.0 | 15.4 | 15.9 | 16.9 |
| Indeks kubitalny Cubital index | zachowawcza non-selected | między among | 8.9 | 6.4 | 4.2 | 4.6 |
| Indeks kubitalny Cubital index | zachowawcza non-selected | wewnątrz inside | 13.0 | 15.2 | 13.0 | 14.7 |
| Szerokość IV tergitu With of tergit IV | selekcyjna selected | między among | 1.73 | 1.59 | 1.95 | 1.45 |
| Szerokość IV tergitu With of tergit IV | selekcyjna selected | wewnątrz inside | 2.14 | 2.06 | 2.22 | 2.87 |
| Szerokość IV tergitu With of tergit IV | zachowawcza non-selected | między among | 1.73 | 1.59 | 1.95 | 1.45 |
| Szerokość IV tergitu With of tergit IV | zachowawcza non-selected | wewnątrz inside | 2.14 | 2.33 | 2.43 | 2.51 |
W kolejnych pokoleniach zmienność badanych cech ulegała zmianom. Zmienność między rodzinami w grupach, mimo wahań w poszczególnych pokoleniach wykazywała tendencję malejącą i w rezultacie wartość współczynnika zmienności pokolenia wyjściowego (P) we wszystkich przypadkach przewyższała wartość współczynnika pokolena F3. Odmiennie kształtowała się
strona 106zmienność pszczół wewnątrz rodzin. Średni współczynnik zmienności wyliczony dla wszystkich rodzin w grupie, także z wahaniami w kolejnych pokoleniach wykazywał tendencję zwyżkową.
Malejąca zmienność między rodzinami w grupach w kolejnych pokoleniach przy rosnącej zmienności pszczół w rodzinach prowadziła do postępującego wzrostu udziału zmienności pszczół w rodzinie w stosunku do zmienności między rodzinami. Udział ten wyliczony ze średnich współczynników zmienności trzech badanych cech morfologicznych obrazuje wykres (ryc.2). Wskazuje on, że zastosowany sposób doboru polegający na unasienianiu matek nasieniem mieszanym pobranym od trutni ze wszystkich rodzin w grupie prowadzi do obniżenia zmienności między rodzinami przy równoczesnym wzroście zmienności pszczół w rodzinie.
Nie zaobserwowano różnic w kształtowaniu się zmienności między grupami selekcyjną i zachowawczą. Jest to zgodne z oczekiwaniem, gdyż nie zdołano zrealizować założenia, aby reprodukcję kolejnych pokoleń grupy zachowawczej wyprowadzać od większej liczby matek niż grupy selekcyjnej. Na skutek niespodziewanych strat matek oraz niepowodzeń w wychowie do reprodukcji w obydwu grupach wykorzystywano podobną liczbę matek (ryc.1). Podobne kształtowanie się wartości cech i zmienności w obydwu grupach, we wszystkich pokoleniach pokazuje, że prowadzona selekcja nie wpływa na kształtowanie się cech, które nie są przedmiotem selekcji.
Należy przyjąć, że matki włączone do pokolenia rodzicielskiego były pod względem cech morfologicznych w dużym stopniu homozygotyczne z powodu wcześniejszej, długotrwałej selekcji kierunkowej .W związku z tym trudno jest ustalić wpływ mechanizmu rozszczepienia cech na zmienność w poszczególnych pokoleniach. Również mechanizmy dziedziczenia poszczególnych cech morfologicznych oraz wpływ środowiska nie są dotychczas dostatecznie zbadane .
Dodatkowym elementem wpływającym na zmienność jest wahanie się wartości współczynnika inbredu, przy czym metoda oszacowania wpływu tego elementu przy zastosowaniu inseminacji nasieniem mieszanym nie jest dotychczas opracowana.
strona 107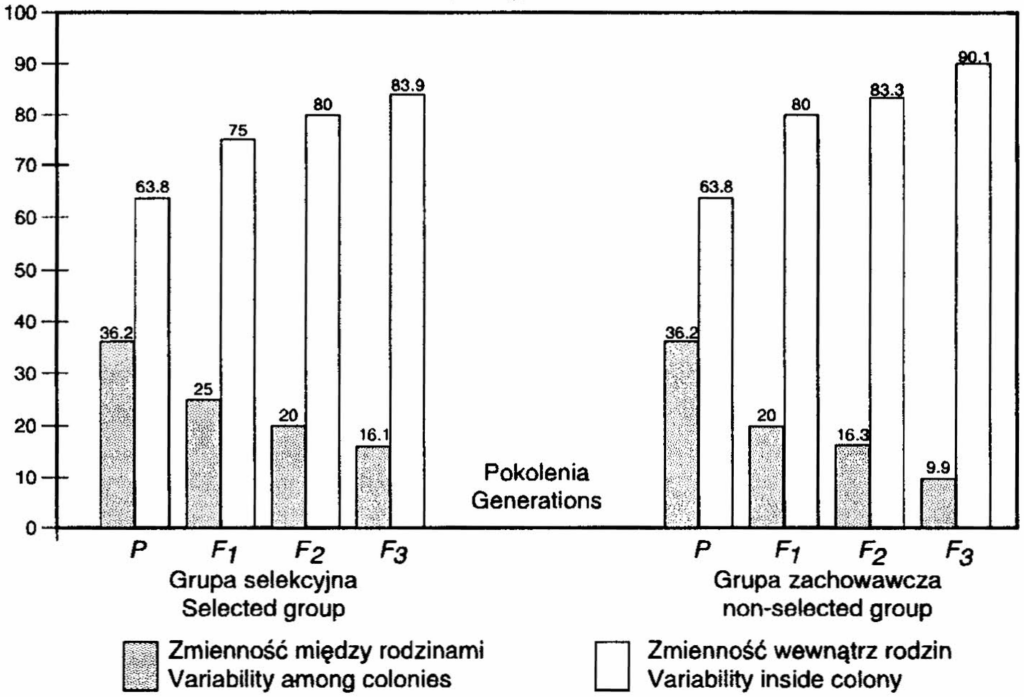
WNIOSKI
- Wartości cech morfologicznych poszczególnych populacji różniły się między sobą, lecz mieściły się w modelu morfologiczno-matematycznym przyjętym dla pszczoły kraińskiej.
- Bezwzględna zmienność między rodzinami w kolejnych pokoleniach wykazywała tendencję malejącą.
- Stwierdzono wzrost zmienności badanych cech u pszczół robotnic w rodzinach w kolejnych pokoleniach.
- Udział zmienności wewnątrz rodzin w stosunku do zmienności ogólnej wykazywał tendencję rosnącą.
- Nie stwierdzono istotnych różnic w rozkladach zmienności między grupami: selekcyjną a zachowawczą.
LITERATURA
Bornus L.,Demianowicz A., Gromisz M.(1966)- Morfometryczne badania krajowej pszczoły miodnej. Pszczeln. Zesz. Nauk., 10(1-4):1-46
Bornus L.,Gromisz M.(1969)-Matematyczne modele populacji pszczół różnych ras. *Pszczeln. Zesz. Nauk.,*12(1-3):73-83
Bornus L.,inni(1981)- Morfologiczna ocena pszczół województwa szczecińskiego. *Pszczeln. Zesz. Nauk.,*25:67-84
Gromisz M.(1967)- Przydatność niektórych cech morfologicznych w systematyce wewnątrz gatunku Apis mellifica L. Pszczeln. Zesz. Nauk., 11(1-3):37-49
Gromisz M.,(1981)- Morfologiczna ocena populacji rojów w pasiekach zarodowych. Pszczeln. Zesz. Nauk., 25:51-64
Gromisz M., Bornus.(1971)- Morfologiczno-matematyczne modele populacji pszczoły krajowej. Pszczeln. Zesz. Nauk. 15(1-2):1-14
Kepena L.,Flak P.(1980)- Relationship between number of drones mating (with the queen) and the morphological charakteristics of the progenyin honeybee colnies. Polnohospodarstwo 26(6):566-573(1981)
Ruszczyc Z. (1970)- Metodyka doświadczeń zootechnicznych. *Państwowe Wydawnictwo Rolnicze i Leśne.*Warszawa 1970
Skowronek W.,Kruk C.,Loc K.(1995)- The insemination of honeybees with diluted semen. Apidolgie,26:487-493
PROGENY VARIATIONS BASED ON MORPHOLOGICAL TRAITS IN SUCCEEDING GENERATIONS OF QUEENS INSEMINATED WITH MIXED SEMEN FROM SEVERAL DRONES
Wojciech Skowronek and Jerzy Szymula
Apiary Division, Institute of Pomology and Floriculture, 24-100 Puławy, Kazimierska 2, Poland.
Summary
Twenty-three Carniolan queens from 9 different breeding lines of the race were used for raising in two groups: a reproductive group comprising bees sampled yearly from queens regarded as the most profitable, and a conservative group comprising bees sampled randomly from selected queens. The queen daughters of the selected queens were inseminated with the semen collected from drones from all colonies in the group. The values and variability of three morphological features in succeeding generations of selected and non-selected populations were evaluated.
Mean values of the 3 examined altered. The length of the tongue revealed the most substantial variability whereas the width of tergite IV did not vary markedly. However, all the values can be considered normal for the Carniolan bee. Variability of the values expressed as the coefficient of variation (v) in colonies increased whereas variability among colonies the in a group decreased. Consequently, the rate of variability in colonies to that among colonies increased. Such relation indicated a beneficial effect of the insemination of bee-queens with mixed semen from several drones on equalization of colonies in a group and conservation of high variability of bees in colonies.
Keywords: variability, morphological features, instrumental insemination, mixed semen.
Errata — błędy druku znalezione podczas digitalizacji
- s. 105: „pokolena” → pokolenia
- s. 105, tab. 3: „With of tergit IV” → Width of tergit IV
- s. 107: „rozkladach” → rozkładach
- s. 107, ryc. 2, 2×: „freatures” → features
- s. 107, ryc. 2: „varibility” → variability
- s. 108, piśmiennictwo: „Bornus.(1971)” → Bornus L. (1971)
- s. 108, piśmiennictwo: „charakteristics” → characteristics
- s. 108, piśmiennictwo: „progenyin” → progeny in
- s. 108, piśmiennictwo: „colnies” → colonies
- s. 108, piśmiennictwo: „Apidolgie” → Apidologie