

ZMIENNOŚĆ DŁUGOŚCI JĘZYCZKA U PSZCZOŁY KRAJOWEJ
tekst: Michał Gromisz
Pszczelnicze Zeszyty Naukowe, Rok V, 1961 — Michał Gromisz
strona 1PSZCZELNICZE ZESZYTY NAUKOWE ROK V. NR 1 MAJ 1961
Michał Gromisz
Zakład Pszczelnictwa IS
Praca przeprowadzona pod kierunkiem prof. dr Władysława Hermana i doc. Jana Wąsowicza — Katedra Ogólnej Hodowli Zwierząt SGGW
WSTĘP
Rasy pszczoły miodnej odróżniamy na podstawie cech morfologicznych, biologicznych i psychicznych. Szczególną rolę w określaniu ras odgrywają cechy morfologiczne, ze względu na możność scharakteryzowania ich za pomocą ścisłych pomiarów biometrycznych i na stosunkowo ich niewielką zmienność w obrębie danej rasy.
W wielu wypadkach wartość cech morfologicznych, określana biometrycznie, wskazuje bezpośrednio na możliwości i zdolności produkcyjne pszczół. I tak szerokość tergitów określa w pewnym stopniu pojemność wola miodowego, powierzchnia skrzydełek i liczba haczyków mówi o sprawności w locie, długość języczka — o możliwości wykorzystania pożytków z roślin o budowie kwiatu z głęboko ukrytym nektarem.
Ze wszystkich określonych cech morfologicznych pszczoły najwięcej uwagi poświęcono języczkowi. Zadecydowały o tym względy agrotechniczne. W miarę poszerzania w płodozmianie upraw motylkowych, zwłaszcza koniczyny czerwonej, produkcja nasion tych roślin, uwarunkowana w pierwszym rzędzie stopniem zapylenia kwiatów, urosła do poważnego problemu. Do owadów zapylających koniczynę czerwoną należą również pszczoły, przede wszystkim z ras o długich języczkach. Obecnie niemal we wszystkich hodowlach selekcyjnych pszczół określa się, obok innych cech, długość języczka materiału zarodowego. W wielu też krajach (Dania, Niemcy) prowadzi się selekcję w kierunku wydłużenia języczka.
Trudno dziś prowadzić hodowlę pszczół w oparciu o naukowe podstawy posługując się tylko wskaźnikami produkcyjnymi, bez znajomości morfologii materiału hodowlanego. Dotyczy to też polityki hodowlanej w terenie: wytyczenia kierunku zmienności w ulepszaniu populacji, a także kontrolowania postępu hodowlanego. Dla rozpoczęcia prac tego rodzaju konieczna jest znajomość materiału wyjściowego, przede wszystkim jako obiektu tych prac. Ponadto scharakteryzowanie populacji, ukształtowanych w wyniku naturalnego oddziaływania lokalnych warunków i pierwotnego zasięgu terytorialnego ras, w wielu wypadkach pozwoli a przynajmniej ułatwi określenie i wytyczenie kierunku postępowania i sposobu realizacji prac hodowlanych.
Zakład Pszczelnictwa Instytutu Sadownictwa przystąpił do określania biometrycznego populacji pszczół w Polsce, do tzw. inwentaryzacji pszczoły krajowej. Zmienność długości języczka, jako jednej z badanych cech morfologicznych, jest tematem niniejszej pracy.
strona 2PRZEGLĄD LITERATURY
Zagadnienie długości języczka u pszczół było już od dawna przedmiotem dyskusji literatury pszczelarskiej, w związku z przydatnością różnych ras do zapylania koniczyny czerwonej. Szczególnie interesowano się tym w Ameryce (Skorikow 1929a), ale badania nad długością języczka prowadzono tam nie metodycznie, często z zastosowaniem tylko glosometru i na małej ilości egzemplarzy (Alpatov i Tiunin 1925). Wykorzystywano je przede wszystkim dla celów reklamowych (Goetze 1930).
Studia nad długością języczka, jak i innych cech morfologicznych, podjęli w pierwszym rzędzie uczeni rosyjscy. Rosja stanowiła teren bardzo dogodny do tego rodzaju badań; duży zasięg terytorialny, zróżnicowanie geograficzne oraz nieznaczne wymieszanie populacji przedstawiało naturalny geograficzny układ ras (Goetze 1930, 1940). Jak podaje Alpatov i Tiunin (1925), Kożewnikow był pierwszym zoologiem, który do badań morfologicznych pszczół zastosował metody biometryczne. Opracował on technikę pomiarów i dla szeregu cech pomiary przeprowadził (w 1900 r.).
Zastosowanie matematycznej statystyki w opracowaniach biometrycznych datuje się od roku 1916, gdy to Chochłow (1916) pod kierunkiem Kożewnikowa dokonał pomiarów długości języczka i obliczył 16 wielkości statystyczno-matematycznych dla pszczół z Włoch, Kaukazu, Ukrainy, Krainy i z rejonu Orła. Zasługą jego pracy było ścisłe opracowanie statystyczne materiału, pozwalające na potwierdzenie istnienia różnic rasowych w długości języczka (Filipczenko za Alpatovem i Tiuninem 1925).
Alpatov (za Mikhailoffem 1926), następnie Mikhailoff (1926) zwrócili uwagę na prawidłowości w zmienności długości języczka w odniesieniu do położenia geograficznego. Mikhailoff wykazał, że długość języczka u pszczół zmniejszała się w miarę przesuwania się z południa na północ. Zależność między długością języczka a szerokością geograficzną na równinie wschodnio-europejskiej wskazywała na korelację liniową i wyrażała się wysokim współczynnikiem r = 0,9728. Przyczyny zróżnicowania się długości języczka u pszczół w zależności od położenia geograficznego dopatrywał się Mikhailoff (1926) w wyniku działania doboru naturalnego. Na południu, gdzie w przeciwieństwie do strefy północnej rośliny nektarują mniej intensywnie (Bonnier za Mikhailoffem 1926, Awietisjan 1958), miały większe szanse w przetrwaniu i rozprzestrzenianiu się pszczoły o długich języczkach.
Dotychczas nie rozstrzygnięto jeszcze natury zmienności geograficznej: czy jest ona genotypowa, czy też tylko modyfikacją fenotypową (Michajłow za Skorikowem 1929a, Bozina 1957). Według niektórych autorów (Chalifman 1957, Smaragdowa 1958 i inni) decydujący wpływ na kształtowanie się długości języczka wywierała rodzina wychowująca, a nie założenia dziedziczne. Wystąpienia podobnych zależności nie potwierdziły badania przeprowadzone przez Meyerhoff (1957). Bornus (1960b) stwierdza, że większe pszczoły mają zwykle dłuższe języczki, współczynnik korekcji wynosi 0,130.
Mikhailoff (1927a, b, c, 1932), Skorikow (1930a, b, c,), Goetze (1930, 1940), Grout (1937), Henriksen i Hammer (1957), Wołosewicz (1958) oraz inni przeprowadzili doświadczenia nad wpływem środowiska na kształtowanie się cech morfologicznych pszczół. Stwierdzono, że zmniejszenie się długości języczka następowało przede wszystkim w wyniku niedokarmiania larw, obniżenia optymalnej temperatury gniazda, zmniejszenia wymiarów komórek plastrów. Oddziaływanie tych czynników w różnych kombinacjach w przekroju roku wiąże się ze zmiennością
strona 3sezonową. Pokolenia pszczół w okresie letnim osiągają dłuższe języczki niż z czerwienia wiosennego (Mikhailoff 1927a, Bozina 1958).
Według Henriksena i Hammera (1957) roje opanowane Nosemą wykazywały zmniejszenie się długości języczka.
Za długość języczka w opracowaniach biometrycznych przyjęto sumę długości glossa, mentum i submentum (Skorikow 1929a, Ałpatow 1948). Często jednak natrafia się w literaturze z określeniem długości języczka bez submentum (Goetze 1930, 1940, Henriksen i Hammer 1957). Różnice między rasami występowały znacznie większe w długości glossa niż w długości mentum (Carlisle 1955).
Do pomiarów długości języczka w praktyce niekiedy znajduje zastosowanie glosometr (Goetze 1930). Za jego pomocą można jednak określić tylko maksymalne długości języczka u pszczół w roju. Długość języczka oznaczana glosometrem jest większa niż przy pomiarach anatomicznych.
Na wartość pomiarów długości anatomicznej języczka wpływa też sposób utrwalania materiału i przygotowania preparatów do pomiarów. Kożewnikow i Chochłow (za Alpatovem i Tiuninem 1925) usypiali pszczoły chloroformem. Następnie zabijali je przez zanurzenie we wrzącej wodzie, gotowali w ługu potasowym i wreszcie po przepłukaniu wodą, umieszczali w roztworach alkoholu, zmieniając stopniowo stężenie na coraz wyższe aż do 96%. W później ogłaszanych pracach nie spotyka się wzmianki o stosowaniu chloroformu; wyciągnięcie języczka przez pszczołę osiągano przez zanurzenie jej do wrzącej wody i gotowanie. Nie wszyscy (Skorikow 1929a) posługiwali się ługiem potasowym (lub sodowym); gotowanie w ługu zmniejsza długość języczka (Ałpatow, Gubin za Skorikowem 1929a). Utrwalanie alkoholem powodowało nieznaczne zmiany w wielkości członków szkieletu pszczoły. Dochodziły one według Goetzego (1930) do 1,77%. Wiek pszczół wziętych do badania nie wpływał na wielkość cech ilościowych; próbki pszczół, które wzięto zaraz po wygryzieniu się i w wieku 9 dni, nie wykazywały statystycznie żadnych różnic (Goetze 1930).
Alpatov (za Goetzem 1930) i Goetze (1930, 1940) wyróżnili typy pszczół na podstawie długości języczka i jej stosunku do wymiarów szkieletu pszczoły. Jakkolwiek kryteria podziału u obydwu tych autorów się różniły, obejmował on jednak poszczególne rasy pszczół, które związane były, przynajmniej pierwotnie, z pewnymi terytorialnymi zasięgami. Naturalne geograficzne rozmieszczenie ras zostało zakłócone migracją pszczół, spowodowaną działalnością gospodarczą człowieka. Dlatego napotyka się często na wielką różnorodność form występujących obok siebie (Alpatov i Tiunin 1925, Skorikow 1929a, b, Goetze 1930, 1940, Ałpatow 1948, Stefański 1957 i inni). O ile jednak przejawiało się to wyróżnienie w zachodniej Europie (Goetze 1930, Ałpatow 1948), to na Wschodzie, Kaukazie i Krymie różnice między rasami dość dobrze się zachowały (Alpatov i Tiunin 1925, Ałpatow 1948). Skorikow (1929a) i Demianowicz (1957) przypisują dużą wagę do długotrwałości i szybkości rozprzestrzeniania się w populacjach cech obcej rasy, wprowadzonych nawet przez pojedynczą matkę.
Pszczoły pochodzące z krzyżówek pomiędzy poszczególnymi typami (rasami) wypadały w badaniach różnie, w zależności od kombinacji. Wydaje się jednak, jak podaje Goetze (1930), że krzyżowanie Apis mellifica cypria Pollm. z Apis mellifica mellifica L. może spowodować wzrost długości języczka. Natomiast w wypadku krzyżówki Apis mellifica ligustica Spin. (pszczoła włoska) i Apis mellifica mellifica lechceni B.-R. (pszczoła wrzosowa), ta pierwsza nie wywierała widocznego trwałego wpływu. Inaczej przedstawiało się z pszczołą krainską (*Apis mellifica
strona 4carnica Pollm.); każdorazowo przeniesiona ona dalej, do środkowej Europy, rozprzestrzeniała w miejscowych populacjach długie języczki właściwe swojej rasie.
Dużą pomoc w określaniu stopnia czystości badanej biometrycznie populacji daje analiza zmienności. Przy krzyżówkach krańcowo różnych form krzywe zmienności przybierają postać dwuwierzchołkową. Przykłady takich krzywych podał już Chochłow w pracy z 1916 r. (za Alpatovem i Tiuninem 1925).
Jakkolwiek w literaturze spotyka się dużo danych o długości języczka w odniesieniu do określonych terenów, to jednak posiadają one raczej charakter informacyjny. Wprawdzie w dostatecznym stopniu mogą one określać miejsce populacji w rasowej przynależności, ale niewiele mówią o zmienności jej wewnątrz większych lub mniejszych zasięgów terytorialnych. Do najbardziej obszernie opracowanych populacji według długości języczka należą pszczoły kaukaskie, i to zarówno w ich ojczyźnie, jak i poza jej granicami.
MATERIAŁ I METODYKA
Materiał. Jako materiał do badań długości języczka u pszczoły krajowej posłużyły próbki pszczół zebrane przez Zakład Pszczelnictwa IS w celu wykonania tzw. inwentaryzacji pszczoły. Zbieranie próbek przeprowadzono w latach 1957—1959 za pośrednictwem Służby Rolnej Zarządów Rolnictwa Wojewódzkich i Powiatowych Rad Narodowych. Zarządom tym Zakład Pszczelnictwa dostarczył opakowania na pszczoły i zaopatrzył w instrukcje odnośnie postępowania przy zbieraniu materiału.
Za odpowiednią pasiekę (okolicę) do pobrania próbek uważało się taką, która miała pszczołę miejscową, od dawna nasiedlającą dane tereny, w zasadzie nie objętą przerzutami i nie wykazującą, na podstawie obserwacji i informacji, domieszki obcych ras. Z każdej wytypowanej pasieki ewentualnie miejscowości (punktu) projektowano pobranie 3 próbek pszczół, każda z innego pnia. Ilość pszczół w jednej próbce określono na 120—150 szt. dla zabezpieczenia dokonania pomiarów przynajmniej na 100 osobnikach.
Punkty na terenie kraju grupowały się wzdłuż 8 linii wyznaczających kierunki południe-północ (4 linie) i wschód-zachód (4 linie, ryc. 2). W gęstości rozmieszczenia typowanych punktów uprzywilejowano te rejony, gdzie spodziewano się znalezienia pszczół tubylczych.
Akcję pobierania próbek przeprowadzano każdego roku w miesiącach sierpień — wrzesień. W ten sposób otrzymano do badań w poszczególnych latach pszczoły pochodzące z jednakowych, okresów czerwienia w sezonie, i to w porze roku, gdy one wykazują, według Mikhailoffa (1927a), stosunkową największą stałość cech fizycznych.
Z ogólnej ilości planowanych 675 próbek pszczół z 225 punktów zebrano 389 próbek, z których 342 stanowiło 114 punktów, w każdym próbki z trzech rojów. Pozostałe 47 próbek pochodziło z rojów, które w mniejszej liczbie niż trzy reprezentowały populacje określonych miejscowości. Wśród punktów, o łącznej liczbie 114, w 58 wypadkach lokalizacja każdego z nich mieściła się w obrębie jednej pasieki. Natomiast pozostałe 52 punkty obejmowały roje pasiek położonych w najbliższej okolicy. Miejscowości, z których otrzymano próbki, na ogół nie odbiegały od wytyczonych siatką układu liniowego (ryc. 2).
Utrwalanie materiału i sposób przeprowadzania pomiarów. Pszczoły przysyłano do Zakładu Pszczelnictwa żywe w specjalnych pudełkach o wymiarach wewnętrznych 10×8×4 cm, zaopatrzonych w plasterki z miodem lub kandi. Zabijanie pszczół następowało przez zanurzenie ich we wrzącej wodzie.
strona 5Zabieg ten prowadził do wyciągnięcia języczka przed zabiciem, co było konieczne do dokonania pomiarów długości. W gotującej się wodzie trzymano pszczoły 2 minuty. Czas przetrzymywania pszczół w wodzie wahał się u różnych autorów (Chochłow 1916, Alpatov i Tiunin 1925, Skorikow 1929a, Goetze 1930) od kilku sekund do 5 minut. Na 15 próbkach pszczół, podzielonych na dwie części każda, zastosowano gotowanie — jednej z nich przez 2 minuty, drugiej — przez 5 minut. Po dokonaniu później pomiarów długości języczka i zastosowaniu analizy wariancji nie wykryto istotnych różnic między tymi dwiema kombinacjami. Po wyjęciu pszczół z wrzątku rozsypywano je na bibule w celu odsączenia wody. Następnie umieszczano je w alkoholu etylowym 75%. Po upływie 2—3 miesięcy alkohol ten zamieniano na inny o takim samym stężeniu. Utrwalony w ten sposób materiał przechowywano aż do czasu dokonywania pomiarów.
Pomiary długości języczka przeprowadzano w sezonach zimowych lat 1957—1960. Do pomiarów służył mikroskop marki WICH nr 5003 z obiektywem E. Leitz Wetzer 1 i okularem 5x, w którym umieszczono szkiełko mikrometryczne Zeissa z podziałką od 1 do 100.
Przy pomocy igieł preparacyjnych oddzielano wargę dolną od kompleksu labialno-maksylarnego i umieszczano ją w kropli wody na szkiełku przedmiotowym, po czym nakładano szkiełko przykrywkowe. Za długość języczka przyjęto odległość od wierzchołka submentum (przedbródka) do końca glossa — flabellum (łyżeczki) (ryc. 1). Odczyty dokonywano z dokładnością do 0,5 podziałki. Jedna podziałka szkieka mikrometrycznego, obliczona przy pomocy mikrometru R. Winkela równała się 0,068421 mm na preparacie.
Przy analizowaniu zmienności średnich długości języczka z rojów w niektórych częściach kraju (Beskidy Zachodnie i Podlasie) wykorzystano też materiały pochodzące z tzw. „próbnej inwentaryzacji pszczoły krajowej” przeprowadzonej przez Zakład Pszczelnictwa w 1956 roku.
Sposób opracowania wyników. Wyniki pomiarów długości języczka opracowano statystycznie w sposób następujący:
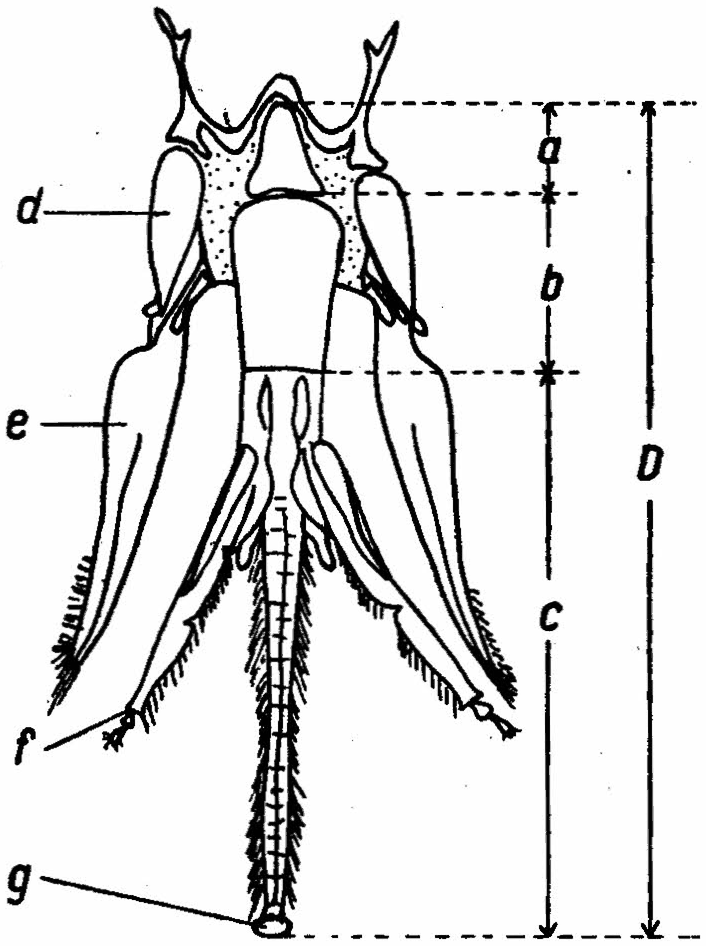
Ryc. 1. Zespół labialno-maksylarny pszczoły robotnicy widziany od strony tylnej (wg Snodgrassa)
Abb. 1. Mundwerkzeuge einer Arbeiterin von hinten gesehen (nach Snodgrass)
a — przedbródek (submentum) b — podbródek (mentum) c — języczek (glossa) d — pieniek szczękowy (stipes) e — żuwka zewnętrzna szczęki (lobus externus) f — głaszczki wargi dolnej (palpi labiales) g — łyżeczka (flabellum) D — anatomiczna długość języczka anatomische Rüssellänge
a) Obliczono średnie długości języczka (x̄) dla rojów, punktów (1 punkt = 3 roje) i grup rojów;
b) Obliczono odpowiadające im (pod a) współczynniki zmienności (V);
c) Przy pomocy analizy wariancyjnej A. R. Fischera zbadano jednorodność populacji pszczół wewnątrz punktów oraz w ramach każdej grupy rojów;
d) Obliczono odpowiednie stosunki zmienności, przy pomocy których daje się liczbowo wyrazić większa lub mniejsza jednorodność populacji pszczół w danej grupie rojów. Użyto tu metody stosowanej przez Alpatova i Tiunina (1925). Polega ona na wyrażeniu zmienności obliczonej cząstkowo z poszczególnych punktów, w procentach zmienności dla całej populacji w danej grupie, potraktowanej jako populacja jednorodna.
Do oceny istotności różnic użyto testu „t” Studenta. W badaniach przyjęto dwa poziomy wiarogodności: a1 = 0,05 i a2 = 0,01. Odpowiadające im wartości różnicy granicznej są symbolizowane przez m1 i m2. Przy podawanych w tekście wielkościach średnich (x̄) długości języczka rojów umieszczano ich średni błąd.
WYNIKI
CHARAKTERYSTYKA MATERIAŁU I WYNIKI ANALIZY ZMIENNOŚCI W ROJACH I PUNKTACH
Pomierzono i dokonano obliczeń statystycznych długości języczka w próbkach z 379 rojów w 211 miejscowościach kraju (ryc. 2). Próbki z rojów, które w liczbie trzech reprezentowały populacje jednej lub kilku pasiek w tej samej okolicy, określono w opracowaniach statystycznych mianem punktu. Ogólnie wydzielono 108 punktów, na które złożyło się 324 rojów. Liczba osobników badanych w roju (liczebność próbki) wahała się od n = 26 do n = 200 i wynosiła przeciętnie n = 90,7. Wartości indywidualnych pomiarów długości języczka dla badanych osobników ze wszystkich próbek mieściły się od 5,48 mm do 6,91 mm. Średnie z rojów układały się w przedziale 5,947 mm do 6,497 mm; rozpiętość więc pomiędzy stwierdzoną najmniejszą i największą średnią długością języczka z rojów wynosiła 0,550 mm. Współczynniki zmienności wewnątrz rojów wahały się od V = 0,387 do V = 4,423; znaczna większość z nich nie przekraczała jednak V = 2,500.
Amplitudy średnich długości języczka z rojów w punktach wykazywały o wiele mniejsze wahania (tab. 3). Jednak z ogólnej liczby 108 punktów, w których przeprowadzono analizę wariancji A. R. Fischera, tylko w 23 (21,3%) stwierdzono jednorodność populacji; w pozostałych 87-miu punktach wykazano w 14 istotne a w 73 wysoko istotne różnice między rojami (tab. 1).
Pochodzenie rojów punktu z jednej lub kilku pasiek nie miało zasadniczego wpływu na wyniki analizy wariancji, wyrażającego się więcej lub mniej częstym wystąpieniem jednorodnych populacji punktów, tzn. wystąpieniem takich punktów, w których nie stwierdzono istotnych różnic w długości języczka między rojami. Stosunkowy udział jednorodnych populacji — jak informuje tabela 1 — wśród punktów, odpowiadających każdy jednej pasiece, był nawet mniejszy niż w wypadku punktów, których roje pochodziły z różnych miejscowości. Średnie długości języczka z rojów w obrębie pasieki nie przedstawiały w zasadzie mniejszego zróżnicowania od populacji, na którą składały się roje z pasiek najbliższej okolicy. Roje pszczół,
strona 7Tabela 1
Zestawienie wyników analizy zmienności długości języczka między rojami w punktach Zusammenstellung der Ergebnisse der Varianzanalyse der Rüssellänge von Familien verschiedener Versuchsorte
| Badane roje w punkcie / Untersuchte Familien je Versuchsort | Liczba punktów / Anzahl der Versuchsorte: Razem / Zusammen | Liczba punktów: Różnice między rojami / Unterschiede zwischen den Familien: nie stwierdzono / nicht gesichert | Liczba punktów: Różnice między rojami: stwierdzono / gesichert: a1 = 0,05 | Liczba punktów: Różnice między rojami: stwierdzono / gesichert: w tym / davon a2 = 0,01 | Procent punktów jednorodnych / % der einheitlichen Versuchsorte |
|---|---|---|---|---|---|
| Z tej samej pasieki / Aus den selben Bienenstand | 58 | 10 | 48 | 38 | 17,24 |
| Z różnych pasiek w tej samej miejscowości / Aus verschiedene Bienenstände des gleichen Ortes | 6 | 1 | 5 | 5 | 16,67 |
| Z różnych (sąsiednich) miejscowości / Aus benachbarten Orten | 44 | 12 | 32 | 29 | 27,27 |
| Razem / Zusammen | 108 | 23 | 85 | 72 | 21,30 |
Tabela 2
Charakterystyka ogólna grup rojów Allgemeine Charakteristik der Familiengruppen
| Grupa / Gruppe | Liczba badanych rojów / Anzahl der untersuchten Familien | Liczba badanych punktów / Anzahl der Versuchsorte: Ogółem / Zusammen | Liczba badanych punktów: w tym stwierdzono / davon: jednorodność populacji / einheitliche Populationen | Liczba badanych punktów: w tym stwierdzono / davon: niejednorodność populacji / uneinheitliche Populationen |
|---|---|---|---|---|
| A | 28 | 8 | 3 | 5 |
| B | 84 | 25 | 6 | 19 |
| C | 26 | 7 | 2 | 5 |
| D | 55 | 16 | 4 | 12 |
| E | 24 | 6 | 2 | 4 |
| F | 46 | 13 | 3 | 10 |
| G | 23 | 7 | — | 7 |
| H | 15 | 5 | 2 | 3 |
| J | 12 | 4 | — | 4 |
| K | 13 | 4 | — | 4 |
które reprezentowały populacje odpowiadające zasięgowi terytorialnemu określonemu więcej niż jedną miejscowością, przedstawiały się więc pod względem jednolitości i wyrównania podobnie jak roje poszczególnych pasiek. Bardzo zbliżone zależności stwierdzono przy porównaniu wartości średnich z rojów i z punktów
strona 8pomiędzy punktami. Te wartości w odniesieniu do pewnych grup punktów były wewnątrz tych grup podobne i dla nich charakterystyczne oraz odróżniające je od innych. Ten fakt, zarówno jak i stosunkowo mała skala zmienności w punktach w porównaniu do zmienności określonej wszystkimi badanymi rojami, pozwolił na wydzielenie grup rojów i potraktowanie ich jako odrębnych populacji przy dalszych opracowaniach i omówieniach.
ANALIZA STATYSTYCZNA GRUP ROJÓW
Jako podstawę przy wyodrębnianiu grup rojów przyjęto: 1) terytorialne położenie rojów objętych i nieobjętych punktami; 2) zbliżone wartości średnich długości języczka z rojów; 3) podobny rodzaj zmienności w punktach, charakterystyczny
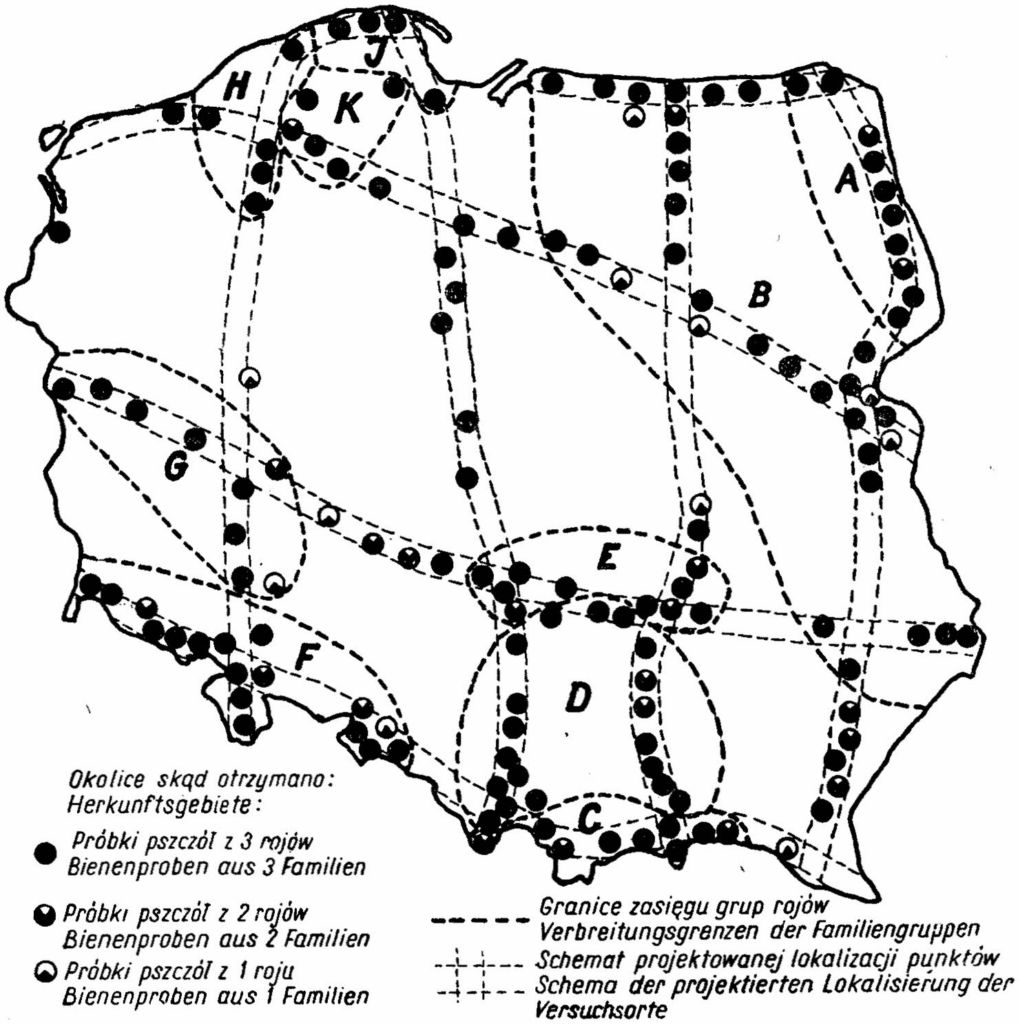
Okolice skąd otrzymano: / Herkunftsgebiete: ● Próbki pszczół z 3 rojów / Bienenproben aus 3 Familien ◕ Próbki pszczół z 2 rojów / Bienenproben aus 2 Familien ◔ Próbki pszczół z 1 roju / Bienenproben aus 1 Familien – – – – Granice zasięgu grup rojów / Verbreitungsgrenzen der Familiengruppen -+-+- – Schemat projektowanej lokalizacji punktów / Schema der projektierten Lokalisierung der Versuchsorte
Ryc. 2. Oznaczenie zasięgów terytorialnych badanych grup rojów Abb. 2. Territorielle Verteilung der untersuchten Familiengruppen
dla danej grupy. W wielu wypadkach zasięg terytorialny tych grup, jak i szersza ich analiza zostały z konieczności ograniczone niedostateczną (w stosunku do projektowanej) ilością posiadanego materiału. Odnosi się to przede wszystkim do rozmieszczenia w terenie badanych rojów, które to (rozmieszczenie) było decydującym warunkiem przy określaniu zasięgu terytorialnego grup.
Ogółem wyodrębniono do opracowania 10 grup rojów (ryc. 2, tab. 6). Poszczególne grupy oznaczono literami od A do K. Objęły one łącznie 327 rojów w tym 285 rojów wchodzących w skład 95 punktów. Roje, które ze względu na swoje terytorialne położenie nie mogły być włączone do żadnej z grup, pominięto przy omawianiu poszczególnych grup. Największa liczba rojów —84— weszła w skład grupy B (Północno-wschodnia Polska); najmniej licznie reprezentowana była grupa J (Wybrzeże Gdańskie) — 12 rojów (tab. 2).
Największy udział punktów jednorodnych, tzn. takich, w których nie stwierdzono istotnych różnic w długości języczka pomiędzy rojami, posiadały grupy: H (Pomorze Środkowe), A (Podlasie Wschodnie) i C (Beskidy Zachodnie). Grupy te też — szczególnie dwie ostatnie — charakteryzowały się dość dużą amplitudą średnich długości języczka z rojów w punktach i wysokimi współczynnikami zmienności w rojach, punktach i grupach (tab. 3). Stosunkowo znaczną liczbą (33% i 24%) punktów jednorodnych, przy najniższych ze wszystkich grup współczynnikach zmienności (V = 1,345 i V = 1,381 dla grup), stwierdzono w grupach E (Góry Świętokrzyskie) i B (Północno-wschodnia Polska).
Dla każdej z 10 grup obliczono zmienność między punktami. Tylko w grupie C (Beskidy Zachodnie) nie stwierdzono istotnej różnicy między średnimi długościami języczków z punktów; we wszystkich innych grupach wykazano różnice wysoko istotne.
W celu wykazania istotności różnic między średnimi długościami języczka z poszczególnych punktów przy porównaniu ich wewnątrz grup, obliczono różnice graniczne (m1) przy poziomie wiarogodności a1 = 0,05. Wartości m1 w zależności od liczebności próbek wykazały w obrębie każdej grupy pewne wahania, które mieściły się w określonym przedziale (tab. 4). Największy stosunkowo udział kombinacji nie wykazujących istotnych różnic na ilość możliwych w ogóle posiadały grupy: K (Pomorze Wschodnie) — 67%, H (Pomorze Środkowe) — 30%, E (Góry Świętokrzyskie) — 33%, B (Północno-wschodnia Polska) — 20% (tab. 4). Te dwie ostatnie wyróżniły się też, jak wspomniano, stosunkowo dużą liczbą punktów jednorodnych (tab. 2). Natomiast grupy K i J (Wybrzeże Gdańskie) składały się wyłącznie z punktów niejednorodnych. Zmienność średnich długości języczka rojów i dyspersja w punktach tych grup dorównywała prawie zmienności i dyspersji między punktami w grupach. Zróżnicowanie wartości średnich długości języczka, zbliżone do zróżnicowania charakteryzującego grupy, występowało już w poszczególnych punktach (pasiekach, tab. 3). Populacje punktów nie przedstawiały w zasadzie większej jednolitości niż populacja grupy.
Stopień wyrównania populacji grupy (lub punktu) dobrze charakteryzowało porównanie zmienności wewnątrz rojów i w grupie. Ponieważ roje składały się na populację grupy, przeto dyspersja obliczona dla tej populacji, traktowanej jako jednorodna znacznie przewyższała średnią z dyspersji rojów. Zmienność wewnątrz rojów tworzyła więc pewną część zmienności wewnątrz populacji. Im udział zmienności rojowej w zmienności populacji grupy był większy tym populacja grupy przedstawiała się jednoliciej. W tabeli 5 podano średnie odchylenie dla poszczególnych grup obliczone trzema sposobami: 1) cząstkowo z poszczególnych rojów; 2) cząstkowo z poszczególnych punktów i 3) z całej populacji w grupie trakto-
strona 10Tabela 3
Dane szczegółowe dla charakterystyki pszczół wewnątrz grup rojów według długości języczka Angaben zur Charakterisierung der Bienen von Familiengruppen unterschiedlicher Rüssellänge
| Grupa / Gruppe | Wyszczególnienie / Aufteilung: Punkty / Versuchsorte — jednorodne = j — einheitliche — niejednorodne = n — uneinheitliche; Dla wszystkich rojów w grupie = g / Für die ganze Gruppe = g | Średnie długości języczka w mm / Mittel der Rüssellänge in mm: z rojów: największa rozpiętość w punkcie / für die Familien: grösste Abweichungen im Versuchsorte | Średnie długości języczka w mm: z punktów od do / für die Versuchsorte von bis | Współczynniki zmienności / Variationskoeffizienten: z rojów: największa rozpiętość w punkcie / für die Familien: grösste Abweichungen im Versuchsorte | Współczynniki zmienności: z punktów od do / für die Versuchsorte von bis |
|---|---|---|---|---|---|
| A Podlasie Wschodnie | j | 6,111—6,160 | 6,135—6,195 | 1,113—4,423 | 2,350—2,814 |
| n | 6,176—6,298 | 6,198—6,287 | 1,786—3,413 | 1,330—2,826 | |
| g | 6,076—6,324 | 6,203 | 1,098—4,423 | 2,314 | |
| B Północno-wschodnia Polska | j | 6,053—6,087 | 6,061—6,148 | 0,894—2,354 | 0,876—1,556 |
| n | 6,020—6,155 | 6,032—6,146 | 0,846—1,766 | 0,730—1,662 | |
| g | 5,960—6,158 | 6,103 | 0,587—2,354 | 1,381 | |
| C Beskidy Zachodnie | j | 6,294—6,344 | 6,323—6,331 | 2,522—4,269 | 1,094—3,487 |
| n | 6,269—6,421 | 6,300—6,343 | 0,473—2,147 | 1,695—2,774 | |
| g | 6,249—6,497 | 6,334 | 0,387—4,269 | 2,233 | |
| D Wyżyna Małopolska | j | 6,166—6,203 | 6,128—6,214 | 1,224—3,155 | 1,282—3,130 |
| n | 6,143—6,332 | 6,130—6,279 | 1,229—2,099 | 2,130—3,092 | |
| g | 6,072—6,334 | 6,193 | 0,995—3,865 | 2,068 | |
| E Góry Świętokrzyskie | j | 6,079—6,126 | 6,088—6,098 | 0,966—1,152 | 1,062—1,183 |
| n | 6,051—6,136 | 6,044—6,128 | 0,878—1,450 | 1,172—1,304 | |
| g | 5,947—6,162 | 6,087 | 0,878—1,954 | 1,345 | |
| F Rejon Śląsko-sudecki | j | 6,127—6,171 | 6,114—6,160 | 1,264—1,718 | 1,251—1,470 |
| n | 6,092—6,280 | 6,091—6,250 | 1,198—2,447 | 1,363—2,243 | |
| g | 6,067—6,340 | 6,173 | 0,521—2,447 | 1,752 | |
| G Rejon Śląsko-lubuski | j | — | — | — | — |
| n | 6,087—6,328 | 6,031—6,209 | 1,821—3,828 | 1,164—2,710 | |
| g | 5,972—6,328 | 6,098 | 1,007—3,828 | 1,981 | |
| H Pomorze Środkowe | j | 6,187—6,218 | 6,201—6,266 | 1,669—2,729 | 1,847—2,309 |
| n | 6,210—6,294 | 6,228—6,244 | 1,226—2,188 | 1,908—2,136 | |
| g | 6,187—6,294 | 6,236 | 1,226—2,729 | 2,085 | |
| J Wybrzeże Gdańskie | j | — | — | — | — |
| n | 6,132—6,246 | 6,170—6,262 | 0,998—2,677 | 1,563—2,320 | |
| g | 6,126—6,284 | 6,202 | 0,998—2,763 | 2,027 | |
| K Pomorze Wschodnie | j | — | — | — | — |
| n | 6,038—6,174 | 6,071—6,119 | 1,098—1,389 | 1,034—2,530 | |
| g | 6,008—6,174 | 6,084 | 1,098—2,610 | 1,763 |
wanej jako populacja jednorodna (średnie odchylenie ogólne). Dwie pierwsze wartości, wyrażone w procentach średniego odchylenia ogólnego, stanowiły liczbowy wskaźnik jednorodności populacji pszczół według długości języczka w punktach danej grupy i w grupie. Wysokie wskaźniki jednorodności, jakie wykazały grupy: H (Pomorze Środkowe), K (Pomorze Wschodnie), J (Wybrzeże Gdańskie), E (Góry Świętokrzyskie), C (Beskidy Zachodnie), B (Północno-wschodnia część Polski), wskazywały na duże wyrównanie populacji grup. Skala zróżnicowania długości języczka w populacjach tych grup w zasadzie nieznacznie przewyższała zróżnicowanie bezwzględnych wartości długości języczka i jej zmienności wewnątrz
Tabela 4
Zestawienie wyników analizy zmienności długości języczka między punktami w grupach Zusammenstellung der Ergebnisse der Varianzanalyse der Rüssellänge nach Versuchsorten innerhalb der Gruppen
| Grupa rojów / Familiengruppe | Wartość różnic granicznych w mm przy a1 = 0,05 od do / Grenzdifferenz in mm bei a1 = 0,05 von bis | Liczba kombinacji przy porównywaniu parami średnich z punktów / Anzahl der Kombinationen beim Vergleich von Paaren der Mittelwerte der Versuchsorte: możliwych w ogóle / mögliche | Liczba kombinacji…: nie wykazujących istotnych różnic / ohne gesicherte Unterschiede |
|---|---|---|---|
| A | 0,014—0,016 | 28 | 2 |
| B | 0,011—0,020 | 300 | 64 |
| D | 0,021—0,031 | 120 | 32 |
| E | 0,012—0,014 | 15 | 5 |
| F | 0,015—0,025 | 78 | 18 |
| G | 0,018—0,024 | 21 | 2 |
| H | 0,021—0,027 | 10 | 3 |
| J | 0,020—0,021 | 6 | 3 |
| K | 0,016—0,018 | 6 | 4 |
poszczególnych rojów, które składały się na te grupy. Nie można tego było powiedzieć o grupach: D (Wyżyna Małopolska) i G (rejon Śląsko-lubuski), które osiągnęły najniższe wskaźniki jednorodności (63,75% i 78,46%). Jednak zróżnicowanie wartości i zmienności długości języczka w każdej z tych dwóch grup posiadało odmienną strukturę. O ile wewnątrz grupy D było ono większe pomiędzy punktami, to w grupie G następowało już w obrębie punktów. Pozwalało o tym sądzić porównanie wskaźników jednorodności odnoszących się do zmienności w rojach ze wskaźnikami jednorodności obliczonymi na podstawie zmienności w punktach; w grupie D były one bardziej zbliżone wartością do siebie (63,75% i 69,42%) niż w grupie G (78,46% i 92,89%, tab. 5).
Na wysokość wskaźników jednorodności zasadniczy wpływ wywierała wielkość zmienności populacji rojów. Duża zmienność wewnątrz rojów — jak np. w grupie C (Beskidy Zachodnie) — była przyczyną wystąpienia wysokich wskaźników jednorodności i odwrotnie przy bardziej wyrównanych populacjach rojów — np. w grupie B (Północno-wschodnia Polska) — wskaźniki jednorodności nie osiągnęły najwyższych wartości, jakkolwiek zróżnicowanie średnich długości języczka z rojów wewnątrz grup w obu wypadkach mogło przedstawiać się podobnie. Znaczne
strona 12Tabela 5
Średnie odchylenie w grupach obliczone wg średnich odchyleń dla rojów, punktów i grup traktowanych jako populacje jednorodne oraz wskaźniki jednorodności w % Mittlere Abweichung in den Gruppen berechnet nach den mittleren Abweichung in den Familien, Versuchsorten und Gruppen, die als einheitliche Populationen betrachtet wurden und die Koeffizienten der Einheitlichkeit in %
| Grupa rojów / Familiengruppe | Średnie odchylenie grupy w mm wg obliczeń: / Mittlere Abweichung der Gruppe in mm nach der Berechnung: cząstkowo z rojów / mittlere aus den Familien | Średnie odchylenie grupy…: cząstkowo z punktów / mittlere aus den Versuchsorten | Średnie odchylenie grupy…: z populacji całej grupy / aus der Population der ganzen Gruppe | Wskaźniki jednorodności w odniesieniu do: / Koeffizienten der Einheitlichkeit in Bezug auf: rojów / die Familien | Wskaźniki jednorodności…: punktów / die Versuchsorte |
|---|---|---|---|---|---|
| A | 0,1290 | 0,1411 | 0,1497 | 86,16 | 94,25 |
| B | 0,0781 | 0,0843 | 0,0889 | 87,81 | 94,80 |
| C | 0,1313 | 0,1466 | 0,1487 | 88,30 | 98,63 |
| D | 0,1204 | 0,1311 | 0,1890 | 63,75 | 69,42 |
| E | 0,0734 | 0,0768 | 0,0819 | 89,62 | 93,84 |
| F | 0,0946 | 0,1068 | 0,1166 | 81,12 | 91,56 |
| G | 0,1038 | 0,1229 | 0,1323 | 78,46 | 92,89 |
| H | 0,1261 | 0,1300 | 0,1319 | 95,58 | 98,55 |
| J | 0,1176 | 0,1257 | 0,1308 | 89,94 | 96,12 |
| K | 0,0969 | 0,1077 | 0,1086 | 89,24 | 99,15 |
wyrównanie populacji grup: A (Podlasie Wschodnie), C (Beskidy Zachodnie), H (Pomorze Środkowe), J (Wybrzeże Gdańskie), K (Pomorze Wschodnie) wynikało po części z dużej zmienności wewnątrz rojów.
OGÓLNA CHARAKTERYSTYKA GRUP ROJÓW WEDŁUG DŁUGOŚCI JĘZYCZKA I JEJ ZMIENNOŚCI
Średnie długości języczka rojów ze wszystkich próbek układały się w przedziałach od 5,92—5,96 mm do 6,48—6,52 mm i zajmowały 15 klas w szeregu statystycznym (tab. 6). Roje poszczególnych grup mieściły się w mniejszych liczbach klas, w różnych odcinkach ogólnego szeregu statystycznego. Miejsca ich położenia wskazywały na odrębność niektórych grup pod względem długości języczka i jej zmienności. Składały się one na cztery warianty:
przedziały od 5,92—5,96 mm do 6,16—6,20 mm — grupy: B (Północno-wschodnia Polska), E (Góry Świętokrzyskie) i K (Pomorze Wschodnie); przedziały od 6,24—6,28 mm do 6,48—6,52 mm — grupa C (Beskidy Zachodnie); przedziały od 6,16—6,20 mm do 6,28—6,32 mm — grupa H (Pomorze Środkowe); przedziały od 5,96—6,00 mm do 6,32—6,36 mm — grupy: A (Podlasie Wschodnie), D (Wyżyna Małopolska), F (rejon Śląsko-sudecki), G (rejon Śląsko-lubuski), J (Wybrzeże Gdańskie).
strona 13Podstawą do wydzielenia grup w trzech pierwszych wariantach były różnice w długości języczka. Dlatego w celu ułatwienia przyjęto określenie populacji grup tych wariantów w zależności od długości języczka jako formy: krótkojęzyczkowe (wariant pierwszy), długojęzyczkowe (wariant drugi) i średniojęzyczkowe (wariant trzeci). Populacje grup zaliczonych do wariantu czwartego, wydzielone przede wszystkim ze względu na dużą zmienność długości języczka, oznaczono jako „mieszane”. Wewnątrz grup nie przedstawiały one jednolitości jaką obserwowano w populacjach
Tabela 6
Szeregi statystyczne średnich długości języczka z rojów dla poszczególnych grup Statistische Reihen der mittleren Rüssellänge für die Familien der einzelnen Gruppen
| Grupa / Gruppe — mm: | 5,92—5,96 | 5,96—6,00 | 6,00—6,04 | 6,04—6,08 | 6,08—6,12 | 6,12—6,16 | 6,16—6,20 | 6,20—6,24 | 6,24—6,28 | 6,28—6,32 | 6,32—6,36 | 6,36—6,40 | 6,40—6,44 | 6,44—6,48 | 6,48—6,52 |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| A | 1 | 2 | 6 | 7 | 3 | 5 | 3 | 1 | |||||||
| B | 1 | 4 | 14 | 37 | 28 | ||||||||||
| C | 2 | 9 | 10 | 3 | 1 | — | 1 | ||||||||
| D | 1 | 6 | 9 | 15 | 11 | 8 | 2 | 3 | |||||||
| E | 1 | — | — | 8 | 9 | 5 | 1 | ||||||||
| F | 3 | 8 | 14 | 8 | 6 | 5 | 1 | 1 | |||||||
| G | 1 | 3 | 7 | 5 | 2 | 2 | 1 | 1 | — | 1 | |||||
| H | 3 | 6 | 4 | 2 | |||||||||||
| J | 4 | 2 | 3 | 2 | 1 | ||||||||||
| K | 2 | 6 | 4 | 1 | 1 |
reprezentujących formy krótko-, długo- i średniojęzyczkowe. Średnie długości języczka rojów tych grup rozkładały się w znacznej liczbie klas (do 10), a krzywe ich zmienności — na podstawie szeregów statystycznych — w większości wypadków odbiegały swym układem od krzywej Gausa do tego stopnia, że w niektórych grupach był on niezgodny z prawidłami błędu tzn. większe odchylenia nie występowały mniej często (tab. 6).
Tabela 7
Zestawienie liczbowe średnich długości języczka z rojów wg wartości — Sudety, Dolny Śląsk, Ziemia Lubuska Zusammenstellung der mittleren Rüssellänge für die Familien nach der Wertigkeit — Sudety, Dolny Śląsk, Ziemia Lubuska
| Grupa / Gruppe | Podgrupa / Untergruppe — mm: | 5,96—6,00 | 6,00—6,04 | 6,04—6,08 | 6,08—6,12 | 6,12—6,16 | 6,16—6,20 | 6,20—6,24 | 6,24—6,28 | 6,28—6,34 | 6,34—6,36 |
|---|---|---|---|---|---|---|---|---|---|---|---|
| F | a — Głubczyce, Racibórz, Wodzisław Śląski | 4 | 4 | 2 | 2 | ||||||
| b1 — Ząbkowice Śl., Bystrzyca Kłodzka | 1 | — | 1 | 1 | 4 | 2 | 1 | 1 | |||
| b2 — Jelenia Góra | 1 | 1 | 6 | 3 | |||||||
| c — na północ od linii Jelenia Góra—Dzierżoniów—Opole | 1 | 7 | 3 | — | — | 1 | |||||
| G | d — Wrocław, Góra, Wołów | 1 | 3 | 2 | 1 | — | 1 | 1 | — | 1 | |
| e — Ziemia Lubuska | 1 | 2 | 4 | 3 | 1 | 2 |
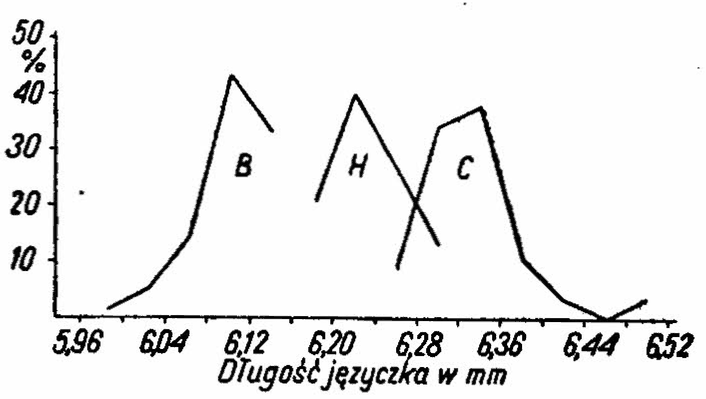
Zróżnicowanie w długości języczka pomiędzy populacjami krótkojęzyczkowymi i długojęzyczkowymi było tak duże i wynikało z opracowania licznego materiału, że wydawało się nie budzić żadnych wątpliwości w wydzieleniu tych populacji (ryc. 3, tab. 6). W odniesieniu do tych dwóch form długości języczka, mniej widocznie wyodrębniała się populacja średniojęzyczkowa, już to z racji swojego „środkowego” położenia w ogólnym szeregu statystycznym, jak też, że stanowiła ją grupa reprezentowana przez stosunkowo niedużą liczbę badanych rojów (15). Jednak wartość i układ w szeregu rozdzielczym ich średnich długości języczka, a także zmienność indywidualna wewnątrz rojów, wskazywała na odrębność tej populacji pod względem długości języczka. Istnienie na terenie Polski populacji pszczół o długości języczka odpowiadającej formie średniojęzyczkowej, wyodrębniającej się od krótko- i długojęzyczkowej, potwierdziła też analiza grup zaliczonych do populacji „mieszanych”.
POPULACJE ODPOWIADAJĄCE FORMIE KRÓTKOJĘZYCZKOWEJ
Populacje wyodrębnione jako formy krótkojęzyczkowe — grupy B, E i K — reprezentowały terenowo zwarty, duży kompleks w północno-wschodniej części kraju (ryc. 2, 8). Zajmowały one obszar największy w porównaniu do zasięgów terytorialnych
strona 15populacji długo- i średniojęzyczkowych. Grupa B (x̄ = 6,103 ∓ 0,00096 mm) obejmowała Wyżynę Lubelską, południowo-zachodnie Podlasie i Pojezierze Mazurskie; grupa E (x̄ = 6,087 ∓ 0,00177 mm) — Góry Świętokrzyskie i ich okolice, a grupa K (x̄ = 6,084 ∓ 0,00295 mm) — na Pomorzu Bory Tucholskie i Szwajcarię Kaszubską.
Formy krótkojęzyczkowe charakteryzowały się dużą jednolitością wewnątrz rojów. Zmienność długości języczka w rojach mieściła się w bardzo wąskich przedziałach .Pomiary indywidualne wielu rojów grupowały się w 2—3 klasach (wartość przedziału klasowego 0,12 mm). Wspóczynniki zmienności wewnątrz rojów mieściły się w granicach od V = 0,587 do V = 2,610. Na 122 zbadanych rojów w 22 nie przekraczały one V = 1,000, a w 95 rojach wynosiły od V = 1,000 do V = 2,000. Były to najniższe wartości ze wszystkich grup, które analizowano (tab. 3).
Duża jednorodność populacji wewnątrz rojów pozwalała na stwierdzenie w punktach istotnych różnic pomiędzy rojami, nawet gdy te wykazywały nieznaczne zróżnicowanie średnich długości języczka. W większości wypadków było ono już istotne przy różnicy wynoszącej 0,015—0,025 mm. Wartość różnic granicznych w punktach niejednorodnych przy n = 100 lub zbliżonym do 100 i poziomie wiarogodności a1 = 0,05 nie przekraczała — poza trzema punktami — m1 = 0,028 mm, a przy a2 = 0,01 — m2 = 0,037 mm oraz osiągała najniższe wartości w porównaniu do pozostałych grup. Jednak w wyniku analizy zmienności w populacjach krótkojęzyczkowych stwierdzono, w odniesieniu do innych grup, stosunkowo duży udział — z wyjątkiem grupy K — punktów jednorodnych (tab. 2). Ponadto amplituda średnich długości języczka rojów w punktach niejednorodnych nie wykazywała zbyt dużych wahań. Na 30 punktów niejednorodnych w 13 punktach nie przekraczała ona 0,050 mm, a tylko w 3 punktach przewyższała 0,100 mm. Wskazywało to na wyrównanie w dużym stopniu populacji w punktach (pasiekach).
Jedynie grupa K (Pomorze) wykazywała zróżnicowanie rojów pod względem długości języczka w punktach prawie dorównujące zróżnicowaniu dla wszystkich rojów w grupie (tab .3). Wskaźniki jednorodności dla tej grupy, obliczone z dyspersji rojów i z dyspersji punktów, były zbliżone wartością i wysokie (95,[?]% i 9[?],[?]5%, tab. 5). Z dwóch pozostałych grup populacji krótkojęzyczkowej większą zmienność pomiędzy punktami — na podstawie wskaźników jednorodności — wykazała grupa B. Przy analizie rozmieszczenia rojów tej grupy okazało się, że ich długości języczka nie układają się w terenie przypadkowo. Zaobserwowano stopniowe zmniejszanie się długości języczka w kierunku południe-północ. Wyżynę Lubelską — południowy kraniec grupy B — reprezentowało zgrupowanie rojów o średniej długości języczka x̄ = 6,131 ∓ 0,00195 mm, a Mazury — na północy — x̄ = 6,069 ∓ 0,00258 mm. Różnica między tymi dwoma średnimi wynosiła więc 0,062 mm. W środkowej — terenowo — części grupy B języczki wykazywały się pośrednią długością; dla rojów nad środkowym Bugiem x̄ = 6,098 ∓ 0,00164 mm i w dorzeczu Narwi x̄ = 6,096 ∓ 0,00248 mm.
Wewnątrz grup E i K podobnych prawidłowości geograficznych w zmienności długości języczka nie stwierdzono, przede wszystkim ze względu na mały ich zasięg terytorialny. Jednak długości języczka w tych grupach odpowiadały w przybliżeniu wartościom długości języczka poszczególnych części grupy B, znajdujących się w podobnych szerokościach geograficznych. Grupa E zbliżała się długością języczka do rojów Wyżyny Lubelskiej, a grupa K — do Mazur. Stanowiły więc one pewne ogniwa w zmienności długości języczka, jaka przejawiała się w grupie B w odniesieniu do położenia geograficznego. Roje populacji krótkojęzyczkowej, której zasięg terytorialny wyznaczały grupy B, E i K, wykazywały
strona 16więc na całym obszarze jednakową zmienność geograficzną długości języczka. uwarunkowaną nie przynależnością ich do określonych grup, ale szerokością geograficzną.
Zróżnicowanie długości języczka, na jakie natrafiono w grupie B mogło wyniknąć w pewnej części z przejawienia się zmienności geograficznej. Ten rodzaj zmienności, przy rozpatrywaniu grupy rojów o szerszym zasięgu terytorialnym, nie może być uważany za wskaźnik zróżnicowania populacji w sensie wymieszania odmian czy typów pszczół. Niemniej jednak w opracowaniu statystycznym grupy B zmienności powstałej na podłożu geograficznym nie wyłączono, przeto populacja tej grupy w rzeczywistości przedstawiała w większym stopniu wyrównanie niż wskazywały wyniki analizy.
Grupa K, obejmująca na Pomorzu Bory Tucholskie i Szwajcarię Kaszubską, przedstawiała najdalej wysuniętą na zachód, o większym zasięgu terytorialnym i wyrównaniu, populację pszczół formy krótkojęzyczkowej. Na zachód i południe od tej grupy, w kierunku Wisły i Gór Świętokrzyskich, wśród rojów nie objętych w grupy występowały przeważnie formy krótkojęzyczkowe; niewiele z nich posiadało języczki dłuższe. Podobnie też krótkie języczki dominowały w próbkach, które otrzymano w niewielkiej ilości z terenów na zachód od Gór Świętokrzyskich, Wielkopolski i Zachodniego Pomorza, a także z południowo-wschodniej części kraju w dorzeczu Sanu.
Pokaźny udział formy krótkojęzyczkowej miały również populacje oznaczone jako „mieszane”: w Zachodniej Polsce — grupy: G i częściowo F; na południe od Gór Świętokrzyskich — grupa D; na Wybrzeżu Gdańskim — grupa J; na Podlasiu — grupa A.
POPULACJE DŁUGOJĘZYCZKOWE I ZASIĘG TEJ FORMY DŁUGOŚCI JĘZYCZKA
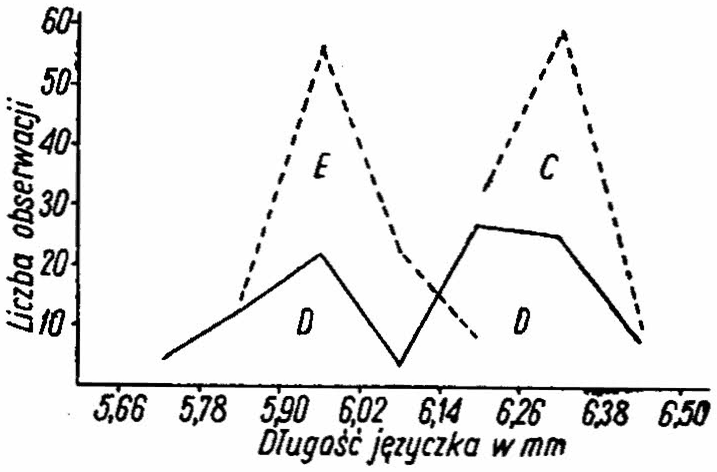
Najdłuższe języczki stwierdzono u rojów w grupie C (Beskidy Zachodnie). Średnia dla grupy wynosiła x̄ = 6,334 ∓ 0,00299 mm, a amplituda średnich z poszczególnych rojów: 6,249—6,497 mm (tab. 3). W zasadzie formy długojęzyczkowe występowały tylko na Podgórzu w Południowo-wschodniej Polsce, ale nie ograniczało się ono wyłącznie do grupy C. Zasięg języczków „długich” na północ dochodził aż do Gór Świętokrzyskich, których nasiedlające populacje pszczół należały do form krótkojęzyczkowych (dla Gór Świętokrzyskich: x̄ = 6,087 mm). Z drugiej strony roje o języczku „krótkim”, występowały i na południe od Gór Świętokrzyskich, sięgając aż do Karpat. Cały więc obszar zawarty między Górami Świętokrzyskimi a Karpatami — reprezentowany w części przez roje grupy D — przedstawiał teren zasięgu form krótkojęzyczkowych i długojęzyczkowych. Stwierdzono tam występowanie wymieszania a nawet krzyżówek rojów o różnych długościach języczka. Krzywe zmienności długości języczka niektórych z nich wykazywały dwuwierzchołkowość (ryc. 4). W miarę przesuwania się na południe obserwowało się jednak wzrost wartości średnich długości języczka u form — jak należałoby je sklasyfikować — krótkojęzyczkowych. Być może, że było to przejawem zmienności geograficznej. W rezultacie jednak, łącznie ze średnimi z rojów wykazujących krzywe zmienności dwuwierzchołkowe, sprowadzało rozkład średnich długości języczka z rojów grupy w szeregu statystycznym do zgodnego z prawidłami błędu (tab. 6). O braku jednolitości w populacji grupy D mówiły także wskaźniki jednorodności
strona 17(tab. 5), i to zarówno obliczone w stosunku do standardowych odchyleń rojów (63,75%), jak i punktów (69,42%); osiągnęły one najmniejsze wartości ze wszystkich grup.
Roje grupy D wykazywały również wysokie współczynniki zmienności o dużej amplitudzie w punktach (V = 1,224 do V = 3,155) i grupie (V = 0,995 — V = 3,865) (tab. 3). Ustępowały jednak w swojej wartości i rozpiętości analogicznym danym z grupy C (V = 0,387 — V = 4,269). Duża zmienność populacji tej ostatniej, wewnątrz rojów i w punktach, w pewnym stopniu wpływała na wyniki analizy zmienności w kierunku zmniejszenia F emp. Przede wszystkim dlatego też w grupie C nie stwierdzono istotnych różnic między punktami i uzyskano wysokie wskaźniki jednorodności, gdy w grupie E czy B, w których amplituda średnich z rojów była znacznie mniejsza (tab. 3), wykazano niejednorodność populacji, przy zbliżonych wysokością wskaźnikach jednorodności.
POPULACJE ŚREDNIOJĘZYCZKOWE
Z Pomorza, na zachód od Borów Tucholskich pochodziły próbki z 15 rojów, wchodzących w skład pięciu pasiek. Wyodrębniono je w grupę H. Średnia długość języczka dla grupy wynosiła x̄ = 6,236 ∓ 0,00362 mm, a amplituda średnich z rojów x̄ = 6,187 mm do x̄ = 6,294 mm. Populacja tej grupy charakteryzowała się stosunkowo dużą jednorodnością zarówno wewnątrz rojów, jak punktów (pasiek) i grupy (tab. 3, 5).
Odrębność tej grupy rojów według długości języczka w porównaniu do populacji określanych jako formy krótko- i długojęzyczkowe, była niewątpliwa (tab. 6, ryc. 3). Jednak nieliczny materiał, jaki zbadano z tych okolic, nie pozwalał na gruntowne scharakteryzowanie populacji i dokładne określenie jej zasięgu terytorialnego. Dlatego trudno byłoby przypisać tej populacji w rejonie Pomorza większe znaczenie, poza faktem stwierdzenia występowania tam form średniojęzyczkowych. Bez wątpienia bardzo interesujące było, że roje z pięciu pasiek z terenu trzech powiatów wykazały się zbliżonymi długościami języczka i stosunkowo małą zmiennością wewnątrz rojów. Nie upoważniało to jednak do konkretnego stwierdzenia, że część Pomorza nasiedlała jednolita populacja formy średniojęzyczkowej a nie stanowiła ona tylko składnik populacji wykazujących wymieszanie różnych form długości języczka, jakie np. wyraźnie przejawiły się w sąsiedniej grupie J na Wybrzeżu Gdańskim.
Formy średniojęzyczkowe występowały również w niektórych grupach oznaczonych jako populacje „mieszane”, szczególnie w grupie A na Podlasiu.
POPULACJE WYKAZUJĄCE WYMIESZANIE WEDŁUG DŁUGOŚCI JĘZYCZKA
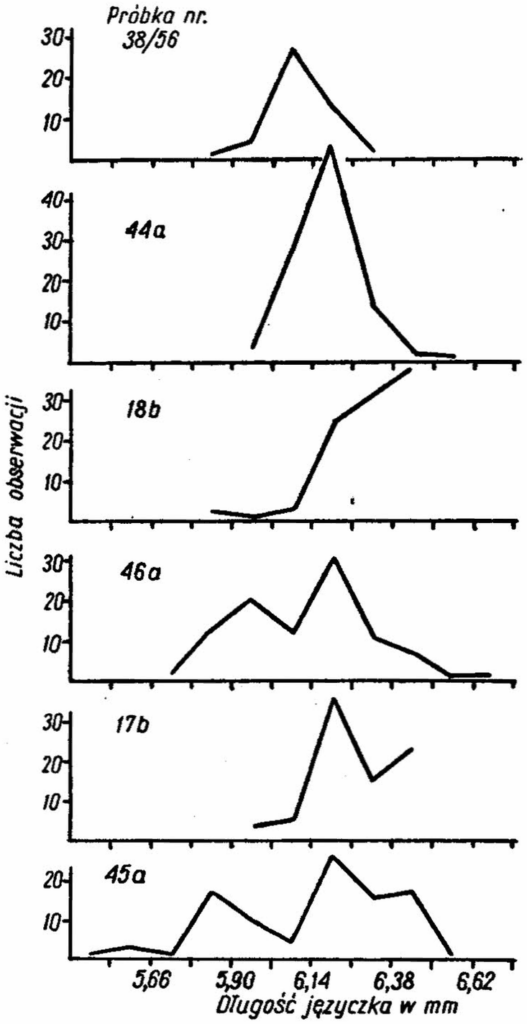
Grupy zaliczone do populacji „mieszanej” charakteryzowały się przede wszystkim dużym zróżnicowaniem średnich długości języczka z rojów. W wielu wypadkach ich krzywe zmienności (dla grup), gdyby je wykreślono, przybrałyby postać wielowierzchołkową (tab. 6). Podobny układ krzywych trafiał się często i przy zmienności indywidualnej w niektórych rojach (ryc. 4, 6). Wskazywało to na istnienie krzyżówek pszczół różniących się długością języczka.
strona 18Na podstawie analizy zmienności wyróżniono dwa rodzaje wymieszania: a) zróżnicowanie długości języczka według punktów (pasiek) bez wyraźnego udziału krzyżówek i b) zróżnicowanie długości języczka wewnątrz punktów i pomiędzy punktami z wyraźnym wystąpieniem form wskazujących istnienie krzyżówek. Przewagę pierwszego rodzaju wymieszania wykazywały grupy: F (rejon Śląsko-sudecki), J (Wybrzeże Gdańskie) i w pewnej mierze — G (rejon Śląsko-lubuski); przewagę drugiego rodzaju — grupy A (Podlasie Wschodnie) i D (Wyżyna Małopolska).
a) Populacje z przewagą zróżnicowania długości języczka pomiędzy punktami. Populacje wykazujące tego rodzaju wymieszanie nasiedlały — poza grupą J — południowo-zachodnie ziemie Polski. Reprezentujące je grupy F i G — odpowiadające Dolnemu Śląskowi i Ziemi Lubuskiej — zakwalifikowały się pod względem długości języczka do najmniej jednolitych w kraju. Wykazały one duże zmienności w punktach i grupach. Jednakże u podnóża Sudetów grupowały się roje wykazujące przewagę dłuższych języczków w porównaniu do terenów położonych dalej na północ.
Pozioma linia poprowadzona przez Jelenią Górę—Dzierżoniów—Opole oddzielała południowe regiony Dolnego Śląska, z których większość średnich długości języcz-
Tabela 8
Zestawienie liczbowe średnich długości języczka z rojów w rejonie Podlasia wg ich wartości, okresu badań, rodzaju krzywych zmienności Zusammenstellung der mittleren Rüssellänge für die Familien im Gebiet Podlasie nach ihrer Wertigkeit, der Versuchsperiode, der Art der Variabilitätskurve
| Wyszczególnienie / Aufteilung — mm: | 5,96—6,00 | 6,00—6,04 | 6,04—6,08 | 6,08—6,12 | 6,12—6,16 | 6,16—6,20 | 6,20—6,24 | 6,24—6,28 | 6,28—6,32 | 6,32—6,36 |
|---|---|---|---|---|---|---|---|---|---|---|
| Próbki z lat: / Proben aus den Jahren: | ||||||||||
| — 1957—59 + 1956 | 2 | 3 | 9 | 10 | 6 | 5 | 3 | 1 | ||
| — 1957—59 | 1 | 2 | 6 | 7 | 3 | 5 | 3 | 1 | ||
| — 1956 | 1 | 1 | 3 | 3 | 3 | |||||
| Krzywe zmienności (1957—59): / Variabilitätskurven (1957—59): | ||||||||||
| — normalne / normal | 3 | 4 | 2 | 3 | 3 | |||||
| — dwuwierzchołkowe / mit zwei Gipfel | 1 | 2 | 3 | 3 | 1 | 2 | — | 1 | ||
| Roje w dorzeczu Narwi i Mazur (część grupy B) / Familien im Gebiet Narew und den Mazury (Teil der Gruppe B) | 1 | 4 | 12 | 26 | 12 |
ka z rojów mieściła się w przedziałach od 6,12 mm do 6,28 mm. Wyodrębniały się one, według rozmieszczenia terenowego, w 3 podgrupy: a (powiaty: Głubczyce, Racibórz, Wodzisław Śląski), b1 (Ząbkowice Śląskie, Bystrzyca Kłodzka), b2 (Jelenia Góra). Dwie ostatnie odpowiadały terenom, na których, według Natkańca (1948), zachowało się po wydarzeniach 1945 roku najwięcej miejscowej pszczoły.
strona 19Pozwalało to przypuszczać, iż reprezentujące ją zbadane roje, których średnie długości języczka zestawiono w tabeli 7, charakteryzowały populacje zasiedlające od dawna te regiony. Prawdopodobnie to samo odnosiło się i do podgrupy rojów a; wskazywały na to wartości jej średnich. Jednak wykazywały one (wartościowo) odrębności od rojów podgrupy b1 i b2; zajmowały w szeregu statystycznym przejściowe miejsce między dwiema ostatnimi. Dało to podstawę — a nie tylko terytorialne rozmieszczenie badanych rojów — do wydzielenia omawianych podgrup. Niektóre z tych podgrup przedstawiały — na ile pozwalała sądzić mała ilość materiału — znaczną jednolitość i układy szeregów statystycznych średnich z rojów i indywidualnych pomiarów z populacji zbliżone do normalnych, czego nie można było powiedzieć o północnych podgrupach Dolnego Śląska i Ziemi Lubuskiej. Starano
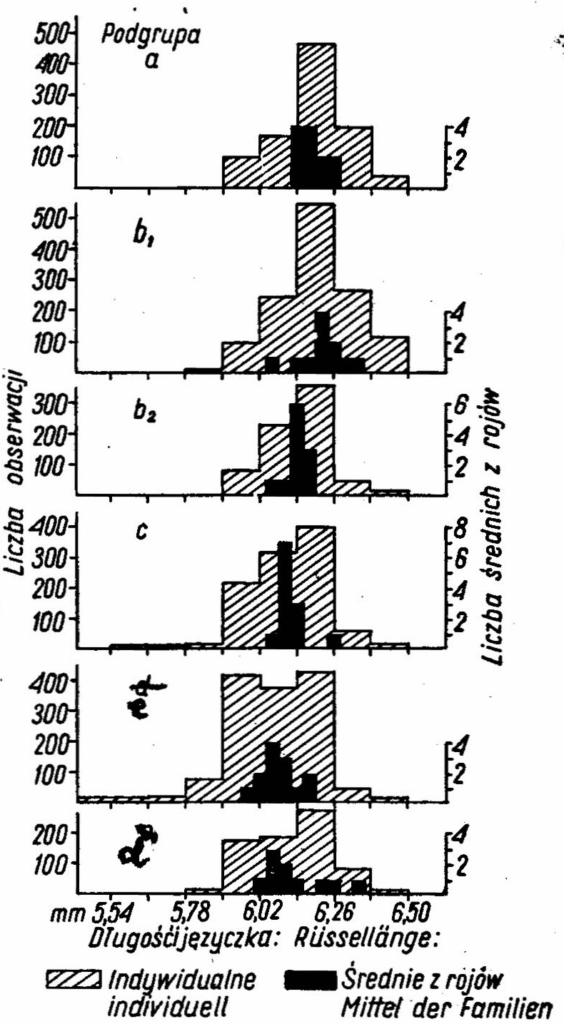
się uwidocznić to na rycinie 5. Szczególnie niekorzystnie wypadła grupa G, składająca się z podgrup: d (powiaty: Wrocław, Góra, Wołów) i e (Ziemia Lubuska). Rozkład długości języczka z pomiarów indywidualnych w całej populacji podgrupy e przejął nawet postać dwuwierzchołkową. Podobny kształt przybierały krzywe zmienności średnich z rojów podgrup i szeregu poszczególnych rojów.
strona 20Podgrupy a, b1, b2 znajdujące się poniżej linii Jelenia Góra—Dzierżoniów—Opole i reprezentujące populacje o stosunkowo najliczniejszym udziale pszczoły tubylczej, długością języczka zbliżały się do form długojęzyczkowych. Niewątpliwie leżały one w granicach zasięgu populacji o długim języczku, podobnie jak i roje z terenów na północ od Beskidów Zachodnich (grupa D). Wynikało już to z racji ich położenia terytorialnego. Sudety były bowiem objęte naturalnym zasięgiem Krainki, a poza tym przed rokiem 1945 różne odmiany tej rasy chętnie importowano i rozpowszechniano na całym Dolnym Śląsku (Goetze 1930, 1940).
Na podstawie badanego materiału linię Jelenia Góra—Dzierżoniów—Opole można uważać za północną granicę zasięgu form długojęzyczkowych. Na północ od tej linii wyraźnie przeważały, wśród dużego zróżnicowania średnich długości języczka z rojów, formy krótkojęzyczkowe (podgrupy c, d, e). Tereny te, na których hodowla pszczół uległa niemal całkowitemu zniszczeniu w 1945 roku zostały nasiedlone pszczołami zarówno z centralnej i wschodniej Polski, jak i z mniej zniszczonych południowych regionów Dolnego Śląska (z powiatów na południe od linii Jelenia Góra—Dzierżoniów—Opole). Stąd też pochodzi mieszanina form krótko- i długojęzyczkowych (podgrupa d). Możliwe, że trafiały się też — szczególnie ze wschodniej Polski — i pszczoły o języczku „średnim”. Wydaje się jednak, że długość języczka odpowiadająca formie średniojęzyczkowej, przede wszystkim w populacjach u podnóża Sudetów, przejawiała się u dalszych pokoleń w rezultacie skrzyżowania się form krótko- i długojęzyczkowych, na skutek pośredniego dziedziczenia się długości języczka.
Wyraźne zróżnicowanie na formy krótko-i średniojęzyczkowe wykazały roje grupy J na Wybrzeżu Gdańskim i Żuławach (tab. 6). Grupa ta „sąsiadowała” bezpośrednio od południa z populacją krótkojęzyczkową z Borów Tucholskich (grupa K) i na zachód — ze średniojęzyczkową, zajmującą Pomorze Środkowe (grupa H). Być może, że na kształtowanie się długości języczka u pszczół na Żuławach i Wybrzeżu pewną rolę odegrała hodowla selekcyjna matek Stacji Doświadczalnej IS w Krynicy Morskiej; długość języczka pnia zarodowego z linii Żuławka wynosiła (1958 r.): x̄ = 6,192 ∓ 0,00640 mm.
b) Populacje z przewagą zróżnicowania długości języczka wewnątrz punktów i rojów. Drugi rodzaj wymieszania — zróżnicowanie w punktach i krzyżówki — występował bardzo wyraźnie w grupach A i D. Populacje grupy D — tereny między Górami Świętokrzyskimi a Beskidami Zachodnimi — przedstawiały wymieszanie i krzyżówki form krótko- i długojęzyczkowych (ryc. 4). Tę grupę omówiono bliżej przy opracowywaniu zasięgu populacji długojęzyczkowej. Natomiast w skład populacji grupy A wchodziły pszczoły przedstawiające trzy formy długości języczka: „krótki”, „średni” i „długi”.
Grupę A — Wschodnie Podlasie — reprezentowało 28 rojów z 21 pasiek położonych wzdłuż północno-wschodniej granicy państwa między 52°30’ i 54°30’ szerokości geograficznej. Średnie długości języczka tych rojów mieściły się w przedziale 6,076—6,324 mm. Wartości ich współczynników zmienności wahały się od V = 1,098 do V = 4,423 przy V = 2,314 dla całej grupy i były najwyższe w porównaniu do pozostałych grup i rojów (tab. 3).
Zarówno duża amplituda średnich długości języczka rojów, jak wysokie współczynniki zmienności, wskazywały na brak jednorodności w populacji. Prawie połowa zbadanych rojów (13) wykazywała dwuwierzchołkowe krzywe zmienności. Ten fakt dowodził występowania obok siebie w grupie A pszczół różniących się długością języczka w takim stopniu, że przy krzyżowaniach następowało rozczepienie tej cechy. Na bliższą charakterystykę zróżnicowania się długości języczka
strona 21w populacjach pszczół w rejonie Podlasia pozwalała analiza zmienności średnich z rojów. Objęto nią roje grupy A, części grupy B (dorzecze Narwi i Mazury) oraz z badań w 1956 r. (tab. 8). Te ostatnie, w liczbie 11 — terenowo odpowiadające grupie A, pochodziły w przeważającej większości z pow. Bielsk Podlaski. Średnie długości języczka z rojów dla tego rejonu mieściły się w przedziale między 5,96 mm a 6,36 mm. Nie wykazywały w szeregu statystycznym jednak układu normalnego; tworzyły trzy zgrupowania średnich: w klasach: 5,96—6,12 mm, 6,12—6,24 mm i powyżej 6,24 mm. Wskazywało to na udział w populacji trzech typów pszczół, różniących się długością języczka. Odpowiadały im formy: krótko-, średnio- i długojęzyczkowe.
Tabela 9
Długość języczka u populacji ras polskich i obcych Rüssellänge bei Populationen polnischer und ausländischer Bienenrassen
| Rasa (terytorium) / Rasse (Territorium) | Długość języczka w mm / Rüssellänge in mm | Pochodzenie danych / Literatur |
|---|---|---|
| Polska: | ||
| — Centralna i północno-wschodnia / Zentral- u. Nordostpolen | 6,10 | |
| — Podlasie Wschodnie i Pomorze Środkowe | 6,20—6,24 | |
| — Południowa (Karpaty) / Südpolen (Karpaty) | 6,33 | |
| Europa Północno-wschodnia (strefa lasów) / Nordosteuropa (Waldzone) | 5,73—6,28 | Chochłow (1916), Alpatov i Tiunin (1925), Mikhailoff (1926) |
| Północna i Centralna Francja / Nördliches u. zentrales Frankreich | 5,97 | Carlisle (1955) |
| Dania (pszczoła brunatna miejscowa) / Dänemark (braune Lokalrasse) | 6,24 | Henriksen i Hammer (1957) |
| Pszczoła stepowa (Rosja) / Steppenbiene (Russland) | 6,43 | Chochłow (1916) |
| Pszczoła kaukaska / Kaukasische Biene | 6,62—7,10; 7,23 | Skorikow (1929), Taranow (1955), Lekaszwili (1958) |
| Pszczoła kraińska / Balkan-Biene | 6,63—6,87 | Goetze (1940) |
| Pszczoła włoska / Italienische Biene | 6,59—6,80 | Goetze (1940) |
| Pszczoła z Grecji / Griechische Biene | 6,57 | Carlisle (1955) |
Formy krótkojęzyczkowe były reprezentowane przez część rojów badanych w 1956 roku i zbliżały się długością języczka do rojów z sąsiedniej grupy B w rejonie dorzecza Narwi. Tę formę długości języczka przedstawia krzywa nr 38/56 na ryc. 6. Krzywa nr 44a na tym wykresie ilustruje formę średniojęzyczkową. Wykazywała ją większość rojów badanych w latach 1957—59 i w roku 1956. Języczki „długie” (krzywa nr 18b) — średnie powyżej 6,24 mm — posiadała tylko część rojów.
Szereg statystyczny grupujący średnie długości języczka z rojów, których krzywe zmienności były dwuwierzchołkowe, układem upodabniał się do szeregu średnich
strona 22z rojów o krzywych zbliżonych do normalnych. Wynikało to prawdopodobnie z wielostronnej kombinacji krzyżowań między pszczołami o różnych formach długości języczka. Na istnienie takich kombinacji wskazywały krzywe zmienności w rojach, jak nr 46a, 17b, 45a, przedstawione na rycinie 6. Jedna z nich była nawet trzywierzchołkowa.
Średnie długości języczka rojów grupy A, mieszczące się w przedziale 6,076—6,324 mm, wartością swoją odpowiadały długościom języczka obliczonym z równania regresji Mikhailoffa (1926) dla tych szerokości geograficznych (ryc. 7). Szczególnie forma średniojęzyczkowa (6,12—6,24 mm), która wystąpiła najliczniej (tab. 8), prawie całkowicie pokrywała się z danymi obliczonymi teoretycznie. Tego rodzaju podobieństwa nie stwierdzono w grupie B, której roje wydawały się wykazywać pewne zależności długości języczka od szerokości geograficznej.
Teoretyczna długość języczka, obliczona według danych Mikhailoffa (1926), odnosiła się do pszczoły leśnej (Apis mellifica mellifica silvarum Scor., Skorikow 1929b). Zasięg tej rasy obejmował wschodnie tereny Polski (Goetze 1940). Prawdopodobnie rejon Podlasia był
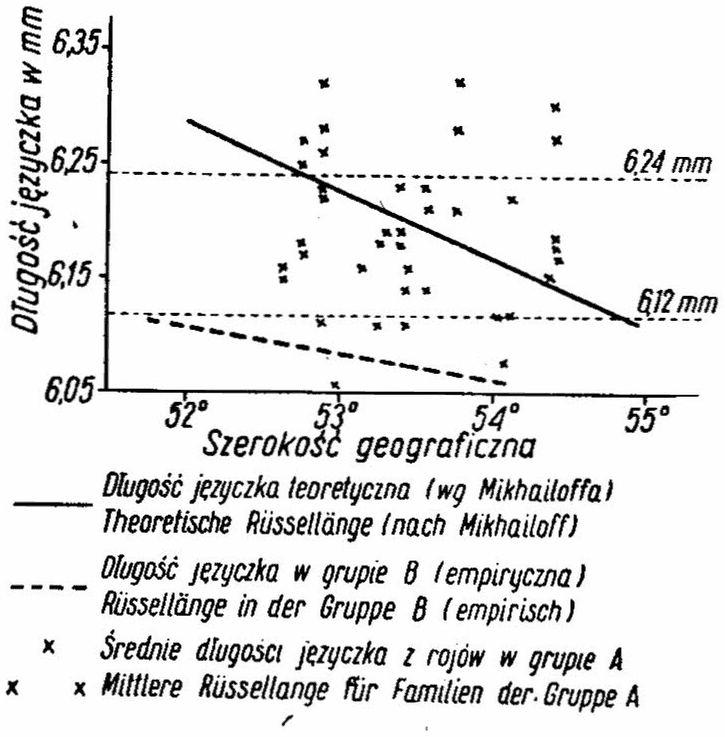
pod jego wpływem. Wydaje się, że ten typ pszczoły występował i dalej na południe; w rejonie Nadbużańskim, około 52° szerokości geograficznej, stwierdzono roje o średnich długościach języczka: x̄ = 6,203 ∓ 0,00954 mm, x̄ = 6,202 ∓ 0,00911 mm.
Rozmieszczenie w terenie badanych rojów nie pozwalało na określenie granicy zachodniego zasięgu długości języczka charakterystycznego dla grupy A. Na podstawie danych z 1956 roku można przypuszczać, że przekraczał on nieco w kierunku zachodnim południk 23°. Jednak i jeszcze dalej, w dorzeczu Narwi, występowały pojedyncze roje o średnich długościach języczka 6,12—6,16 mm.
DYSKUSJA
Zmienność długości języczka wewnątrz rojów badanego materiału, określana wielkością współczynnika zmienności (V), na ogół pokrywała się z wynikami badań innych autorów (Skorikow 1929a. Ałpatow 1948). Charakterystyczne było, że u znacznej liczby rojów współczynniki zmienności mieściły się poniżej V = 1,0 a u większości rojów nie przekraczały V = 2,0, podczas gdy według literatury ich wartość raczej grupowała się około V = 2—3. Wskazywało to na dużą jednorodność populacji wewnątrz rojów.
Natomiast poszczególne roje populacji pasieki czy grupy rojów wykazywały pod względem długości języczka duże zróżnicowanie. Potwierdzało to badania Alpatova i Tiunina (1925), Ałpatowa (1948), Henriksena i Hammera (1957), Boziny (1958), Koleśnikowa (1959) i innych, którzy zwrócili uwagę na dużą skalę zmienności rojowej wewnątrz rasy, typu pszczół, a nawet w obrębie jednej pasieki. Stosunkowo nieznaczna liczba punktów wykazała w wyniku analizy wariancji, jednorodność populacji. Wśród tych punktów nie zajęły lepszej pozycji punkty, na które składały się roje z tych samych pasiek.
Zróżnicowanie więc populacji według długości języczka, jakie można było statystycznie udowodnić, zachodziło już w obrębie pasieki. W wielu wypadkach zastosowanie analizy zmienności przy badaniu w rojach po około n = 100 osobników, pozwalało wykazać istotność różnicy pomiędzy średnimi z rojów nawet, gdy ona była rzędu 0,01—0,02 mm. Szanse wykazania niejednorodności populacji pasiek (punktu) czy grupy rojów wzrastały w miarę zmniejszania się stopnia zmienności wewnątrz rojowej. Roje, które wskazywały na większą „czystość” genetypu — małe współczynniki zmienności — tworzyły w opracowaniach statystycznych populacje grup mniej wyrównane niż roje o wysokich współczynnikach zmienności, przy jednakowym zróżnicowaniu średnich długości języczka z rojów. Należy przypuszczać, że roje poszczególnych pasiek czy z najbliższych okolic były mniej lub bardziej spokrewnione. Stąd też mniejsza zmienność wewnątrz rojów wskazywała na większy stopień ustalenia genotypu nie tylko populacji roju, ale i populacji pasieki. Dlatego przy oznaczaniu przynależności poszczególnych rojów do określonego typu czy formy długości języczka trudno byłoby opierać się wyłącznie na wynikach analizy wariancji. Decydowała tu raczej wartość średnich długości jezyczka z rojów i charakter zmienności w odniesieniu do określonego terenu. Grupa rojów B (forma krótkojęzyczkowa) nie przedstawiała wcale mniejszego wyrównania w porównaniu do grupy C (forma długojęzyczkowa), pomimo że w tej ostatniej w przeciwieństwie do pierwszej nie stwierdzono istotnych różnic w długości języczka pomiędzy punktami. Wielkość amplitudy średnich z rojów tak w grupie B, jak i C była podobna; obie te grupy różniły się tylko — oczywiście poza bezwzględną
strona 24wartością długości języczka — wielkością współczynników zmienności. U rojów grupy C były one znacznie wyższe.
Wydaje się, że dobrym określeniem jednorodności populacji było wyrażenie średniej zmienności długości języczka rojów w procentach zmienności populacji traktowanej jako jednorodna (Alpatov i Tiunin 1925, Ałpatow 1948). Uzyskanie — obliczonych w ten sposób — wysokich wskaźników, przy niskich współczynnikach zmienności, świadczyło dodatnio o stopniu jednorodności populacji.
Zróżnicowanie się długości języczka wewnątrz rojów lub grupy rojów w pewnej części wynikało z oddziaływania środowiska (Mikhailoff 1927a, b, c, 1932, Goetze 1930, Skorikow 1930a, b, c, Henriksen i Hammer 1957). Jednak duże różnice w długości języczka, jakie w niektórych wypadkach stwierdzono pomiędzy rojami składającymi się na populacje pasiek lub grup rojów na większych obszarach terytorialnych, były niewątpliwie natury dziedzicznej i przedstawiały wyraz wymieszania ras względnie typów pszczół. Stefański (1957) uważał, że na terenie Polski nie może być mowy o czystych miejscowych populacjach; wszystkie pszczoły pochodzą z krzyżówek międzyrasowych. Długość języczka typu krainki spotykał on zarówno na południu, jak i północy kraju. Bezsprzecznie trudno twierdzić o istnieniu okręgów terytorialnych nasiedlonych wyłącznie jednorodną populacją miejscowych pszczół. Jednakże można doszukać się — do czego upoważniają omówione w niniejszej pracy badania — rejonów mniej lub więcej „zanieczyszczonych” cechami obcej rasy, ale wykazujących wyraźną przewagę formy języczka, które należałoby przypisać pszczołom „miejscowym”. Do takich rejonów bez wątpienia należy np. północno-wschodnia część kraju i Góry Świętokrzyskie, które są nasiedlone przez populacje pszczół form krótkojęzyczkowych, a nawet Beskidy Zachodnie i Pomorze Środkowe o formach pszczół długo-i średniojęzyczkowych.
Wystąpienie obok siebie różnych form długości języczka w pewnym stopniu mogło być wynikiem naturalnej migracji pszczół różnych podgatunków i ras, których zasięgi terytorialne obejmowały ziemie Polski. Prowadziło to do rozpowszechniania w „graniczących” populacjach długości języczka właściwych poszczególnych rasom, jak i też do powstania odrębnych, pośrednich form jego długości, co zwykle w podobnych wypadkach zachodzi (Goetze 1940). Być może, że niektóre krzyżówki, jakie stwierdzono w wyniku analizy zmienności, powstały na tym tle. Odnosi się to szczególnie do rejonu Karpat i Podgórza oraz Podlasia. Prawdopodobnie jednak większość krzyżówek, na które natrafiono, była skutkiem importowania obcych ras.
Duże zróżnicowanie populacji według długości języczka na zachód od Wisły należy tłumaczyć przerzutami tam pszczół z innych dzielnic Polski oraz wpływem importu. Szczególnie hodowcy na Ziemiach Zachodnich sprowadzali chętnie obce rasy (Goetze 1930). Początki importu matek sięgały pierwszej połowy XIX stulecia, kiedy to ks. Jan Dzierżoń sprowadził włoszki. Zadziwiająca była mnogość ras i typów pszczół, jakie trafiały na Ziemie Zachodnie: włoszka, krainka, cypryjka, Nigra. Dlatego spotyka się tam obok siebie różnorodne formy długości języczka.
Większości jednak badanych rojów pszczół na Ziemiach Zachodnich wykazała się przynależnością do form krótkojęzyczkowych, która charakteryzowała populacje centralnej i północno-wschodniej Polski. Wystąpienie tej formy długości języczka na ziemiach Polski terenowo odpowiadało zasięgowi pszczoły środkowo-europejskiej (Apis mellifica mellifica L., Goetze 1940). Przeto języczek „krótki”byłby właściwością cechującą populacje pszczół należące do tej rasy. Podobnie też z oznaczeniami Goetzego (1940) dla terytorialnego zasięgu pszczoły kraińskiej (Apis mellifica carnica Pollm.) pokrywało się rozmieszczenie populacji
strona 25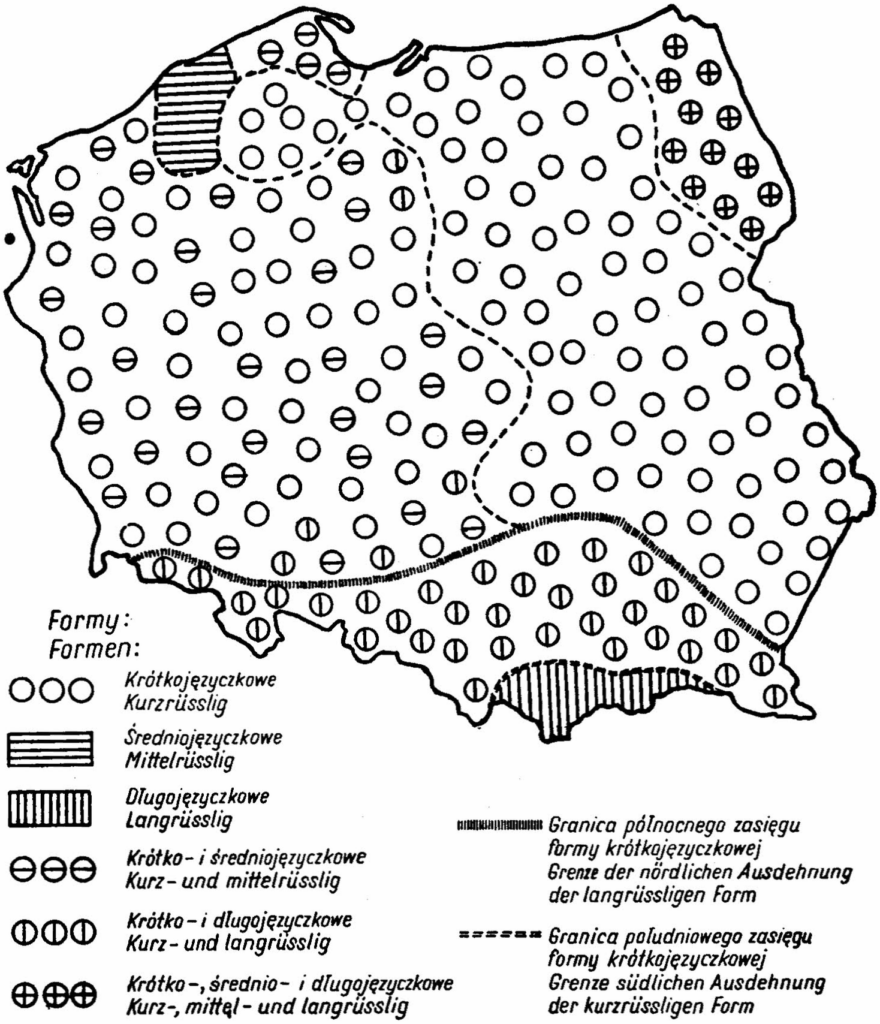
Formy: / Formen: ○○○ Krótkojęzyczkowe / Kurzrüsslig (kreskowanie poziome) Średniojęzyczkowe / Mittelrüsslig (kreskowanie pionowe) Długojęzyczkowe / Langrüsslig ⊖⊖⊖ Krótko- i średniojęzyczkowe / Kurz- und mittelrüsslig ⦶⦶⦶ Krótko- i długojęzyczkowe / Kurz- und langrüsslig ⊕⊕⊕ Krótko-, średnio- i długojęzyczkowe / Kurz-, mittęl- und langrüsslig (linia kreskowana gęsto) Granica północnego zasięgu formy krótkojęzyczkowej / Grenze der nördlichen Ausdehnung der langrüssligen Form (linia przerywana) Granica południowego zasięgu formy krótkojęzyczkowej / Grenze südlichen Ausdehnung der kurzrüssligen Form
Ryc. 8. Oznaczenie zasięgów populacji pszczół różniących się długością języczka
Abb. 8. Erfmittlung der Verbreitung von Bienenpopulationen unterschiedliecher Rüssellänge
formy długojęzyczkowej w południowej części kraju. Granice jej północnego zasięgu, którą wyznaczała obecność w populacji form długojęzyczkowych, na terenie Polski na ogół były zgodne z określeniami Goetzego. Formy długojęzyczkowe, jakie stwierdzono na południu, należy więc przypisać populacjom, które kształtowały się pod wpływem Krainki. O odrębności tych populacji według długości języczka od Apis mellifica mellifica L., którą reprezentowały pszczoły formy krótkojęzyczkowej, wskazywały na tym terenie, mieszanina i krzyżówki oraz formy pośrednie, możliwe
strona 26że już ustalone, długości języczka, które to zjawisko występuje zawsze na granicy terytorialnego zasięgu ras (Goetze 1940). O istnieniu obok siebie różnych ras pszczół na Podgórzu w południowo-wschodniej części kraju wspomina też Mendrala (1948). Wymienił on krainkę odmiany Sklenar — Szestauber i pszczołę krajową z Dobrej. Analizując ich cechy morfologiczne (ale nie długość języczka) Mendrala doszedł do wniosku, że pszczołę z Dobrej należy uważać za krajową z domieszką krwi krainki w dawniejszych pokoleniach.
O ile formy długo- i krótkojęzyczkowe wydawały się, w udokumentowaniu geograficznym, statystycznym i rasowym nie budzić wątpliwości, to formy średniojęzyczkowe trudniej było określić i wykazać genezę ich występowania ze względu na zbyt szczupły materiał. Formy średniojęzyczkowe przejawiły się najliczniej na Pomorzu (grupa H) i Podlasiu (grupa A), Na Podlasiu wchodziły one, w przeważającej ilościowo części, w skład populacji, której analiza wykazała występowanie obok siebie trzech form długości języczka. Języczek „krótki”, jako jedna z form tam stwierdzonych, niewątpliwie należy odnieść do wpływów populacji krótkojęzyczkowych — Apis mellifica mellifica L. — z nimi sąsiadujących. Natomiast obecność na Podlasiu form długojęzyczkowych niełatwo było wytłumaczyć. Nie należało ich wiązać z pszczołami długojęzyczkowymi z południowej Polski, jakkolwiek nie różniły się one długością języczka. Nie było jednak wykluczone, że mogły stamtąd, drogą przerzutów, trafić roje długojęzyczkowe na Podlasie szczególnie do Puszczy Białowieskiej. Jednakowoż prawdopodobnie główną rolę odegrały importy matek włoszek i kaukaskich.
Formy średniojęzyczkowe odpowiadały długością języczka pszczołom z północno-wschodniej Europy i niewątpliwie różniły się od populacji krótkojęzyczkowych, które zaliczono do Apis mellifica mellifica L. Długość języczka teoretyczna, obliczona wg wzoru Mikhailoffa (1926) dla szerokości geograficznych Podlasia, pokrywała się w zupełności z długością języczka, jaką tam stwierdzono u form średniojęzyczkowych. Dane Mikhailoffa odnosiły się do rasy Apis mellifica mellifica silvarum Scor. (pszczoła leśna), którą to — przede wszystkim na podstawie długości języczka i jej zmienności geograficznej — wyodrębnił Skorikow (1929b). Granica zachodniego zasięgu pszczoły leśnej nie została bliżej określona; dosięgała ona jednak wschodnich terenów Polski (Goetze 1940 i inni). Sądząc według zróżnicowania długości języczka, Podlasie było strefą wzajemnego oddziaływania Apis mellifica mellifica L. i Apis mellifica mellifica silvarum Scor. Dlatego też występowanie populacji form średniojęzyczkowych na Podlasiu i Pomorzu wydawało się mówić o różnym na ziemiach Polski pochodzeniu pszczół o długości języczka „średniej”. Być mogło, że formy średniojęzyczkowe Pomorza — nie wykluczone że i Podlasia — powstały wtórnie na skutek domieszki krwi innych ras. Populacje pszczół na Ziemiach Zachodnich kształtowały się pod wpływem południowych pszczół przede wszystkim Apis mellifica carnica Pollm. (Goetze 1930, Ałpatow 1948). Możliwe, że roje o języczku „średnim” trafiały też tam w wyniku przerzutów ze wschodu.
Należy przypuszczać, że pewną rolę w formowaniu się populacji pszczół na Wybrzeżu, Żuławach i Pomorzu odegrała pszczoła wrzosowa (Apis mellifica mellifica lechceni B.—R.). Nie znamy jednak bliżej określonego jej zasięgu na terenie Polski, ani też nie mamy opracowań biometrycznych, w omawianym wypadku długości języczka, które pozwoliłyby na odróżnienie jej od Apis mellifica mellifica L. Jeżeli przyjąć dane odnośnie pszczoły duńskiej (Henriksen i Hammer 1957) za charakterystyczne dla pszczoły wrzosowej, w której zasięgu znajdował się Półwysep Jutlandzki (Goetze 1940), to długością języczka odpowiadała
strona 27ona omawianym w niniejszej pracy formom średniojęzyczkowym. Podobnie też do formy średniojęzyczkowej należały pszczoły z linii Żuławka, która była określona jako pszczoła wrzosowa. Na Wybrzeżu (grupa J) i Pomorzu (grupa H) spotykało się często u pszczół języczki tej długości.
WNIOSKI
Opracowanie wyników pozwoliło na wyciągnięcie następujących wniosków:
- Stwierdzono w 80% punktach (pasiek), składających się z 3 rojów każdy, niejednorodność populacji według długości języczka. W znacznej większości każdy badany rój w pasiece i pasiekach charakteryzowała właściwa jemu średnia długość języczka, odróżniająca go od innych rojów. Zróżnicowanie średnich długości języczka u rojów w pasiece (punkcie) prawie dorównywało zróżnicowaniu średnich z rojów w pasiekach najbliższej okolicy.
- Zróżnicowanie średnich długości języczka rojów w punktach (pasiekach) i grupach punktów było większe w populacjach pszczół na zachód od Wisły. Populacje na wschód od Wisły wykazywały się wyrównaniem zarówno w pasiekach, jak i większych zasięgach terytorialnych. Posiadały też najniższe z badanych rojów współczynniki zmienności.
- Na podstawie rozkładu geograficznego wartości średnich długości języczka i ich zmienności oraz zasięgów terytorialnych wyróżniono w populacjach miejscowych trzy formy długości języczka: formę krótkojęzyczkową, średniojęzyczkową i długojęzyczkową. Odpowiadały im w przybliżeniu wymiary długości języczków: 5,96—6,16 mm; 6,15—6,27 mm; 6,24—6,48 mm.
- Obszary terytorialne nasiedlone przez populacje o wyróżnionych formach długości języczka znajdowały się w zasięgach ras: a) formy krótkojęzyczkowe — pszczoła środkowo-europejska (Apis mellifica mellifica L.) — Polska Zachodnia, Centralna i Północno-wschodnia; b) forma średniojęzyczkowa — pszczoła leśna (Apis mellifica mellifica silvarum Scor.) — Podlasie Wschodnie — oraz prawdopodobnie pszczoła wrzosowa (Apis mellifica mellifica lechceni B.—R.) na Wybrzeżu, Żuławach i Pomorzu; c) forma długojęzyczkowa — pszczoła kraińska (Apis mellifica carnica Pollm.) — Południowa Polska.
- Największy obszar terytorialny i dużą jednolitość oraz nieznaczne wymieszanie z innymi formami długości języczka wykazały populacje formy krótkojęzyczkowej w rejonie: Wyżyna Lubelska, Podlasie Południowe i Zachodnie oraz Mazury. Ta forma długości języczka wystąpiła wyraźnie również u pszczół w Górach Świętokrzyskich i na Pomorzu w Borach Tucholskich.
- Na Ziemiach Zachodnich stwierdzono występowanie obok siebie w populacjach pasiek i grup rojów trzy oznaczone formy długości języczka, z liczbową przewagą języczka „krótkiego”. W południowych regionach Dolnego Śląska i w Sudetach grupowały się roje o formach długojęzyczkowych. Na Pomorzu Środkowym grupa rojów tworzyła wyrównaną populację formy średniojęzyczkowej.
- Dla celów praktycznych przy kontynuowaniu prac hodowlanych w oparciu o miejscowe populacje pszczół, terytorialne zasięgi oddziaływania wyróżnionych form długości języczka można określić, jak następuje:
a) forma krótkojęzyczkowa — Północno-wschodnia i Centralna Polska (Wyżyna Lubelska, Południowo-zachodnie Podlasie, Pojezierze Mazurskie, Góry Świętokrzyskie, Mazowsze i część Wielkopolski);
b) forma średniojęzyczkowa: 1. Podlasie Wschodnie oraz 2. północno-zachodnia
strona 28część Polski (Żuławy, Pomorze, część Wielkopolski, Ziemia Lubuska, północne regiony Dolnego Śląska);
c) forma długojęzyczkowa — Polska Południowa (dorzecze Sanu, Karpaty, Małopolska, część południowa Dolnego Śląska, Sudety).
- * *
Pragnę wyrazić tu wdzięczność Panu Doc. dr Leonowi Bornusowi — za umożliwienie dokonania niniejszej pracy oraz cenne rady i wskazówki, a także Panu Prof. dr Antoniemu Demianowiczowi i Panu mgr Kazimierzowi Szczepańskiemu — za życzliwe i chętne udzielanie swoich wiadomości, które dopomogły mi w opracowaniu tak obszernego zagadnienia. Ponadto składam podziękowanie Rolniczej Służbie Zootechnicznej i szerokiej rzeszy pszczelarzy, którzy wzięli udział w zbieraniu i dostarczaniu materiału do badań.
LITERATURA
Alpatov W. W. i Tiunin F. A. (1925) — Beiträge zur Kenntniss der Variabilität der Rüssellänge bei der Honigbiene. Ruskij Zoołog. Żurnał, 5 (4): 79—102
Ałpatow W. W. (,1948). — Porody miedonosnoj pczeły. Moskwa
Ałpatow W. W. (1948) — Porody miedonosnoj pczeły w SSSR i ich osobiennosti. XVII Meżdunarodnyj Kongres po pczełowoctwu: 49—56
Awietisjan G. A. (1958) — Niekotoryje woprosy ewolucji, rozprostranienija, ochrany i ispolzowanija widow i porod pczeł. XVII Meżdunarodnyj Kongr. po pczeł.: 57—64
Bornus L. (1960b) — Pomiary wielkości pszczoły i niektórych części jej ciała. Pszczel. Zesz. Nauk., 4 (3—4) 167—182
Bozina E. D. (1958) — Izmienczywost’ dliny chobotka raznych grupp pczeł. Pczełowodctwo 35 (2): 25—28
Carlisle E. (1955) — Biometrical invenstigation of some European and other races of honeybees. Bee World 36 (2): 41—45
Chalifman I. A. (1957) — Die vegetative Hybridisation der Bienen. Leipz. Bienenzt. 71: 16—19
Chochłow W. P. (1916) — Untersuchungen über Rüssellänge der Arbeiterinnen der Honigbiene. Streszczenie w Archiv f. Bienen. (1926), 7: 35—36
Demianowicz A. (1957) — O dziedziczeniu cech rodziców u pszczół. Pszczel. Zesz. Nauk. 1 (3): 97—103
Henriksen C. C. i Hammer O. (1957) — Om et forsog pa at fremavle langtungede bier. Fra Statens biavlsforsog, Hillerod.
Goetze G. (1930) — Variabilitäts- und Züchtungsstudien an der Honigbiene mit besonderer Berücksichtigung der Langrüsseligkeit. Archiv f. Bienen. 11: 185—275
Goetze G. (1940) — Die beste Biene. Liedloff, Loth u. Michaelis, Leipzig
Grout R. A. (1937) — The Influence of Size of Brood Cell Upon the Size and Variability of the Honeybee (Apis mellifera L.). Resear. Bull., 218 : 258—280. Iowa
Koleśnikow A. N. (1959) — Izmienienija priznakow w potomstwie pczelinoj matki pośle pieresadki jeja w czużuju siemju. Pczełowodctwo 36 (7): 24—28
Lekaszwili M. A. (1958) — Osnownyje
strona 29populacji sieroj gornoj gruzinskoj pczeły. Pczełowodctwo, 35 (7): 11—16
Mendrala S. (1948) — Obserwacja pszczół Strefy Podgórskiej. Pasieka, (3): 65—67
Meyerhoff G. (1957) — Ändern sich die Rassenmerkmale durch den Einfluss fremden Ammenbienen? Leipz. Bienenzt., 71 : 157—159
Mikhailoff A. S. (1926) — Über eine lineare Korrelation zwischen der Rüssellänge der Honigbiene und der geographischen Breite im ebenem europäischen Russland. Archiv f. Bienen. 7: 28—33
Mikhailoff A. S. (1927a) — Ueber die Saison-Variabilität der Honigbiene. Archiv f. Bienen., 8: 304—312
Mikhailoff A. S. (1927b) — Der Einfluss einiger Lebenslagefaktoren auf die Variabilität der Honigbiene (Apis mellifica L.). Archiv f. Bienen., 8 : 289—304
Mikhailoff A. S. (1927c) — Ueber den Zusammenhang zwischen dem Umfang der Bienenzelle und dem Umfang des Bienenkörpers und seiner Teile. Archiv f. Bienen., 8: 313—321
Mikhailoff A. S. (1932) — Weitere Untersuchungen über die phänotypische Variabilität der Honigbiene (Apis mellifica L.) in Verbindung mit der Frage der Bienenrassen. Archiv f. Bienen., 12: 315—329
Natkaniec E. (1948) — Z Dolnego Śląska. Pasieka, (3): 81—84
Skorikow A. S. (1929a) — K poznaniu porod kawkaskich pczeł (Gen. Apis). Izw. Otd. Prikł. Entomoł., 4 (1): 1—60
Skorikow A. S. (1929b) — Nowyje osnowanija dla rewizii roda Apis L. Izw. Otd. Prikł. Entomoł., 4 (1): 249—270
Skorikow A. S. (1930a) — Wospitanje pczełami czużowo razpłoda.Izw. Otd. Prikł. Entomoł., 4 (2): 503—513
Skorikow A. S. (1930b) — Kak izmieniajetsia dlinnochobotnost’ mingrelsko pczeły wnie jej rodiny. Izw. Otd. Prikł. Entomoł., 4 (2): 515—523
Skorikow A. S. (1930c) — Indiwidualnaja izmienczywost’ dliny chobotka w prediełach semi. Izw. Otd. Prikł. Entomoł., 4 (2): 525—548
Smaragdowa N. P. (1958) — Morfofizjologiczeskoje zbliżenije miedonosnoj pczeły i krasnowo klewera Agrobiołogia, (2): 37—41
Snodgrass R. E. (1956) — Anatomy of the Honey Bee. Comstock Pub. Ass. Ithaca, New York
Stefański S. (1957) — O hodowli pszczół. Pszczelarstwo, 8: 357—360
Taranow G. F. (1955) — Rabota po sozdanju nowoj porodnoj gruppy. pczeł w kołchozach Riazanskoj obłasti. Trudy Nauczno-Issledowatelskowo Instituta Pczełowodstwa, Moskwa: 7—47
Wołosewicz A. P. (1958) — Ispytanje pomiesiej sierych gornych gruzinskich i dalniewostocznych pczeł. Pczełowodctwo, 35 (5): 23—28
ИЗМЕНЧИВОСТЬ ДЛИНЫ ХОБОТКА У ПОЛЬСКОЙ МЕСТНОЙ ПЧЕЛЫ
М. Громиш
Резюме
Сделано измерения длины хоботка рабочих пчел, взятых из 389 пчелосемей в 211 местностях Польши. Средняя длина хоботка у изучаемых пчелосемей колебалась в границах от 5,947 мм до 6,497 мм. Соответствующие им коэффициенты изменчивости — V колебались от 0,387% до 4,423% однако в большинстве случаев не превышали 2,500%.
strona 30Вариационный анализ материала по фишеру доказывает, что статистически существенное различие между средней длиной хоботка для семей встречается уже в пределах одной пасеки.
На основании анализа групп пчелосемей выделено среди поголовиа местных пчел в Польше три формы с разной длиной хоботка: коротким (5,96—6,16 мм), средним (6,15—27 мм) и длинным (6,24—6,48 мм).
Популяция с коротким хоботком, выказывающая большую однородность занимала северовосточную часть Польши, Горы Св. Креста и восточную Померанию — раион распространения породы Apis mellifica mellifica mellifica L и имела длину хоботка соответствующую этой породе.
Популяция с длинным хоботком выступила на юге Польши, в Карпатах. Вероятно находится она под сильным влиянием Apis mellifica carnica Pollm. Семии с длинными хоботками поподались и на север от Карпат, до подножий Гор Св. Креста, а также в Судетах и южной части Нижней Силезии, там однако выступали они главным образом рядом с коротко-хоботковой формой. Форме со средним хоботком соответствовала только популяция Померании. Единичные семии этой формы встречались также и в восточной Померании (раион устья Вислы). Происхождение этой популяции связано должно быть с породой Apis mellifica mellifica lechceni B.—R. Эта форма выступала также в преимущественном числе рядом с иными формами в популяции восточной части Подлясия. Надо предполагать, что этот раион находится под влиянием Apis mellifica mellifica silvarum Scor. Популяция западной части Польши обнаруживала в отношении длины хоботка большое разнообразие однако с преобладанием коротких хоботков.
DIE VARIABILITÄT DER RÜSSELLÄNGE DER BIENEN IN POLEN
Michał Gromisz
Zusammenfassung
Es wurde die Rüssellänge von Proben aus 389 Familien, die aus 211 verschiedenen Orten stammten, untersucht. Die mittlere Rüssellänge der untersuchten Familien bewegte sich in den Grenzen von 5,947 bis 6,497 mm. Die entsprechenden Variationskoeffizienten schwankten zwischen V = 0,387 und V = 4,423, überschritten jedoch im Allgemeinen nicht V = 2,500%.
Die durchgeführte Varianzsanalyse zeigte, dass man schon innerhalb eines Bienenstandes die Differenzierung der mittleren Rüssellänge statistisch sichern kann.
Auf Grund der Analyse konnten in den lokalen Bienenpopulationen 3 Formen der Rüssellänge festgestellt werden. Diese Formen wurden folgendermassen fixiert: „kurzrüsslig” (5,96—6,16 mm), „mittelrüsslig” (6,15—6,27 mm) und „langrüsslig” (6,24—6,48 mm).
Die Populationen der kurzrüssligen Form zeigten eine grosse Ausgeglichenheit und nahmen die nordöstlichen Gebiete Polens, Góry Świętokrzyskie und Ostpommern ein. Diese Form liegt in der Einflusszone von Apis mellifica mellifica L., mit der sie auch eine gemeinsame Rüssellänge hat.
strona 31Die langrüssligen Formen traten im Süden Polens in den Karpaten auf. Für sie nimmt man einen Einfluss von Apis mellifica carnica Pollm, an. Langrüsslige Bienenformen wurden durch nördlich der Karpaten bis zu dem Gebiet Góry Świętokrzyskie aber auch in den Sudeten und dem südlichen Teil Niederschlesiens- wo sie allerdings meistens mit der kurzüssligen Form vermengt waren- angetroffen.
Der mittelrüssligen Form entsprachen nur die Populationen aus Zentralpommern. Einzelne Familien mit mittlerem Rüssel traf man nur noch an der Küste und im Gebiete Żuławy. Höchstwahrscheinlich stammten sie von Apis mellifica mellifica lechceni B.-R. ab. Diese Form trat auch am meisten im östlichen Teil von Podlasie, bei gleichzeitiger Anwesenheit anderer Formen, auf. Es wird angenommen, dass das auf den Einfluss von Apis mellifica mellifica silvarum Scor. auf diesem Gebiete zurückzuführen sei.
Die Population der Westgebiete wiesen eine grosse Vermengung in Bezug auf die Rüssellänge auf, wobei die kurzrüssligen Formen überwogen.
Errata — błędy druku znalezione podczas digitalizacji
- s. 2: „współczynnik korekcji” → współczynnik korelacji
- s. 3: „krainską” → kraińską
- s. 5: „Wetzer” → Wetzlar
- s. 5: „szkieka” → szkiełka
- s. 6: „87-miu” → 85-ciu
- s. 6: „w 14 istotne” → w 13 istotne
- s. 6: „w 73 wysoko istotne” → w 72 wysoko istotne
- s. 7, tab. 2, wiersz K, liczba rojów: „13″ → 14
- s. 13: „Gausa” → Gaussa
- s. 13, tab. 7, główka (2×): „6,34″ → 6,32
- s. 14, ryc. 3: „krótkojęzyczkawa” → krótkojęzyczkowa
- s. 15: „Wspóczynniki” → Współczynniki
- s. 15, wskaźniki grupy K: „(95,[?]% i 9[?],[?]5%, tab. 5)” → (89,24% i 99,15%, tab. 5)
- s. 19: „przejął” → przyjął
- s. 22, ryc. 7: „Rüssellange” → Rüssellänge
- s. 23: „genetypu” → genotypu
- s. 23: „jezyczka” → języczka
- s. 24: „poszczególnych rasom” → poszczególnym rasom
- s. 24: „Większości jednak” → Większość jednak
- s. 25, ryc. 8: „Granica północnego zasięgu formy krótkojęzyczkowej” → Granica północnego zasięgu formy długojęzyczkowej
- s. 25, ryc. 8: „mittęl” → mittel
- s. 25, ryc. 8: „Erfmittlung” → Ermittlung
- s. 25, ryc. 8: „unterschiedliecher” → unterschiedlicher
- s. 28: „invenstigation” → investigation
- s. 30, streszczenie: „фишеру” → Фишеру
- s. 30, streszczenie: „поголовиа” → поголовья
- s. 30, streszczenie: „6,15—27 мм” → 6,15—6,27 мм
- s. 30, streszczenie: „mellifica mellifica mellifica L” → mellifica mellifica L.
- s. 30, streszczenie (3×): „раион” → район
- s. 30, streszczenie: „Семии” → Семьи
- s. 30, streszczenie: „семии” → семьи
- s. 30, streszczenie: „поподались” → попадались
- s. 30, Zusammenfassung: „Varianzsanalyse” → Varianzanalyse
- s. 31: „kurzüssligen” → kurzrüssligen