

WPŁYW PSZCZOŁY KAUKASKIEJ NA KSZTAŁTOWANIE SIĘ CECH POGŁOWIA MIEJSCOWEGO
tekst: Michał Gromisz
Pszczelnicze Zeszyty Naukowe, Rok XXII, 1978 — Michał Gromisz
strona 95PSZCZELNICZE ZESZYTY NAUKOWE ROK XXII 1978
Michał Gromisz
Oddział Pszczelnictwa IS
WPROWADZENIE
Do podniesienia produkcji pszczelarskiej można zmierzać różnymi drogami. Jedną z nich jest wprowadzanie obcych ras pszczół. Sposób to stosunkowo najłatwiejszy i przynoszący zwłaszcza na początku dobre efekty. W nowych warunkach środowiskowych i z braku konkurencji pszczoły obcych ras i ich mieszańce wypadają zrazu raczej znakomicie na tle nieselekcjonowanego pogłowia miejscowego. Toteż niektórzy pszczelarze starają się za wszelką cenę zdobyć matki obcych ras, przede wszystkim do reprodukcji.
W ostatnich latach import matek pszczelich kształtuje się w naszym kraju w granicach 1000—2000 sztuk rocznie. Jest to mniej więcej od 3% do 15% tej liczby matek, jakie są corocznie rozprowadzane drogą oficjalną. Na ogólną liczbę, 1,2—1,4 miliona, pni w kraju łączna liczba oferowanych na sprzedaż matek importowanych i krajowych jest bardzo mała. Według naszych badań 8,2% matek, które pszczelarze wymieniają każdego sezonu, pochodzi z zakupu (Gromisz 1975). Szacunek ten został dokonany na podstawie danych z pasiek lepiej prowadzonych niż przeciętnie, więc ogólna sytuacja w kraju jest pod tym względem o wiele gorsza. Matki z kupna trafiają zatem stosunkowo do nielicznych pszczelarzy, którzy starają się prowadzić pewną działalność selekcyjną. Lecz w okolicy ich pasiek utrzymuje pszczoły wielu innych pszczelarzy—sąsiadów ograniczających na ogół zabiegi hodowlane do akceptowania losowej reprodukcji pogłowia swoich pasiek. Strukturę genetyczną takich populacji może silnie zmieniać wprowadzanie obcych ras pszczół w zasięgu lotu trutni i matek. W organizowaniu gospodarki pasiecznej w kraju z tym trzeba się liczyć.
Celem niniejszej pracy było określenie rozmiarów i skutków wpływu pszczół rasy kaukaskiej na kształtowanie się cech pszczół populacji rodzimej, rozmnażającej się losowo.
strona 96MATERIAŁ I METODA
Doświadczenie zlokalizowano w pasiece Oddziału Pszczelnictwa IS w Puławach, gdzie w okolicy utrzymywano pszczołę rodzimą, należącą do podgatunku Apis mellifica mellifica (pszczoła środkowoeuropejska). W roku 1968 Instytut wprowadził do swoich pasiek większą partię matek (30 sztuk) podgatunku Apis mellifica caucasica (pszczoła kaukaska), importowanych z ZSRR. W następnych latach wzrastał w pasiekach udział matek tej rasy pszczół, zarówno z importu, jak i z reprodukcji własnej, przede wszystkim w celu uzyskania mieszańców użytkowych. Okoliczni pszczelarze poszli w ślady Instytutu i zaczęli również wprowadzać do swoich pasiek pszczoły kaukaskie.
Doświadczenie założono w 1969 roku i prowadzono do roku 1976. Jako biekt obserwacji wybrano pszczoły środkowoeuropejskie linii Asta, hodowli Aleksandra Stasińskiego. Od dwóch matek tej linii, jako pokolenia rodzicielskiego (P) dokonano dalszej reprodukcji, otrzymując następne pokolenie matek (F1). Od tej generacji matek uzyskano dalsze pokolenie F2, a następnie kolejno: F3, F4 i F5. Wszystkie matki tych kolejnych pokoleń były unasieniane w warunkach naturalnych w pasiece. Miały więc one możność kojarzenia się losowego z trutniami, jakie występowały w okolicznych pasiekach, a więc należących do podgatunków A. m. mellifica, A. m. caucasica i różnych stopni ich mieszańców. Potomstwo matek doświadczalnych mogło więc pod względem struktury genetycznej przedstawiać dużą różnorodność, w zależności od tego ile i jakiej rasy trutnie zostały ich ojcami. Tę różnorodność mogły przejawiać także genotypy matek począwszy od pokolenia F2 do pokolenia F5.
Zróżnicowanie genetyczne populacji uzewnętrznia się w fenotypie pszczół, jako efekt działania genów. Zmienność fenotypowa określa zatem różnice genetyczne. Charakteryzowano ją długością języczka u pszczół—robotnic. Wybrano tę cechę ze względu na dużą jej wartość taksonomiczną, pośrednie ilościowe dziedziczenie się i wysoką odziedziczalność (El Banby 1966, Gromisz 1967, Bornus, Gromisz, Nowakowski 1976).
Próbki pszczół—robotnic do badań utrwalono i następnie dokonywano pomiarów długości języczka według metodyki przyjętej w Oddziale Pszczelnictwa IS w tego rodzaju badaniach (Gromisz 1961). Liczba (a) próbek (rojów) i liczba (b) badanych pszczół były następujące: (str. 97)
Obliczenia matematyczno-statystyczne oraz uporządkowanie danych liczbowych przeprowadzono według następującego sposobu i schematu:
- pomiary długości języczka uporządkowano w szeregach rozdzielczych, przyjmując wartości klasy równą 0,12 mm (Gromisz 1961), częstotliwość w poszczególnych klasach podawano w procentach ze względu na niejednakowe liczby rojów i różną liczebność osobników badanych w rojach (od 30 do 100 sztuk);
| a | b | |
|---|---|---|
| linia Asta (1969) | 9 | 270 |
| pszczoły kaukaskie (1968) | 17 | 530 |
| populacja w okolicy Puław (1969) | 21 | 630 |
| populacja matek: F1 | 22 | 1627 |
| F2 | 16 | 1990 |
| F3 | 12 | 911 |
| F4 | 22 | 880 |
| F5 | 15 | 800 |
| Razem | 134 | 7538 |
- obliczono średnie wartości (x̄) cechy dla rojów oraz w miarę potrzeby średnie wartości cechy dla populacji, jako zbioru rojów (średnich arytmetycznych z rojów);
- obliczono wskaźniki podobieństwa (y) rojów (średnich z rojów) według wzoru:
y = |x — x̄| : S
gdzie x symbolizuje wartość średniej badanego roju, x̄ — wartość długości języczka równą 6,312 mm (wartość środkowa klasy 6,27—6,35 mm w szeregu rozdzielczym); S — standardowe odchylenie średnich z rojów w populacji rodzimych pszczół w okolicy Puław; wyboru tych parametrów, zwłaszcza wartości x̄, dokonano przede wszystkim ze względów technicznych (ułatwienia w opracowaniu materiału liczbowego);
- obliczano odległości (podobieństwo) pomiędzy poszczególnymi rojami i pomiędzy populacjami, jako zbiorami rojów, według wzoru:
Odległość_A—B = |Y_A — Y_B|
to znaczy odległość (podobieństwo) roju A od roju B równa się bezwzględnej różnicy ich wskaźników podobieństwa; za odległości pomiędzy populacjami przyjęto średnią wartość z sumy odległości pomiędzy poszczególnymi rojami tych populacji.
Wzory do obliczeń statystyczno-matematycznych zaczerpnięto z podręcznika Ruszczyca (1970) oraz z opracowań Florka i innych (1951) i Perkala (1953).
WYNIKI
WARUNKI DOŚWIADCZALNE
Po przeniesieniu się ze Skierniewic do Puław Oddział Pszczelnictwa IS rozpoczął w latach 1967—1970 urządzanie i rozbudowę swoich pasiek doświadczalnych na nowym terenie. Obok pszczół krajowych wprowadzono
strona 98także na większą skalę pszczoły szare kaukaskie, jako materiał do selekcji i wychowu matek pszczelich tej rasy. Główna baza pszczelarska umiejscowiona została w obrębie Pszczelniczego Zakładu Doświadczalnego Górna Niwa. W latach 1970—1975 przebywało tam podczas sezonów pszczelarskich około 250 pni, rozmieszczonych w czterech punktach (ryc. 1).
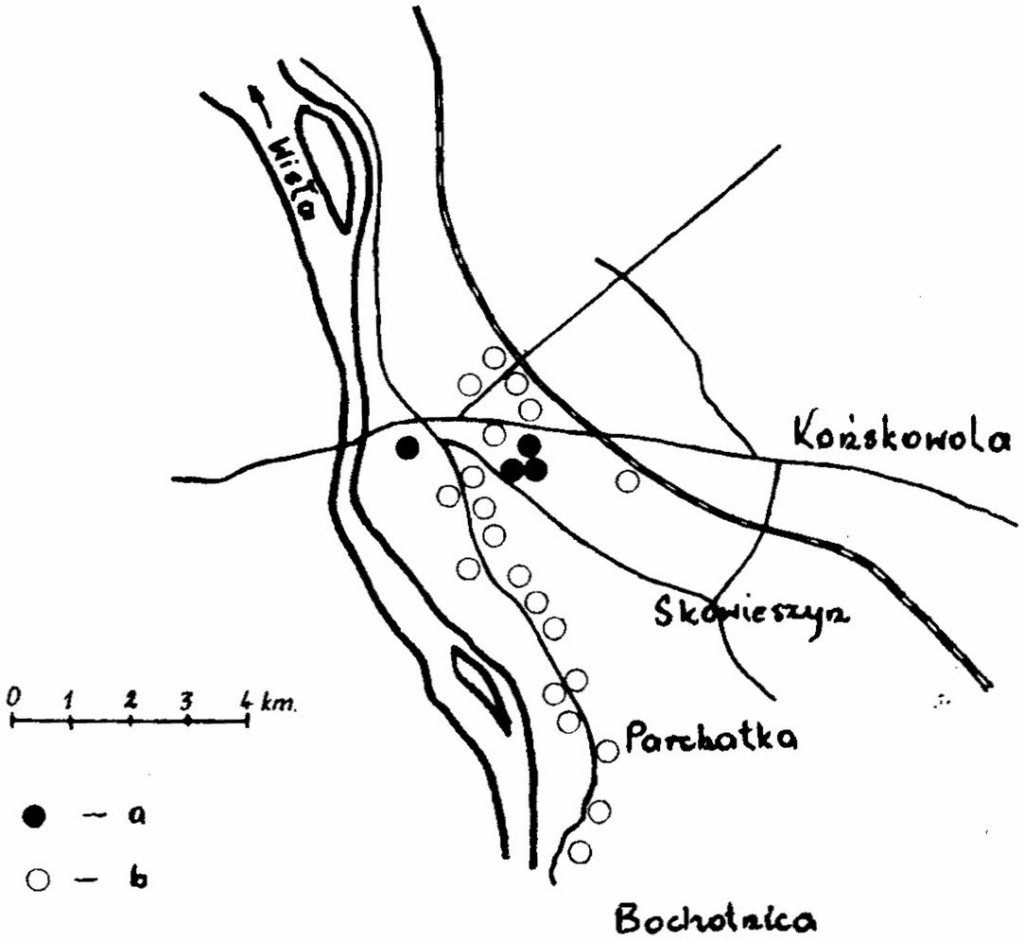
Latem 1969 roku spenetrowano najbliższe okolice Górnej Niwy w celu poszukiwania pasiek i określenia składu rasowego utrzymywanych w nich pszczół. Udało się ustalić lokalizację 20 pasiek o łącznej liczbie 236 rodzin pszczelich. Niektóre z tych pasiek (5) były większe (20—30 pni), pozostałe zaś miały przeważnie po kilka pni, ukrytych w ogródkach przydomowych. Natrafiono również na liczne puste ule, stąd wniosek, że dawniej ta okolica była obficiej napszczelona.
Pasieki były w zasadzie rozmieszczone w pasie wzdłuż Wisły, po drodze do Parchatki i Bochotnicy. Poza torem kolejowym na wschód rozciągały się pola uprawne aż do Końskowoli. Na południowywschód natomiast we wsi Skowieszyn brakowało praktycznie pszczół. Po czterech znaczniejszych pasiekach, jakie tam niegdyś były, pozostały puste ule. Nozematoza była tego główną przyczyną.
Z rozmów przeprowadzanych z właścicielami pasiek wynikało, że utrzymywali oni z dawien dawna pszczołę rodzimą, nie wprowadzając materiału hodowlanego z zewnątrz i na ogół niewiele troszcząc się o planową wymianę matek. Na 20 pszczelarzy tylko 2 wprowadziło do swoich pasiek w 1969 roku matki rasy kaukaskiej, i to raczej zmieszańcowane,
strona 99dwóch innych przed dawnymi jeszcze laty miało doczynienia z rasą włoską. W pasiece Zakładu Naukowego Górna Niwa znajdowały się także w latach 1957—1958 matki (po 3 sztuki) rasy kaukaskiej, włoskiej i kraińskiej.
Podczas oględzin pasiek pobrano próbki pszczół z 21 rojów do badań morfologicznych. Długość języczka tych pszczół mieściła się w granicach od 5,60 mm do 6,67 mm, ale krańcowe pomiary trafiały się bardzo rzadko. 99,3% pszczół robotnic znajdowało się w przedziale od 5,84 mm do 6,59 mm (ryc. 2).
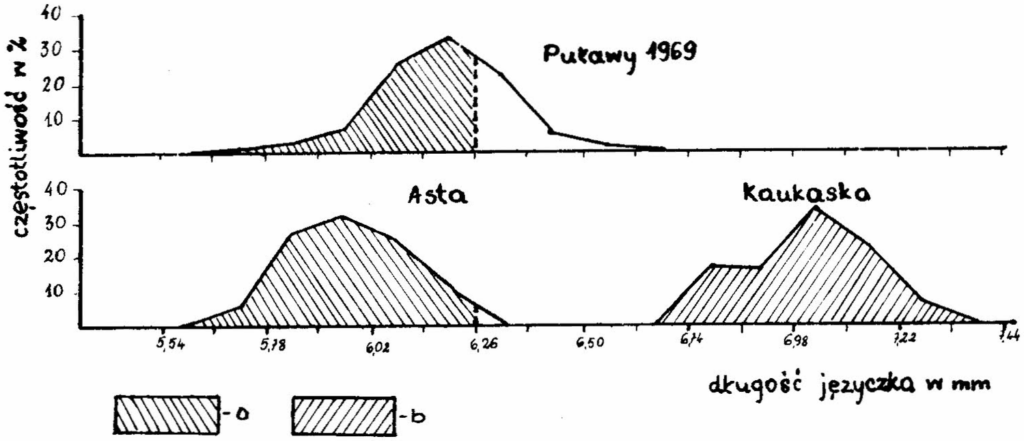
Najmniejsza i największa wartość średnia długości języczka dla roju wynosiła natomiast 6,090 mm i 6,350 mm.
Zakres osobniczej zmienności długości języczka rodzimych pszczół puławskich obejmował z nawiązką zróżnicowanie się tej cechy u pszczół linii Asta, którą wybrano jako materiał hodowlany do naszego doświadczenia. Populacja pszczół tej linii wykazywała duże wyrównanie, to znaczy mniejszy rozrzut pomiarów długości języczka, co mogło wynikać z zabiegów selekcyjnych. Wyrównaniem pomiędzy rojami (średnimi z rojów) te dwie populacje się nie różniły.
Stopień wyrównania możemy mierzyć średnią różnicą pomiędzy długościami języczków dla rojów. Obliczaliśmy ją w stosunku do standardowego odchylenia, odpowiadającego dla populacji pszczół z okolicy Puław (S = 0,0765 mm). Dla tej populacji otrzymaliśmy liczbę 1,2 a dla linii Asta również — 1,2 (tab. 1). Czym większa liczba, tym zróżnicowanie między rojami wewnątrz populacji wzrasta, to znaczy zmniejsza się jej wyrównanie.
Od populacji pszczół z okolicy Puław i linii Asta nie różniły się zbytnio wyrównaniem długości języczka pszczoły podgatunku A. m. caucasi-
strona 100Tabela 1 Długość języczka pszczół na początku doświadczenia
| Populacja | Liczba rojów | Wartość średnia mm | Standardowe odchylenie mm | Stopień wyrównania |
|---|---|---|---|---|
| Linia Asta (1969) | 9 | 5,969 | 0,0773 | 1,2 |
| Pszczoły kaukaskie (1968) | 17 | 7,008 | 0,0562 | 0,8 |
| Pasieki w okolicy Puław (1969) | 21 | 6,182 | 0,0765 | 1,2 |
ca, od matek importowanych z ZSRR. Zakresy osobniczej zmienności obu tych populacji były jednak zupełnie inne. Praktycznie nie pokrywały się wcale. Tylko nieliczne osobniki populacji z okolicy Puław i pszczół kaukaskich (0,4% i 1,5%) znalazły się w tej klasie wartości pomiarów. Pszczoły linii Asta były natomiast daleko poza zasięgiem długości języczka tego drugiego podgatunku. Przyjęliśmy — opuszczając mało znaczące końcówki, że dzielił je dystans 0,36 mm licząc od najdłuższych języczków u pszczół Asta do najkrótszych u kaukaskich. Te graniczne wartości we wspólnym szeregu rozdzielczym długości języczka wynoszą: 6,26 mm i 6,62 mm. Wszystkie pszczoły linii Asta (100%) znajdują się w klasach długości języczka poniżej 6,26 mm, natomiast wszystkie kaukaskie — powyżej 6,62 mm. Pośredni przedział od 6,26 mm do 6,62 mm pozostaje pusty. W nim to znalazło się 31,5% rodzimych pszczół z okolicy Puław. Znacznie większa ich część odpowiadała więc pod względem długości języczka pszczołom z linii Asta.
ZMIENNOŚĆ OSOBNICZA W POPULACJACH
Do wyprowadzenia doświadczalnej populacji pszczół wybrano 2 matki z linii Asta, unasienione sztucznie przez trutnie z tych samych rodzin. Z ich czerwiu wyhodowano w 1970 roku 19 matek, w roku 1971 — 2 matki i w 1972 — jedną matkę. Oznaczono je wszystkie jako pokolenie pierwsze — F1.
Matki F1 zostały wystawione do naturalnego unasieniania. Ich potomstwo, pszczoły robotnice, było bardzo zróżnicowane pod względem długości języczka, od 5,43 mm do 7,10 mm. Przedział zmienności charakterystyczny dla linii Asta został tu więc znacznie przekroczony, 38,4% pszczół znalazło się poza nim. Było ich jednak niewiele w obrębie długości języczka pszczół kaukaskich, bo tylko 12,4% (tab. 2). Znaczniejsza część populacji nie odbiegała długością języczka od pszczół utrzymywanych na terenie Puław, przed 1969 rokiem.
W potomstwie drugiego pokolenia matek (F2), córek F1, unasienionych także w naturalnych warunkach, proporcje te uległy na ogół nie-
strona 101Tabela 2 Procentowy udział pszczół populacji doświadczalnej w obrębie zmienności długości języczka charakterystycznej dla linii Asta i dla rasy kaukaskiej
| Pokolenie | Zakres zmienności: Asta | Zakres zmienności: pośrednie | Zakres zmienności: kaukaskie |
|---|---|---|---|
| Asta | 100 | 0 | 0 |
| Kaukaska | 0 | 0 | 100 |
| F1 | 66,6 | 26,0 | 12,4 |
| F2 | 51,3 | 32,9 | 15,8 |
| F3 | 28,8 | 27,3 | 49,9 |
| F4 | 7,9 | 35,2 | 56,9 |
| F5 | 3,5 | 18,1 | 78,4 |
wielkim zmianom, ale wzrost udziału pszczół o dłuższych języczkach zarysował się wyraźnie. Było 15,8% robotnic podobnych długością języczka pszczołom kaukaskim.
Populacja matek następnego, trzeciego pokolenia F3 dawała pszczoły robotnice o bardzo zróżnicowanych długościach języczka, od najniższych do najwyższych wartości ogólnego szeregu rozdzielczego, ale w zasięgu zmienności charakterystycznej dla linii Asta znajdowało się ich jeszcze dość dużo (28,8%). W dalszych pokoleniach, F4 i F5, przeważały liczebnie pszczoły o długich języczkach. Większość robotnic (78,4%) pochodzących od matek F5 pod względem długości języczka odpowiadało pszczołom kaukaskim (tab. 2, ryc. 3).
W ciągu 6 lat struktura genetyczna doświadczalnej populacji pszczół uległa ogromnemu przeobrażeniu. Każdego roku przybywało pszczół o coraz to dłuższych języczkach w miarę jak następowała wymiana pokoleń matek. Cecha długich języczków wnoszona do populacji linii Asta przez trutnie kaukaskie z roku na rok przejawiała się wyraźniej. Stopniowo zmniejszał się udział pszczół o krótkich języczkach, właściwych populacji wyjściowej. W ostatnim 1975 roku doświadczenia, kiedy oceniano pszczoły robotnice córki matek F4 i F5, praktycznie znaleziono pod względem długości języczka pszczołę kaukaską i jej mieszańców.
ZMIENNOŚĆ WARTOŚCI ŚREDNICH DŁUGOŚCI JĘZYCZKA DLA ROJÓW
Wyrównanie wewnątrz pokoleń. Osobniczemu zróżnicowaniu długości języczka pszczół populacji doświadczalnej towarzyszył także wzrost różnic pomiędzy średnimi z poszczególnych rojów. Już między rojami z matkami F1 były one 2,3 razy większe niż w populacji wyjściowej. Taki stan wynika z wpływu trutni rasy kaukaskiej, których udział w unasienianiu tej serii matek, czystych rasowo, musiał być znaczny. Dzięki takim unasienianiom w następnych pokoleniach, od F2 do F5, struktura genetyczna matek mogła być mniej lub bardziej zróżnicowana i odrębności poszczególnych rojów się pogłębiały.
strona 102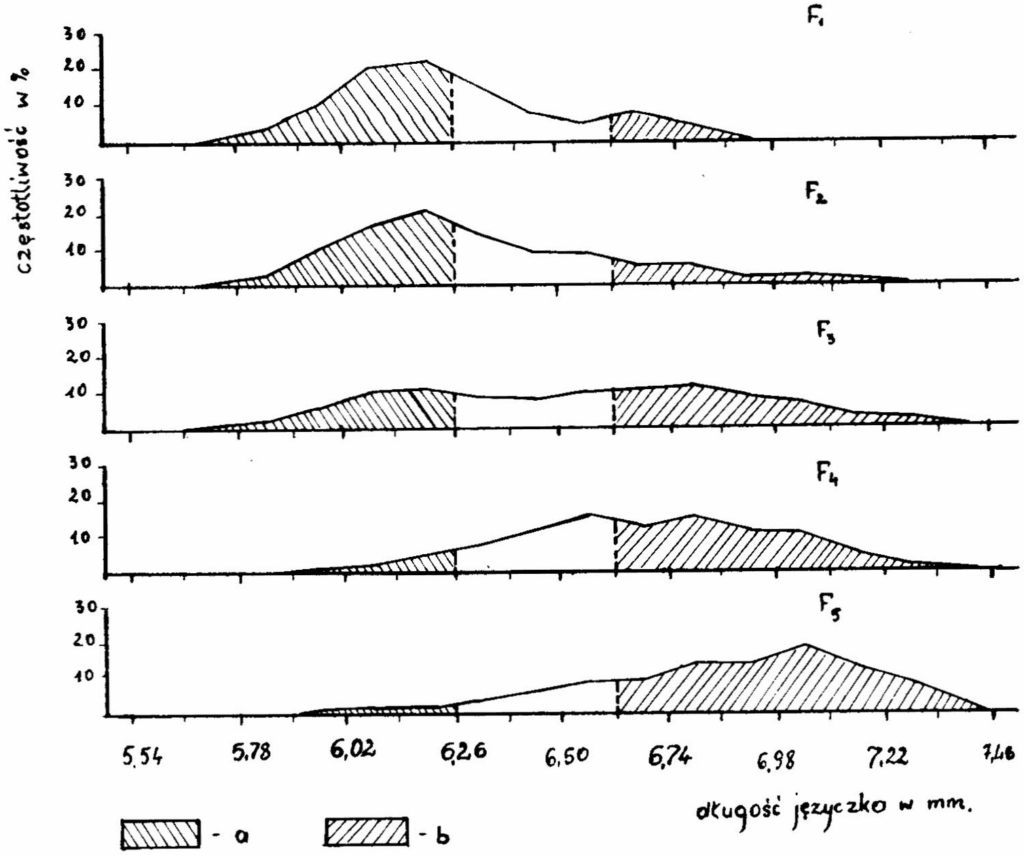
Tabela 3 Charakterystyka wyrównania wewnątrz populacji i odległość (podobieństwa) pomiędzy rojami różnych populacji (objaśnienia w tekście)
| Populacja | Wyrównanie wewnątrz populacji | Odległość: linia Asta | Odległość: pszczoła kaukaska |
|---|---|---|---|
| Linia Asta (1969) | 1,2 | 0 | 13,6 |
| Pszczoła kaukaska (1968) | 0,8 | 13,6 | 0 |
| Pokolenie: F1 | 3,8 | 4,1 | 9,7 |
| F2 | 2,8 | 4,5 | 9,2 |
| F3 | 4,8 | 7,2 | 6,4 |
| F4 | 3,2 | 9,2 | 4,6 |
| F5 | 3,6 | 11,6 | 2,8 |
Największa różnorodność pod względem długości języczka wystąpiła pomiędzy rojami z matki F3, jej wskaźnik wynosił 4,8, podczas gdy dla pszczół czystej linii Asta równał się on 1,2, a dla kaukaskich 0,8 (tab. 3). Wskaźnik ten wyraża średnią wartość różnicy (albo odległości) pomiędzy wskaźnikami podobieństwa poszczególnych rojów w obrębie populacji. Im jest on większy, tym różnica ta lub inaczej odległość wzrasta, to znaczy, że podobieństwo między rojami staje się coraz mniejsze. Do obliczania wskaźników podobieństwa według długości języczka przyjęliśmy dla wszystkich populacji jedno i to samo standardowe odchylenie, S = 0,0765 mm, właściwie dla populacji rojów badanych w okolicy Puław (tab. 1).
Różnice pomiędzy pokoleniami. Wychodząc z krańcowo różnych pod względem długości języczka populacji, otrzymaliśmy w dalszych pokoleniach roje bliskie pszczołom kaukaskim. Niektóre z nich znalazły się w obrębie zmienności średnich z rojów, charakterystycznej tej rasie pszczół. W F5 było ich 9 na 15 badanych. Gdyby ograniczyć się tylko do oznaczania długości języczka, możnaby scharakteryzować je jako pszczoły kaukaskie. W poprzednich pokoleniach było takich rojów mniej, a w F1 nawet w ogóle brakowało. Lecz i w obrębie zmienności linii Asta mieściło się ich niewiele (3 roje).
W każdym kolejnym pokoleniu zachodziło stopniowo przesuwanie wartości średnich dla rodzin w kierunku długich języczków, ale zróżnicowanie między nimi w obrębie danego pokolenia utrzymywało się na podobnym poziomie (poza F3, tab. 3). Można zatem mniemać, że wpływ pszczół kaukaskich dotyczył nie tylko pojedynczych rojów, ale całej ich populacji. Prawdopodobnie brakowało matek, które zostały unasienione wyłącznie przez trutnie jednej z tych dwóch ras. W ogólnej ocenie przewaga ilościowa trutni o cechach pszczół kaukaskich w doborze losowym wydaje się tu oczywista. Potęgowała się ona przy tym z roku na rok. Udział ich w unasienianiu matek pokolenia F4 i F5 musiał być znaczny, bo obserwujemy tutaj zanikanie regresji długości języczka w kierunku linii Asta (ryc. 3).
Czwarte i piąte pokolenie matek (22 i 15 sztuk) wywodziło się rodowodowo od 7 matek F1. Średni dystans (podobieństwo jakie je dzielił od pokolenia rodzicielskiego (P) charakteryzowały liczby 10,3 i 11,2 (tab. 4). Te liczby są ogólną miarą wpływu pszczół rasy kaukaskiej na kształtowanie się długości języczka w populacji linii Asta. Skutki tego wpływu narastały w każdym pokoleniu matek. Podobieństwo między rodzicami (matką) a ich potomstwem mieściło się w granicach liczb 2,2 do 3,4. Oznaczają one średnią odległość relacji matka—córka bez względu na to czy różnica w poszczególnych kombinacjach ich wzajemnego porównywania wypadają ze znakiem plus czy minus. Na przykład podobieństwo między F2 i F3 jest mniejsze niż między pokoleniami F4 i F5, bo odległości wynoszą tu 3,4 i 2,2, natomiast w zestawieniu F1 i F2 z F4 i F5 nie znajdujemy różnicy w stopniu podobieństwa, gdyż wartość wskaźnika jest taka sama — 2,2 (tab. 4).
strona 104Tabela 4 Charakterystyka podobieństwa poszczególnych pokoleń populacji doświadczalnej w relacji matka — córki (objaśnienia w tekście)
| Rodzaj podobieństwa | F1 | F2 | F3 | F4 | F5 |
|---|---|---|---|---|---|
| Liczba rojów | 7 | 11 | 10 | 22 | 15 |
| Podobieństwo do pokolenia 0: | |||||
| średnia odległość | 3,3 | 4,8 | 8,4 | 10,3 | 11,2 |
| średnie odchylenie | +3,1 | +4,8 | +8,4 | +10,3 | +11,2 |
| Podobieństwo do rodziców: | |||||
| średnia odległość | 3,3 | 2,2 | 3,4 | 2,5 | 2,2 |
| średnie odchylenie | +3,1 | +1,6 | +3,4 | +0,9 | +0,1 |
| jednostkowe odchylenie krańcowe: | |||||
| na minus | —0,8 | —3,2 | 0 | —5,7 | —7,3 |
| na plus | +5,3 | +4,2 | +8,7 | +6,1 | +3,7 |
Narastaniu różnicy (odległości) w kolejnych pokoleniach nie musi towarzyszyć proporcjonalny wzrost długości języczka. Przy obliczaniu tych wartości trzeba uwzględniać i znak odchylenia długości języczka córek w porównaniu do ich matek. W rezultacie otrzymujemy tu średnie wskaźniki mniejsze lub co najmniej równe wskaźnikom podobieństwa. Były one jednak wszystkie ze znakiem plus, od +0,1 (F4 i F5) do +3,4 (F2 i F3). Znaczy to, że na przykład między matkami pokolenia F4 i ich córkami—matkami F5 długość języczka wzrosła o +0,1 jednostki. Jednostki te można przeliczać na milimetry, pamiętając, że każda z nich odpowiada 0,0765 mm.
Największy przyrost długości języczka wystąpił w F3. Jego wskaźnik (+3,4) i wskaźnik podobieństwa równały się tu liczbowo. Znaczy to, że wśród rojów z matki F3 brakowało takich, których długość języczka byłaby mniejsza niż w pniu z matką zarodową. W jednym przypadku występowała tu równość, a więc jedno z dwóch jednostkowych odchyleń krańcowych, jak je nazywamy w tabeli 4, to w kierunku na minus, równało się zeru.
Dość silny wzrost długości języczka obserwowany na początku doświadczenia, spada w ostatnich dwóch pokoleniach, w F5 nawet prawie do zera. Jest to oznaką stabilizowania się genetycznego populacji doświadczalnej. Towarzyszy temu jednak dość duża zmienność pomiędzy rojami. Zaznacza się przy tym silna regresja w kierunku wyjściowej populacji linii Asta, odwrotnie niż w pokoleniach F1, F2 i F3. Ochylenie krańcowe rzędu —3,2—0, na początku doświadczenia równają się wartościom —5,7 i —7,3, podczas gdy wskaźniki na plus się zmniejszają z 4,2—8,7 na 6,1—3,7 (tab. 4).
Wskaźniki jakie przytoczyliśmy, dotyczą matek—sióstr w obrębie jednego pokolenia, a między pokoleniami: relacje matka—córka. Jest zadziwiające jaka może być różnorodność pomiędzy matkami—siostrami.
strona 105Wynika ona ze zróżnicowania genetycznego. Matka pszczela o ustalonym rasowo genotypie, ale unasieniona przez trutnie tej samej i innej rasy wydaje potomstwo czystorasowe i mieszańce pod względem jakiejś cechy. Matki wyprowadzone z tego pnia mogą reprezentować albo jeden albo drugi typ.
ZAKRES PENETRACJI CECH PSZCZÓŁ OBCEJ RASY
W okresie 5 lat populacja pszczół krótko-języczkowych przekształciła się gruntownie pod względem długości języczka. Proces przemian zachodził bez nacisku selekcyjnego, tylko dzięki niekontrolowanemu unasienianiu się matek. Cecha długiego języczka była przekazywana do populacji przez trutnie rasy, którą wprowadzono i utrzymywano w najbliższym otoczeniu. Wniosek stąd taki, że pojedyncza pasieka w podobnym środowisku nie ma żadnych szans na utrzymanie w czystości pogłowia pszczół jakiejś rasy bez specjalnych zabiegów hodowlanych, umożliwiających kontrolowanie unasienień matki. Zdana jest ona na odbiór skutków inwencji pszczelarzy sąsiadów, którzy wprowadzają krańcowo różne genetycznie pszczoły. Zjawisko nabiera więc charakteru społecznego.
Systematyczne wprowadzanie i rozpowszechnianie pszczół obcych ras może doprowadzić do zupełnego przeobrażenia populacji miejscowych pod względem genetycznym. Nasza doświadczalna populacji jest tego dowodem. Wychodząc z linii Asta po 4—5 pokoleniach mieliśmy pszczoły prawie w większości odpowiadające długością języczka rasie kaukaskiej. Przekształcenie odbywało się w szybkim tempie, bo i liczba pszczół kaukaskich i ich mieszańców w rejonie Puław w owym czasie ciągle wzrastała dzięki zainteresowaniu się okolicznych pszczelarzy tą rasą. Działał tu więc nacisk selekcyjny, korzystny dla cech pszczoły kaukaskiej. W innych warunkach przemiany tego rodzaju w populacji dośwaidczalnej zachodziłyby przypuszczalnie wolniej. Uzyskujemy jednak dobrą ilustrację, jakie wyniki może przynieść ukierunkowanie współdziałanie pszczelarzy w zakresie kształtowania struktury genetycznej populacji pszczół.
WNIOSKI
Na podstawie przedstawionych wyników badań można sformułować następujące wnioski ogólne:
- Wprowadzanie obcych ras pszczół wpływa na dowolne kształtowanie się cech pszczół w sąsiednich pasiekach, które nie kontrolują doboru rodziców do kojarzenia. Wszelkie zabiegi selekcyjne takich pasiek zmierzające do utrzymania pszczół czystej rasy, są skazane całkowicie na niepowodzenie.
- Oderwana działalność pojedynczej pasieki w wykorzystaniu pszczół
obcych ras narusza gospodarowanie pozostałych pasiek okolicy, gdzie utrzymuje się i eksploatuje pszczołę jednej i tej samej rasy.
- W wykorzystywaniu produkcyjnym w kraju równolegle kilku ras pszczół i ich mieszańców niezbędne jest organizowanie centralnie tego przedsięwzięcia, polegające przede wszystkim na rejonizacji ras pszczół, właściwym ukierunkowaniem pras selekcyjno-hodowlanych, wychowie dostatecznej liczby odpowiednich matek do wymiany.
- W celu zapewnienia zasobu pszczoły o cechach czystorasowych należy tworzyć jej rezerwaty lub zamknięte rejony hodowli.
- Wymiana w okolicy pszczół jakiejś rasy na inną nie nastręcza specjalnych trudności, nawet wówczas gdy część pasiek nie selekcjonujących pszczołę jest wyłączona z tego zabiegu: przy umiarkowanym nacisku selekcyjnym wystarczy 4—5 pokoleń matek, aby cechy rasy wprowadzanej przeważały widocznie w całej populacji tej okolicy.
- Powinno się zweryfikować używane określenie „pszczoła miejscowa”; przy wprowadzaniu i utrzymywaniu przez poszczególne pasieki w kraju pszczół obcych ras traci ono pierwotnie znaczenie; mamy bowiem do czynienia z mieszańcami różnego typu i stopnia, a nie z pszczołą wprawdzie nieselekcjonowaną, ale rodzimą, nasiedlającą od dawna teren naszego kraju.
- W związku z powszechnymi możliwościami mieszańcowania się różnych populacji powinno się określać ich strukturę genetyczną przed zakładaniem doświadczeń pszczelarskich, na których wyniki może poważnie rzutować przynależność rasowa pszczół.
Do określania przynależności rasowej pszczół najlepiej nadają się cechy morfologiczne: powinno się wzbogacać naszą wiedzę na ich temat zarówno poszukując nowych cech dotychczas nie branych pod uwagę, jak i poznawać mechanizmy dziedziczenia się tradycyjnie określanych.
LITERATURA
Bornus L., Gromisz M., Nowakowski J. (1976) — Use of some morphological features in taxonomy of honey bee. Międzynarodowe Sympozjum genetyki selekcji i reprodukcji pszczół, Moskwa, 22—28 sierpień 1976.
El-Banby M. A. (1966) — Posouzeni možnosti přenašeni dědičnych znaků a genetickě, vazby některých znaku u učely. Odborně včelařské překlady, (3): 18—19
Florek K., Łukaszewicz J., Perkal J., Steinhaus H., Zubrzycki S. (1951) Taksonomia wrocławska. Przegląd Antropologiczny, 17: 193—211.
Gromisz M. (1961) — Zmienność długości języczka u pszczoły krajowej. Pszczeln. Zesz. Nauk., 5(1): 1—31
Gromisz M. (1967) — Przydatność niektórych cech morfologicznych w systematyce wewnątrz gatunku Apis mellifica L. Pszczeln. Zesz. Nauk. 11(1—3): 37—50.
Gromisz M., (1975) — Obrót matkami pszczelimi w pasiekach polskich. Pszczeln. Zesz. Nauk., 19: 151—179.
strona 107Perkal J. (1953) — Taksonomia wrocławska. Przegląd Antropologiczny, 19: 82—105.
Ruszczyc Z. (1970) — Metoda doświadczeń zootechnicznych. Warszawa, PWRiL.
ВЛИЯНИЕ КАВКАЗКОЙ ПЧЕЛЫ НА ФОРМИРОВАНИЕ СВОЙСТВ МЕСТНОГО ПОГОЛОВЬЯ
М. Громиш
Резюме
Введение пчел чужих пород воздействует на формирование свойств местного поголовья, благодаря специфике осеменения пчелиных маток. Это влияние и его последствия определено в популяции отечественных пчел линии Аста, вводя на пасеке кавказские пчелы. Для определения генетической структуры популяции принято длину хоботка, как свойство хорошо дифференцирующее эти породы (длина хоботка пчел Аста — до 6,26 мм, кавказских пчел — выше 6,62 мм). Каждому поколению маток Аста, осеменяемых в модифицированных условиях, был свойствен большой разброс длины хоботка, уподобляясь кавказским пчелам. Также сильно увеличилась дифференциация этого свойства между роями до 4,8 раза по сравнению с уравниванием исходной популяции линии Аста.
EFFECT OF CAUCASIAN HONEYBEES ON THE FORMATION OF MORPHOLOGICAL FEATURES OF LOCAL BEES
M. Gromisz
Summary
Ranges of influences strange races and their effects were investigated in population of local line Asta to which introducing to apiary Causian honeybees. For determination of these effects accepted the length of the tongue as a feature which the best determinate both races (the length of the tongue in Asta — workerbees to 6,26 mm. Caucasian bees above 6,62 mm). Each next generation of Asta queens mated in modify condition produced workers with large distribution of the length of tongue and assimilating to Caucasian bees. Distribution of the length of the tongue between colonies were in these generations very high, 4,8 times biger then in starting line of Asta.
Errata — błędy druku znalezione podczas digitalizacji
- s. 96: „biekt” → obiekt
- s. 96: „wartości klasy równą” → wartość klasy równą
- s. 101, tab. 2, F1: „66,6″ → 61,6
- s. 102, ryc. 3: „długość języczko” → długość języczka
- s. 104: „Ochylenie” → Odchylenie
- s. 105: „doświadczalna populacji” → doświadczalna populacja
- s. 105: „dośwaidczalnej” → doświadczalnej
- s. 106: „pras selekcyjno-hodowlanych” → prac selekcyjno-hodowlanych
- s. 106: „pierwotnie znaczenie” → pierwotne znaczenie
- s. 106, piśmiennictwo: „Posouzeni” → Posouzení
- s. 106, piśmiennictwo: „přenašeni” → přenášení
- s. 106, piśmiennictwo: „dědičnych” → dědičných
- s. 106, piśmiennictwo: „genetickě, vazby” → genetické vazby
- s. 106, piśmiennictwo: „některých znaku” → některých znaků
- s. 106, piśmiennictwo: „u učely” → u včely
- s. 107, streszczenie: „КАВКАЗКОЙ” → КАВКАЗСКОЙ
- s. 107, streszczenie: „Causian” → Caucasian
- s. 107, streszczenie: „biger then” → bigger than