

PRÓBA SKLASYFIKOWANIA RÓŻNYCH TYPÓW BACILLUS LARVAE WHITE
tekst: Marian Jeliński
Pszczelnicze Zeszyty Naukowe, Rok XXIX, 1985 — Marian Jeliński
strona 145PSZCZELNICZE ZESZYTY NAUKOWE Rok XXIX 1985
Marian Jeliński
Zakład Badania Chorób Owadów Użytkowych w Swarzędzu Instytutu Weterynarii w Puławach
WPROWADZENIE
Badania biochemiczne Bacillus larvae White nie były prowadzone na dużej liczbie szczepów z uwzględnieniem wielu cech. Azuma i Kitaoka (1965) stwierdzili, że zmodyfikowane podłoże Holsta i Sturtevanta jest przydatne do kiełkowania przetrwalników i do ich wytwarzania. Według tych autorów B. larvae wykazuje aktywność proteolityczną, która maleje na podłożach zawierających glukozę. Wykazali oni, że drobnoustrój ten wytwarza siarkowodór. Według nich B. larvae fermentuje glukozę. Bitner (1971) stwierdził, że laseczka zgnilca złośliwego redukuje azotany do azotynów. Według Bergey’a (1974) cechą tą charakteryzuje się 11—89% szczepów B. larvae. Drobníková (1978) stwierdziła, że laseczka ta jest katalazoujemna. Jeliński, Kostecki i Służewska (1976) wykazali, że B. larvae tworzy enzymy lipolityczne.
Zbadanie znacznej liczby szczepów z terenu Polski i porównanie ich ze szczepami wzorcowymi oraz zagranicznymi powinno pozwolić na dokładniejszy opis właściwości biochemicznych laseczki zgnilca złośliwego. W dostępnym piśmiennictwie nie znaleziono podziału B. larvae na typy biochemiczne. Poszczególne szczepy tej laseczki zachowują się niejednakowo, co pozwala przypuszczać, że jest taka możliwość.
Wyłania się więc potrzeba podjęcia próby sklasyfikowania typów B. larvae.
MATERIAŁ I METODY
Szczepy B. larvae. Do badań użyto 110 szczepów laseczki zgnilca złośliwego. Pochodziły one głównie z województw: kaliskiego, konińskiego,
^*) Praca stanowi przepracowaną część rozprawy doktorskiej autora z 1980 r., a jej pełny tekst znajduje się w Bibliotece Instytutu Weterynarii w Puławach.
strona 146leszczyńskiego, pilskiego, poznańskiego, a także: słupskiego, szczecińskiego, toruńskiego, włocławskiego i zielonogórskiego. Część badanych szczepów wyosobniono z materiału chorobowego, który w wycinkach plastrów przekazały w 1979 r. Zakłady Higieny Weterynaryjnej z: Bydgoszczy (By-1), Białegostoku (BK-3, BK-4), Gorzowa Wlkp. (GO-1, GOZ-2), Opola (OP-2, OP-3, OP-4), Rzeszowa (RZ-1, RZ-2) oraz Pracownia Badania Chorób Pszczół Nr 2 z Suwałk (SU-1, SU-3). Szczepy BG-9, BG-11, BG-12, BG-13 i BG-14 wyizolowano w roku 1976 w Bułgarii. Szczep S/77 wywodzi się ze Szwecji, a szczepy WY-A i WY-C ze stanu Wyoming w USA.
Spośród szczepów wzorcowych szczep NRRL B-2605 = B-2605 wyizolował Holst, a do badań udostępnił go dr Nakamura z USA. Z tego samego źródła pochodził szczep NRRL B-2610 = B-2610, który wyosobnił Haynes. Szczepy NRRL B-3554 = B-3554, NRRL B-3558 = B-3558 i NRRL B-3650 = B-3650 otrzymano od dr T. A. Gochnauera z Kanady, dwa pierwsze zostały przez tego specjalistę wyosobnione. Natomiast B-3650 pochodzi z Australii, a wyizolował go Bailey. Opis wymienionych szczepów wzorcowych podał Gordon, Haynes i Pang (1973). Dr Nakamura przesłał również szczepy: NRRL B-4193 = B-4193, NRRL B-4194 = B-4194 i NRRL B-4195 = B-4195. Nie znaleziono jednak ich opisu w dostępnej literaturze. Przesłane szczepy otrzymano w formie zliofilizowanej.
Podłoża hodowlane. Do izolacji szczepów z materiału chorobowego oraz ich przechowywania użyto zmodyfikowanego podłoża Willisa i Hobbs, sporządzonego według metody podanej uprzednio przez Jelińskiego (1985).
Chcąc uzyskać materiał do posiewu ze skosów tej pożywki w probówkach bakteriologicznych o wymiarach 13—15 × 100 mm, bakterie przesiewano. Posiew wykonywano na zmodyfikowane podłoże Willisa i Hobbs (zwane dalej w skrócie podłożem z. W. H.) w płytkach Petriego o średnicy 5 cm. Inkubację prowadzono przez 3—5 dni. Przez około 8 dni inkubowano posiane skosy po czym przechowywano je w lodówce, w słoikach typu „twist”. Zamknięcie probówek ze skosami stanowiły początkowo typowe korki z waty i gazy, później jednak zastosowano rodzaj kapsli sporządzonych z blaszek, którymi zamykane są butelki z produktami mleczarskimi.
Badania biochemiczne. Badanie w kierunku rozkładu skrobi przeprowadzano w 7 dniu wzrostu według nieco zmienionej techniki, podanej uprzednio przez Jelińskiego (1978). Modyfikacja polegała na umieszczaniu małych płytek w płytce Petriego o średnicy 19 cm. Obserwację w celu wykrycia proteolizy prowadzono w 2 i 3 dniu wzrostu raz dziennie.
Wytwarzanie lipaz wykazywano na podłożu z. W. H. Kontrolę przeprowadzano od 3 do 7 dnia wzrostu raz dziennie. Wyjątkowo prowadzono ją dłużej, gdy enzymy nie ujawniały swojej działalności w tym czasie. Próbę na katalazę wykonywano przez nakroplenie 3% roztworu nadtlenku wodoru według techniki podanej uprzednio przez Jelińskiego
strona 147(1978). Podłoże to jak i przy badaniu w kierunku rozkładu skrobi posiewano linią.
Próby w kierunku rozkładu w warunkach tlenowych cukrów, alkoholi wielowodorotlenowych i glukozydów wykonywano na skosach podłoży złożonych z: 1% skrobi rozpuszczalnej cz. d. a. produkcji P. P. H. Polskie Odczynniki Chemiczne — Gliwice, którą rozpuszczano w małej ilości wody redestylowanej na łaźni wodnej; 1% wyciągu drożdżowego (GURR); 1 cm³ purpury bromokrezolowej w wodzie dodawano do 100 cm³ pożywki (40 mg rozpuszczono w 50 cm³ wody redestylowanej); 0,5% odpowiedniego cukru, alkoholu wielowodorotlenowego lub glukozydu; 2% agaru; pozostałość stanowiła woda redestylowana.
Odczyn ustalano przez dodanie 2% KOH, które kończono w chwili przechodzenia barwy podłoża w purpurową. 0,5% cukru, alkoholu wielowodorotlenowego lub glukozydu stanowiły: adonitol, DL-arabinoza, dulcitol, eskulina, D-fruktoza, galaktoza, glicerol, d/+/-glukoza, inulina, DL-ksyloza, laktoza, maltoza, D-mannitol, D/+/-melecytoza, D/+/-rafinoza, L-ramnoza, sacharoza, salicyna, trehaloza.
Eskulinę i inulinę rozpuszczano w sposób podany dla skrobi. Po sterylizacji w temperaturze około 390 K (117°C) przez 15 min. podłoże rozlewano do takich samych probówek, jakie używano do przechowywania szczepów. W drugim dniu inkubacji odczytywano wyniki, w przypadku wzrostu obcych bakterii cały rząd danego szczepu wycofywano. Z pozostałych notowano zmiany i inkubowano w dalszym ciągu. W piątym dniu inkubacji zapisywano ostateczne wyniki.
W celu stwierdzenia wytwarzania siarkowodoru posiewano szczepy na skosy jak w celu przechowywania — z tą różnicą, że w przybliżeniu do wysokości skosu nalewano 0,02% roztworu chlorowodorku DL — cysteiny cz. (P. P. H. Polskie Odczynniki Chemiczne — Gliwice) w zbuforowanym roztworze soli fizjologicznej (Wytwórni Surowic i Szczepionek w Lublinie). Płyn ten przed nalaniem go na skosy sterylizowano w autoklawie przy temperaturze około 390 K (117°C) przez 15 min. Wynik oznaczano metodą paska bibuły z octanem ołowiowym. Odczyt wykonywano w 2 dniu inkubacji.
Redukcję azotanów do azotynów wykrywano na pożywce o następującym składzie: 1 g wyciąg drożdżowy (GURR); 1 g skrobia rozpuszczalna; 10 mg KNO₃; 40 mg CaCl₂; woda redestylowana do 100 cm³. Pożywkę sterylizowano jak 0,02% roztwór chlorowodorku cysteiny. Po 5 dniach inkubacji wykrywano azotyny stosując odczynniki Griessa.
Posiewy inkubowano przy temperaturze około +35°C.
Badania biochemiczne 110 szczepów wykonano jednokrotnie, powtórzenia stosowano tylko w przypadku wzrostu obcych bakterii.
WYNIKI I DYSKUSJA
Próba na katalazę wykazała brak tego enzymu u B. larvae, co wcześniej opisał Jeliński (1985) — tabela 1. Autor w doniesieniu tym
strona 148Tabela 1 Właściwości biochemiczne zbadanych szczepów B. larvae Biochemical properties of the strains of B. larvae reported here
| Number of strains Liczba szczepów | Obecność katalazy — Catalase | Amylase Rozkład skrobi | siarkowodoru H₂S Wytwarzanie | Nitrite formed from nitrate Redukcja azotanów do azotynów | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Arabinozy — Arabinose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Fruktozy Fructose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Galaktozy Galactose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Glukozy — Glucose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Inuliny — Inulin | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Ksylozy — Xylose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Laktozy — Lactose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Maltozy — Maltose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Melecytozy Melezitose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Rafinozy Raffinose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Ramnozy — Rhamnose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Sacharozy Saccharose | Wytwarzanie kwasu z — Production of acid from: Cukrów — Sugars: Trehalozy Trehalose | Wytwarzanie kwasu z — Production of acid from: Alkoholi wielowodorotlenowych Polyhydric alcohols: Adonitolu Adonitol | Wytwarzanie kwasu z — Production of acid from: Alkoholi wielowodorotlenowych Polyhydric alcohols: Dulcitolu Dulcitol | Wytwarzanie kwasu z — Production of acid from: Alkoholi wielowodorotlenowych Polyhydric alcohols: Glicerolu Glycerol | Wytwarzanie kwasu z — Production of acid from: Alkoholi wielowodorotlenowych Polyhydric alcohols: Mannitol Mannitolu | Wytwarzanie kwasu z — Production of acid from: Glukozydów Glycosides: Aesculin Eskuliny | Wytwarzanie kwasu z — Production of acid from: Glukozydów Glycosides: Salicyny — Salicin |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| 110 | + 0/110 | 0/110 | 110/110 | 64/110 | 0/110 | 0/110 | 0/110 | 110/110 | 0/110 | 0/110 | 0/110 | 0/110 | 0/110 | 0/110 | 0/110 | 0/110 | 110/110 | 0/110 | 0/110 | 109/110 | 19/110 | 0/110 | 12/110 |
Objaśnienie: + = w liczniku — liczba szczepów dających wynik dodatni. w mianowniku — liczba szczepów zbadanych. Number of strains which showed a positive reaction (number of investigated strains.
strona 149stwierdził także, iż żaden z badanych szczepów nie rozkładał skrobi. Wykazanie tworzenia przez B. larvae siarkowodoru, pozwoliło na lepszą charakterystykę szczepów polskich. Dotąd panowała bowiem opinia, że nie tworzą one siarkowodoru, co opisał Jeliński (1985).
W doniesieniu tym autor stwierdził również, że 64 szczepy ze 110 badanych redukowały azotany do azotynów. Wykazano, że B. larvae nie rozkłada arabinozy. Nieliczne szczepy tworzyły jednak nieznaczne ilości kwasu z tej pentozy. Według Zahaczewskiej i Furowicza (1964) arabinoza jest fermentowana przez laseczkę zgnilca złośliwego. Nie obserwowano tworzenia kwasu z fruktozy. Azuma i Kitaoka (1965) wykazali jednak, że B. larvae fermentuje ten cukier. Autorzy ci stwierdzili odczyn dodatni już po jednym lub dwóch dniach inkubacji. Stosowali oni jednak nieco inne podłoże i cukier w koncentracji 1%. W naszych badaniach nie stwierdzono tworzenia kwasu z galaktozy. Zahaczewska i Furowicz (1964) donoszą o rozkładzie tego cukru przez niektóre szczepy B. larvae. Laseczka ta tworzyła kwas z glukozy. Badane szczepy nie rozkładały inuliny, choć czasem obserwowano nieznaczne zakwaszenie podłoża. Mika (1968) donosi o słabej fermentacji tego wielocukru. Nie stwierdzono rozkładu ksylozy. Nieliczne badane szczepy tworzyły jednak nieznaczne ilości kwasu z tej pentozy. Azuma i Kitaoka (1965) podali, że niektóre szczepy B. larvae fermentują ksylozę. W naszych badaniach laseczka zgnilca złośliwego nie tworzyła kwasu z laktozy i maltozy. Według Zahaczewskiej i Furowicza (1964) niektóre szczepy B. larvae fermentowały laktozę. Autorzy ci donieśli również o fermentacji maltozy przez laseczkę zgnilca złośliwego. Użyte w naszych eksperymentach szczepy B. larvae nie rozkładały melecytozy i rafinozy. Mika (1968) donosi o słabej fermentacji tych trójcukrów. Żaden badany szczep nie rozkładał ramnozy. Także z sacharozy nie był tworzony kwas. Według Zahaczewskiej i Furowicza (1964) dwucukier ten był fermentowany przez laseczkę zgnilca złośliwego. Azuma i Kitaoka (1965) wykazali ten proces tylko u niektórych szczepów B. larvae. Na pożywce zawierającej trehalozę stwierdzono obfity wzrost i intensywne tworzenie kwasu. Badane szczepy B. larvae nie rozkładały adonitolu i dulcitolu. W przypadku tych alkoholi wielowodorotlenowych tylko Mika (1968) doniósł o słabej fermentacji dulcitolu. Wykazano, że B. larvae tworzy kwas z glicerolu. Wyjątkiem był tu szczep BG-13, który nie rozkładał tego alkoholu wielowodorotlenowego. Bergey (1974) dopuszcza jednak możliwość istnienia 10% szczepów, które wykazują inne cechy od przyjętych dla gatunku. Mannitol rozkładało 19 (18%) szczepów. Zagadnienia dotyczące tych problemów opisał uprzednio Jeliński (1958). Nie stwierdzono rozkładu eskuliny przez badane szczepy B. larvae. Według Zahaczewskiej i Furowicza (1964) glukozyd ten był rozszczepiany. Salicynę rozkładało 12 (11%) szczepów. Zagadnienie to opisał uprzednio Jeliński (1985).
Wystąpiły różnice w czasie ujawniania się działalności proteinaz (ta-
strona 150Tabela 2 Czas ujawniania się działalności proteinaz i lipaz u szczepów B. larvae na podłożu z. W. H. Time course od appearance of proteolytic and lipolytic activity of strains of B. larvae on modified Willis and Hobbs medium
| Ogólna liczba szczepów Total number of strains | Dzień ujawniania się działalności proteinaz Times in days needed for appearance of proteolytic activity: 2 | Dzień ujawniania się działalności proteinaz Times in days needed for appearance of proteolytic activity: 3 | Dzień ujawniania się działalności lipaz Time in days needed for appearance of lipolytic activity: 3 | Dzień ujawniania się działalności lipaz Time in days needed for appearance of lipolytic activity: 4 | Dzień ujawniania się działalności lipaz Time in days needed for appearance of lipolytic activity: 5 | Dzień ujawniania się działalności lipaz Time in days needed for appearance of lipolytic activity: 6 | Dzień ujawniania się działalności lipaz Time in days needed for appearance of lipolytic activity: 7 | Dzień ujawniania się działalności lipaz Time in days needed for appearance of lipolytic activity: 8 | Dzień ujawniania się działalności lipaz Time in days needed for appearance of lipolytic activity: 10 |
|---|---|---|---|---|---|---|---|---|---|
| 110 | +75/110 | 35/110 | 16/110 | 24/110 | 33/110 | 16/110 | 19/110 | 1/110 | 1/110 |
Objaśnienie: + = w liczniku — liczba szczepów dających wynik dodatni w mianowniku — ilczba szczepów zbadanych Number of strains which showed a positive reaction / number of investigated strains
bela 2). U 75 (68%) szczepów stwierdzono strefę przejaśnienia w drugim, a u 35 (32%) w trzecim dniu inkubacji. Zawarte w podłożu z. W. H. mleko pozwoliło więc na wykazanie właściwości proteolitycznych u wszystkich badanych szzczepów B. larvae. Zagadnienia związane z tym problemem opisał uprzednio Jeliński (1985). Doniesienie to dotyczy również enzymów lipolitycznych, które swą działalność w niektórych przypadkach zaczęły ujawniać w 3 dniu inkubacji, zjawisko to wystąpiło w tym czasie u 16 (14%) szczepów. Lipazy powodowały wytrącanie soli kwasów tłuszczowych z żółtka jaja zawartego w podłożu z. W. H. Objawiało się to wystąpieniem warstwy perłowej, która w czwartym dniu inkubacji zjawiła się u 24 (22%) szczepów, w piątym 33 (30%), w szóstym 16 (14%), w siódmym 19 (18%). Wyjątkowo objaw ten pojawił się później: u szczepu WY-C (1%) w ósmym, a u B-2610 (1%) w dziesiątym dniu inkubacji.
Przytoczona literatura i badania własne wskazują na znaczne rozbieżności w wynikach u różnych autorów odnośnie właściwości biochemicznych B. larvae. Wydaje się zatem potrzebne przeprowadzenie oceny cytowanych prac. Za wartościowe należy uznać doniesienie, które napisał Azuma i Kitaoka (1965). Także Gordon, Haynes i Pang (1973) opublikowali cenną pracę. W obydwu przypadkach przeprowadzono bowiem metodyczne badania, którym poddano także szczepy pochodzące z innych krajów.
Doniesienie Drobníkovej (1978) z Czechosłowacji jest wartościową pracą. Badania prowadzono tu na 96 szczepach. Należy jednak żałować, że wykonano tylko nieliczne próby biochemiczne.
Praca Miki (1968) dotycząca głównie szczepów B. larvae z byłego województwa opolskiego jest doniesieniem wartościowym, gdyż autor ten wykonał również badanie biologiczne. Mianowicie endosporami B. larvae otrzymanymi z hodowli wywołał on tę chorobę u czerwia pszczelego.
strona 151Rozbieżność wyników uzyskanych w tej pracy i przez Mikę (1968) należy tłumaczyć odmienną metodyką stosowaną przez tego autora.
Zahaczewska i Furowicz (1964) donoszą, że badane przez nich drobnoustroje na podłożu płynnym rosły na jego powierzchni w postaci białego kożuszka, przylegającego ściśle do ścianek probówki. Nie udało się tego potwierdzić w naszych badaniach. Na pożywce płynnej stosowanej do wykrywania redukcji azotanów do azotynów laseczka ta tworzyła w płynie płatkowate błonki, które przy wstrząsaniu wytwarzały jednolite zmętnienie. Błonki te opadały na dno tworząc osad. Dane własne są zasadniczo zgodne z obserwacjami, które wykonał Azuma i Kitaoka (1965). Odmienny był wygląd hodowli badanych szczepów na podłożu stałym (ryc. 1) przy zestawieniu ze zdjęciem Zahaczewskiej i Furowicza (1964).
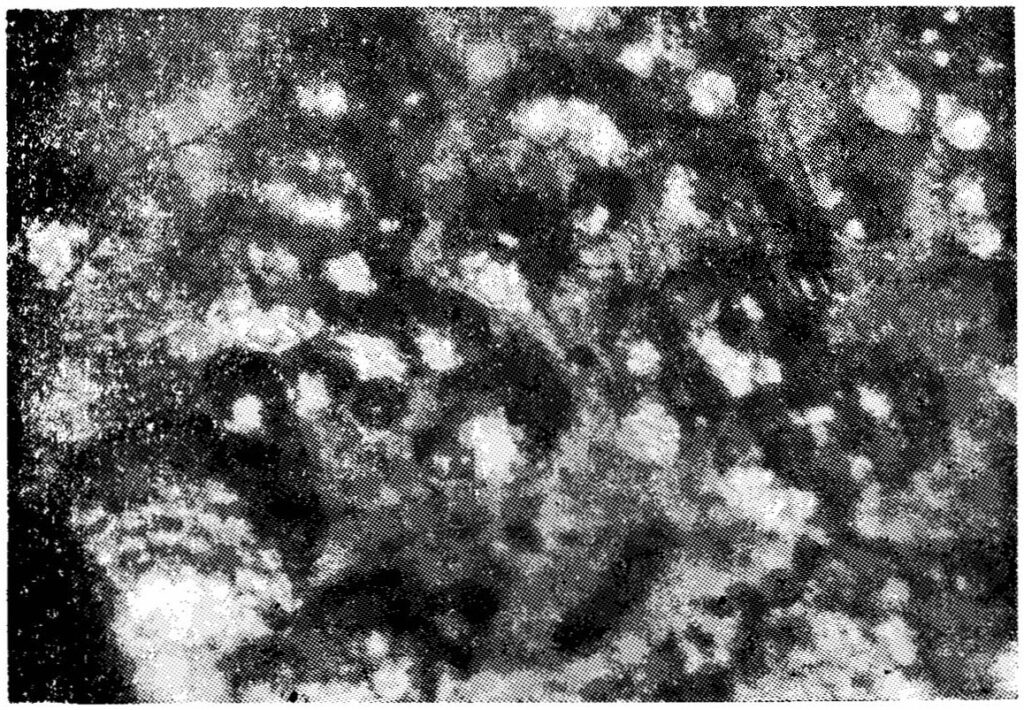
Ryc. 1. Nieco powiększone kolonie B. larvae na zmodyfikowanym podłożu Willisa i Hobbs
Na podstawie uzyskanych wyników i ich konfrontacji z danymi, które uzyskał Azuma i Kitaoka (1965) oraz ze stwierdzeniami Drobníkovej (1978), a także Gordona, Heynes’a i Pang’a (1973) wolno chyba przyjąć, że zastosowane metody własne mogą być przydatne w badaniach. Powinny one służyć do wykrywania cech biochemicznych i identyfikacji B. larvae.
W świetle badań własnych za stałe właściwości tej laseczki trzeba uznać: tworzenie proteaz, lipaz oraz siarkowodoru, następnie brak katalazy i rozkładu skrobi oraz tworzenie kwasu z trehalozy, glukozy i glicerolu. Brak rozkładu ramnozy, laktozy, melecytozy, rafinozy, adonitolu, dulcitolu oraz eskuliny są również stałymi cechami B. larvae.
Metody zastosowane przez nas mogą być przydatne do typowania biochemicznego tej laseczki, indentyfikacji szczepów oraz w dochodzeniu epizootiologicznym. Ustalanie trzech właściwości biochemicznych, które
strona 152w przypadku B. larvae różnią się u poszczególnych szczepów jest tu istotne. Dla typowania tych drobnoustrojów należy określić rozkład mannitolu oraz tworzenie kwasu z salicyny, a także zbadać czy redukują one azotany do azotynów. Na podstawie tych cech można wyróżnić typy biochemiczne B. larvae. Według dostępnego piśmiennictwa podział ten nie był dotychczas przez nikogo proponowany.
Można uważać za dostatecznie udokumentowany fakt występowania obok siebie szczepów B. larvae redukujących azotany do azotynów i nie wykazujących tej cechy. Warto tu zwrócić uwagę na pracę Drobníkovej (1978). Autorka ta podaje, że 15% z 96 badanych przez nią szczepów nie redukowało azotanów do azotynów. Dane te wydają się nie być w sprzeczności z obserwacjami, które wykonał Azuma i Kitaoka (1965). Autorzy ci stwierdzili redukcję azotanów do azotynów w pożywce z dodatkiem KNO₃ jak i bez tej soli w zmodyfikowanym podłożu Holsta i Sturtevanta przez 12 badanych szczepów.
Wytwarzanie kwasu z salicyny tylko przez niektóre szczepy wydaje się nie być w sprzeczności z danymi o wolnej fermentacji tego glukozydu przez wszystkie badane szczepy, które uzyskał Azuma i Kitaoka (1965). Autorzy ci donoszą o wyniku dodatnim dopiero w 9 dniu, podczas gdy niektóre szczepy już w drugim dniu spowodowały zakwaszenie podłoża. Badania własne kończono w 5 dniu inkubacji zatem mógł mieć tu znaczenie czas.
Rozkład manitolu przez 19 szczepów ze 110 badanych nie wydaje się być w sprzeczności z danymi o braku fermentacji tego alkoholu wielowodorotlenowego przez 12 badanych szczepów, które miał do dyspozycji Azuma i Kitaoka (1965). Gordon, Haynes i Pang (1973) stwierdzili tworzenie kwasu przez pewne szczepy, co potwierdzono u szczepu wzorcowego B-3554. Natomiast w badaniach własnych szczep B-2605 nie rozkładał mannitolu, odmiennie niż wykazali ci autorzy. Tu nie potwierdzono odczynu dodatniego, a w przypadku szczepu B-3558 ujemnego, gdyż rozkładał on ten alkohol wielowodorotlenowy, co według Gordona’a, Haynes’a i Pang’a (1973) nie powinno mieć miejsca. Autorzy ci stosowali jednak pożywkę płynną, a odczyty wykonywali w 7 i 14 dniu inkubacji. Zastosowana przez tych badaczy metoda jest dosyć pracochłonna, bo przy odczycie pobierano nieco płynnej pożywki, którą mieszano z kroplą 0,04% alkoholowego roztworu purpury bromokrezolowej. Zdaniem tych autorów zauważa się bowiem niekorzystny wpływ wskaźnika pH na wzrost B. larvae. W badaniach własnych stosowano oryginalne podłoże, na którym laseczka ta dobrze rosła po posiewie znacznej ilości bakterii. Ewentualnie hamujący wpływ purpury bromokrezolowej nie grał większej roli. Stosowano jednak roztwór wodny tego wskaźnika w ilości 0,008 g/1000 cm³ podłoża. Użyta w pracy pożywka wydaje się być bardziej ekonomiczną w warunkach naszego kraju, pominięto w niej bowiem „Neopeptone czy Tryptone — Difco” oraz tiaminę. Dodano natomiast skrobię rozpuszczalną produkcji polskiej. Cukry, alkohole wielowodorotlenowe i glukozydy stanowiły 0,5%
strona 153pożywki, a nie 1% jak to było w pracy, którą wykonał Azuma i Kitaoka (1965). Wydaje się, że taki skład podłoża czyni je bardziej przystępnym dla naszych Pracowni Chorób Pszczół Zakładów Higieny Weterynaryjnej.
Rozbieżność zdań, często dość znaczna w zakresie właściwości biochemicznych B. larvae jest zjawiskiem niekorzystnym, utrudniającym porównywanie szczepów pochodzących z różnych krajów. Przyczyny odmiennych opinii są zapewne różnorodne. Wydaje się, że czasem badacze korzystają z wyizolowanych przez siebie szczepów, których przynależność do gatunku B. larvae jest wątpliwa. Różnorodność metod i szczepów używanych do badań zapewne nie ułatwia ujednolicenia poglądów dotyczących właściwości biochemicznych laseczki zgnilca złośliwego.
Wydaje się, że stosowane w badaniach szczepy są często populacją niejednorodną, gdyż mało prawdopodobne jest uzyskiwanie kolonii B. larvae z jednej komórki bakteryjnej. Badania własne szczepów wzorcowych dotyczące rozkładu mannitolu zdają się potwierdzać tę opinię.
Tabela 3 Zestawienie właściwości B. larvae pozwalających na wyróżnienie typów biochemicznych proponowanych przez autora List of B. larvae properties which distinguisch biochemical types suggested by the author
| Typ biochemiczny Biochemical type | Redukcja azotanów do azotynów Reduction of nitrate to nitrite | Wytwarzanie kwasu z mannitolu Acid production from mannitol | Wytwarzanie kwasu z salicyny Acid production from salicin | Szczepy należące do typu biochemicznego Strains which belong to this type |
|---|---|---|---|---|
| I | — | — | — | B-3650; BY-1; GOZ-2; OP-3; S/77; SU-3 i 36 innych — and 36 other |
| II | + | — | — | B-2605; B-4193; B-4194; BG-9; BG-11; BG-12; BG-13; BG-14; OP-2; OP-4; RZ-1; WY-A i 30 innych — and 30 other |
| III | — | + | — | 2 inne — 2 other |
| IV | — | — | + | BK-3 i 1 inny — and 1 other |
| V | + | — | + | B-2610; RZ-2; WY-C i 2 inne — and 2 other |
| VI | + | + | — | B-3554; B-4195; GO-1; SU-1 i 8 innych — and 8 other |
| VII | + | + | + | B-3558; BK-4 i 3 inne — and 3 other |
| VIII | — | + | + | Szczepy dotychczas nieznane — No strains are known |
Objaśnienia — Key: + = odczyn dodatni — positive reaction. — = odczyn ujemny — negative reaction.
strona 154Takie cechy biochemiczne jak redukcja azotanów do azotynów, rozkład mannitolu oraz tworzenie kwasu z salicyny są właściwościami, które pozwalają na wyróżnienie 8 typów biochemicznych z materiału poddanego badaniom. Stwierdzono przedstawicieli siedmiu z nich (tabela 3). Dotychczas nie wykryto szczepu przynależnego do typu biochemicznego oznaczonego cyfrą VIII. Przedstawione zestawienie (tabela 3) wskazuje, że najwięcej z badanych szczepów, bo aż 84 nie rozkładało mannitolu i salicyny. Połowę z nich (łącznie z B-3650) zaliczono do I typu biochemicznego, gdyż nie redukowały one azotanów do azotynów. Pozostałe 42 szczepy stanowiące 38% ogólnej liczby zbadanych tworzyły azotyny i oczywiście nie rozkładały mannitolu i salicyny. Zaliczono je do II typu biochemicznego. Wśród nich umieszczono również szczep B-2605. Do trzeciego typu biochemicznego zaliczono tylko dwa szczepy. Nie redukowały one azotanów do azotynów, nie tworzyły kwasu z salicyny, ale rozkładały mannitol. Tak do tego typu biochemicznego jak i do IV nie zaliczono żadnego szczepu wzorcowego. Nie stwierdzno bowiem wśród nich takiego przedstawiciela, który nie redukowałby azotanów do azotynów, nie rozkładałby mannitolu, a tworzyłby kwas z salicyny. Tylko dwa spośród badanych szczepów wykazały takie cechy i postuluje się dla nich oddzielny IV typ biochemiczny. Nieco częściej zanotowano takie właściwości jak tworzenie kwasu z salicyny, redukcję azotanów do azotynów i brak rozkładu mannitolu. Cechy takie stwierdzono u pięciu szczepów (5%), a wśród nich u B-2610 i zaproponowano wydzielenie dla nich V typu biochemicznego. Redukcją azotanów do azotynów cechowało się 11 dalszych szczepów (10%), które poza tym rozkładały mannitol, a nie tworzyły kwasu z salicyny. Zaliczono je (łącznie z B-3554) do VI typu biochemicznego. Nieco inaczej zachowało się 6 szczepów (5%), które tworzyły kwas z salicyny, rozkładały mannitol i redukowały azotany do azotynów. Postuluje się dla nich wydzielanie VII typu biochemicznego. Zaliczono tu szczep wzorcowy B-3558.
Wyniki badań dotyczących występowania proponowanych typów biochemicznych w poszczególnych województwach zestawiono w tabeli 4. Najwięcej szczepów pochodziło z województwa poznańskiego. I typ biochemiczny miał 40 przedstawicieli. Szczepy zaliczone wyłącznie do tego typu wyosobniono z materiału chorobowego pochodzącego z następujących województw: bydgoskiego, słupskiego, szczecińskiego, toruńskiego i włocławskiego. Tylko z województwa poznańskiego wyosobniono 15 przynależnych tu szczepów, poza tym z tego terenu pochodziło 10 szczepów z II, 1 z III, 3 z VI i 2 z VII typu biochemicznego. Przedstawicieli II typu wyizolowano z materiału chorobowego pochodzącego z następujących województw: kaliskiego, konińskiego, leszczyńskiego, opolskiego, pilskiego i wymienionego już poznańskiego. Kaliskie reprezentowały poza tym szczepy typu I, V i VI, konińskie I i VI, leszczyńskie I, III, V i VI, opolskie I (1 szczep), pilskie IV (1 szczep). Województwo białostockie miało 1 przedstawiciela IV typu biochemicznego, gorzowskie I i VI, rzeszowskie I i V, suwalskie I i VI i zielonogórskie VI. Nie przy-
strona 155Tabela 4 Występowanie określonych typów biochemicznych w poszczególnych województwach Occurrence of designating biochemical types in particular provinces
| Województwo Province | Liczba zbadanych szczepów z poszczególnych typów biochemicznych Number of tested strains from particular biochemical types: I | Liczba zbadanych szczepów z poszczególnych typów biochemicznych Number of tested strains from particular biochemical types: II | Liczba zbadanych szczepów z poszczególnych typów biochemicznych Number of tested strains from particular biochemical types: III | Liczba zbadanych szczepów z poszczególnych typów biochemicznych Number of tested strains from particular biochemical types: IV | Liczba zbadanych szczepów z poszczególnych typów biochemicznych Number of tested strains from particular biochemical types: V | Liczba zbadanych szczepów z poszczególnych typów biochemicznych Number of tested strains from particular biochemical types: VI | Liczba zbadanych szczepów z poszczególnych typów biochemicznych Number of tested strains from particular biochemical types: VII |
|---|---|---|---|---|---|---|---|
| Białystok | 1 | 1 | |||||
| Bydgoszcz | 1 | ||||||
| Gorzów Wlkp. | 1 | 1 | |||||
| Kalisz | 4 | 7 | 1 | 2 | |||
| Konin | 8 | 4 | 2 | ||||
| Leszno | 3 | 3 | 1 | 1 | 1 | ||
| Opole | 1 | 2 | |||||
| Piła | 2 | 1 | |||||
| Poznań | 15 | 10 | 1 | 3 | 2 | ||
| Rzeszów | 1 | 1 | |||||
| Słupsk | 1 | ||||||
| Suwałki | 1 | ||||||
| Szczecin | 1 | ||||||
| Toruń | 1 | ||||||
| Włocławek | 2 | ||||||
| Zielona Góra | 1 |
Objaśnienie: Brak danych w rubryce znaczy, że nie wyosobniono szczepu przynależnego do określonego typu biochemicznego. Key: No data in the space mean — there wasn’t found strain which belong to particular biochemical type.
jęto, że materiał chorobowy otrzymany z pracowni w Bydgoszczy, Białymstoku, Gorzowie Wlkp, Opolu, Rzeszowie i Suwałkach pochodzi z terenów tych województw.
Podsumowując należy stwierdzić, że wszystkie szczepy krajowe B. larvae, które badano były katalazoujemne oraz rozkładały glicerol. Wykazano tworzenie siarkowodoru przez laseczkę zgnilca złośliwego. Doniesiono o polskich szczepach B. larvae, które nie redukują azotanów do azotynów. Dane te oraz niformacje o H₂S pozwalają na lepszą charakterystykę szczepów krajowych laseczki zgnilca złośliwego.
WNIOSKI
Przedstawiony w pracy podział na 7 typów biochemicznych B. larvae mógłby być podstawą dalszych dotyczących występowania związków lub ich braku między właściwościami biochemicznymi a chorobotwórczością. Za możliwością istnienia takich powiązań zdaje się przemawiać zestawienie proponowanych typów z liczbą miejscowości, w których stwierdzono zgnilec złośliwy w 1976 r. na terenie Polski. Zauważa się bowiem
strona 156pewną zbieżność między często notowanymi przypadkami tej choroby w danym województwie, a zwiększoną liczbą szczepów VI i VII typu biochemicznego, które wyizolowano z jego terenu. Korelację taką można zaobserwować w województwach: białostockim, kaliskim, konińskim i suwalskim. Nie jest to jednak reguła, gdyż w innych województwach zależność ta nie wystąpiła.
Autor pragnie wyrazić serdeczne podziękowanie Panu Prof. dr hab. Marianowi Truszczyńskiemu za pomoc w wykonywaniu pracy.
LITERATURA
- Azuma R., Kitaoka S., 1965: Cultivation and properties of Bacillus larvae and decrease of its proteolytic activity on glucose media. Nat. Inst. Anim. Hlth Quart., 5: 138—145.
- Bitner A. R., 1971: Nitrite test as an aid in the identification of Bacillus larvae grown in yeast-starch agar. Am. Bee J., 111: 385, 391.
- Drobníková V., 1978: Diagnostika Bacillus larvae — původce moruvčeliho plodu. Veterinárni Medicina, 23: 185—191.
- Gibson T., Gordon R. E., (Bergey), 1974: Endosporeforming rods and cocci, Part 15, pp. 529—575. In: „Bergey’s Manual of Determinative Bacteriology„. 8th ed. R. E. Buchanan and N. E. Gibbons, Eds. Williams and Wilkins Co., Baltimore.
- Gordon R. E., Haynes W. C., Pang C. H. — N., 1973: „The genus Bacillus’. Handb. Agric. U.S. Dep. Agric. No. 427.
- Jeliński M., Kostecki R., Służewska M., 1976: Aktywność lipolityczna Bacillus larvae White. Medycyna Weterynaryjna, 32: 600—602.
- Jeliński M., 1978: Niektóre właściwości biochemiczne Bacillus larvae White. vol. I, p. 209. In: „PTNW Biuletyn VI Zjazdu Wrocław 21—23 września 1978 r.„. Wrocław.
- Jeliński M., 1985: Some biochemical properties of Bacillus larvae White. Apidologie, 16(1) — (w druku).
- Mika J., 1968: Badania nad właściwościami szczepów laseczki lary (Bacillus larvae White) występujących na terenie woj. opolskiego. Medycyna Weterynaryjna, 24: 409—412.
- Zahaczewska M., Furowicz A., 1964: Próba biochemicznej identyfikacji lasecznika larwy (Bacillus larvae White) przy zgnilcu złośliwym (histolysis infectiosa perniciosa larvae). Medycyna Weterynaryjna, 20: 730—733.
ПРОБА КЛАССИФИЦИРОВАНИЯ РАЗНЫХ ТИПОВ BACILLUS LARVAE WHITE
М. Елиньски
Резюме
Исследовали биологические свойства 110 штаммов B. larvae. Сохраняли их на измененной питательской среде Чилиса и Тоббе в пробирках. В чашках Петри с этой средой исследовали липализу и искали каталазу. Для отметения разщепления крахмала готовили измененную питательную среду Чиллиса и Тоббе с подевлением 1% этого полисахарида. Прежде этого в чашках с этой
strona 157средой отметили появление протеиназ. Для исследования образования кислоты из некоторых сахаров, гликозидов, адонита, дульцита, глицерина и маннита добавляли их в количестве 0,5% до среды. Образование сероводорода исследовали на скосе среды в пробирках с добавлением 0,02% раствора хлористоводородной соли DL — цистеина.
Для Исследования восстанавливания интратов в нитриты готовили следующую среду: 1% дрожжевый экстракт, 1% растворительный крахмал, 0,01% KN0₃, 0,04% CaCl₂ и вода. Установили, что все исследованные штаммы образуется липазы и протеиназы, но время появления деятельности этих ферментов неодинаковая. Исследованные штаммы не разщепливали крахмала и были каталазоотрицательными. Они образовали сероводород. Только 59% штаммов восстанавливало интраты в интриты. Исследованные штаммы разщепляли глюкозу, станавливало нитраты в нитриты. Исследованные штаммы разщепляли глюкозу, лактозы, инулина, кислозы, лактозы, мальтозы, сахарозы, адонита,дульцита и эскулина они кислоты не образовали. Маниит расщепляло 18%, а салицин 11% штаммов. Предложили выделение не менее 7 биологических типов. Разделение их основали на следующих свойствах: редукция нитратов в нитриты, расщепляние маннита и образование кислоты из салицина.
AN ATTEMPT AT CLASSIFICATION OF VARIOUS TYPES OF BACILLUS LARVAE WHITE
M. Jeliński
Summary
The biochemical properties of 110 strains of B. larvae were determined. These were maintained on modified Willis and Hobbs medium slants. They were examined on the plates of this medium for lipolysis and catalase. The modified Willis and Hobbs medium with 2% soluble starch was prepared for examination of proteolysis and starch hydrolysis. In the another test acid production from certain sugars, polyhydric alcohols and glycosides was determined. Biphasic cultures were prepared for examination of hydrogen sulphide production. 0,02% solution (w/v) DL-cysteine-HCl was added here to cover the slant. Nitrate reduction broth medium of the following composition was used: yeast extract (1%), soluble starch (1%), KNO₃ (0,01%), and CaCl₂ (0,04%). It was determined that all strains produced lipases and proteases on the test media, but varied widely in the time of appearance of the former. Only fifty-nine percent of the strains reduced nitrate to nitrite. All strains of B. larvae were catalase negative. None of the strains hydrolyzed starch. All strains tested released hydrogen sulphide from added cysteine-HCl. All strains metabolized glucose, trehalose, and glycerol with production of acid. None of the strains produced acid from: arabinose, fructose, galactose, inulin, xylose, lactose, maltose, melezitose, raffinose, rhamnose, saccharose, adonitol, dulcitol and aesculin. Relatively few strains attacked mannitol (18%). Even fewer strains hydrolyzed salicin (11%). Variations among strains in reduction of nitrate to nitrite, hydrolysis of mannitol, and production of acid from salicin permit one to distinguish at least 7 biochemical types of B. larvae.
Errata — błędy druku znalezione podczas digitalizacji
- s. 150, tab. 2: „course od appearance” → course of appearance
- s. 150, tab. 2: „ilczba” → liczba
- s. 150: „szzczepów” → szczepów
- s. 151: „Heynes’a” → Haynes’a
- s. 151: „indentyfikacji” → identyfikacji
- s. 152: „manitolu” → mannitolu
- s. 152: „Gordona’a” → Gordona
- s. 153, tab. 3: „distinguisch” → distinguish
- s. 154: „stwierdzno” → stwierdzono
- s. 155: „niformacje” → informacje
- s. 156, piśmiennictwo: „moruvčeliho” → moru včelího
- s. 156, piśmiennictwo: „Veterinárni” → Veterinární
- s. 156, piśmiennictwo: „laseczki lary” → laseczki larwy
- s. 156, streszczenie: „питательской” → питательной
- s. 156, streszczenie: „разщепления” → расщепления
- s. 156, streszczenie: „с подевлением” → с добавлением
- s. 157, streszczenie: „интратов” → нитратов
- s. 157, streszczenie: „KN0₃” → KNO₃
- s. 157, streszczenie: „интраты в интриты” → нитраты в нитриты
- s. 157, streszczenie, 2×: „разщепляли” → расщепляли
- s. 157, streszczenie: „кислозы” → ксилозы
- s. 157, streszczenie: „Маниит” → Маннит
- s. 157, streszczenie: „расщепляние” → расщепление