

PORÓWNANIE PSZCZOŁY PODKARPACIA Z PSZCZOŁAMI PÓŁNOCNEJ POLSKI (APIS MELLIFICA MELLIFICA L.) I DORZECZA DUNAJU (APIS MELLIFICA CARNICA POLLM.)
tekst: Michał Gromisz
Pszczelnicze Zeszyty Naukowe, Rok XI, 1967 — Michał Gromisz
strona 1PSZCZELNICZE ZESZYTY NAUKOWE ROK XI, Nr 1—3 WRZESIEŃ 1967
Michał Gromisz
Oddział Pszczelnictwa I.S.
WSTĘP
W Europie zostały wyodrębnione i opisane różne podgatunki i rasy geograficzne pszczół, które ukształtowały się w swoistych środowiskach i różnią się między sobą morfologicznie i biologicznie. O geograficznym rozprzestrzenieniu tych ras, ich zasięgu terytorialnym ciągle jeszcze wiemy mało, jakkolwiek informacje o przydatności użytkowej wielu z nich są nieraz dość szczegółowe. Opinie polegają jednak przeważnie na obserwacjach sporadycznych, obejmują tylko lokalne formy podgatunku, a poza tym mają często charakter sensacyjno-odkrywczy. Tak na przykład było z Apis mellifica ligustica Spin., a obecnie jest z pszczołą anatolską. W poszukiwaniu nieznanych, geograficznych ras pszczół o dużej gospodarczej wartości pszczelarze zapominają często, że klucz do osiągnięć na tym polu leży przede wszystkim w polepszeniu miejscowej pszczoły drogą selekcji i odpowiedniego doboru.
Do lepiej poznanych, ale mimo to niedostatecznie opracowanych, należy podgatunek Apis mellifica carnica Pollm. O pożytecznych zaletach tych pszczół wiemy bardzo dużo. Są one cenione od dawna i dobra opinia o nich utrzymuje się nadal, lecz lepiej poznane zostały one tylko na terenie Austrii i częściowo Jugosławii. Tymczasem zasięg tego podgatunku, jak się przypuszcza, sięga daleko poza te kraje. Na północ przekracza on prawdopodobnie granice Polski w rejonie Karpat. Nasza pszczoła na Podkarpaciu może stanowić jedną z wielu jego lokalnych form. Przeważający obszar naszego kraju, jego środkową i północną część, zamieszkuje bez wątpienia Apis mellifica mellifica L.
W pracy tej starano się porównać pod względem morfologicznym naszą pszczołę podkarpacką z pszczołami północnej Polski — A.m. mellifica L. — i dorzecza Dunaju, z terenu Węgier i Bułgarii — A.m. carnica Pollm.
^* Praca niniejsza jest dysertacją doktorską Autora na SGGW w Warszawie.
strona 2PRZEGLĄD LITERATURY
W obrębie opisanego przez Linneusza gatunku Apis mellifica L. który zamieszkuje Europę i inne kontynenty, wyróżniono później kilka podgatunków. Dwa z tych podgatunków Apis mellifica mellifica L. i Apis mellifica carnica Pollm., występują w Europie środkowej; pierwszy w północnej, drugi w południowej jej części (Goetze 1940, Ałpatow 1948, Carlisle 1955).
Naturalny zasięg A.m. mellifica wykracza daleko poza Europę środkową. Cała północna część naszego kontynentu jest zamieszkała przez tę pszczołę (Goetze 1940, 1964). A.m. carnica zajmuje natomiast dorzecze Dunaju i część Półwyspu Bałkańskiego. Trudno jest jednak dokładnie określić granice obszaru, jaki ona zamieszkuje. Pszczoła ta została lepiej poznana tylko na terenie Austrii i częściowo Jugosławii (Goetze 1940, 1964, Ruttner 1960, 1965, Rihar 1960, 1961, Vlatkovic i Kulinčevic 1959). Również pszczoły Słowacji i Węgier, według Rytiřa (1929, 1930), Oeroesi — Pala (1934) i Bakka (1955), odpowiadają typowi A.m. carnica. Ruttner (1960, 1965) przypuszcza, że zasięg A.m. carnica w kierunku wschodnim, obejmuje dorzecze środkowego i dolnego Dunaju, rumuńskie Karpaty, Bułgarię i dochodzi aż do Morza Czarnego. Występują tam tylko różne jej lokalne odmiany na przykład pszczoła macedońska lub karpacka.
Na podstawie długości języczka pszczół robotnic Goetze (1940, 1964) oznaczył północny zasięg A.m. carnica. W granicach tego zasięgu znalazła się południowa część Polski, w rejonie Karpat. Na naszym Podkarpaciu schodzą się więc zasięgi dwóch podgatunków: A.m. carnica i A.m. mellifica. Wzmianki o wpływie A.m. carnica na kształtowanie się pogłowia naszych podkarpackich pszczół można było spotkać i w rodzimym piśmiennictwie (Menderala 1948, Demianowicz 1951). Zostały one potwierdzone w pełni przez masowe badania morfologiczne pszczół w Polsce (Gromisz 1961, Bornus i Gromisz 1963, Bornus, Demianowicz i Gromisz 1966).
Obecnie A.m. carnica można spotkać daleko poza jej naturalnym zasięgiem. Jako pszczoła o dużych zaletach gospodarczych jest ona chętnie importowana i rozpowszechniana (Goetze 1940, 1964, Weiss 1954, Braun 1955, Ruttner 1960, Bährmann 1962). Już w sześćdziesiątych latach ubiegłego stulecia A.m. carnica była przedmiotem ożywionego handlu. Z Karyntii i z Krainy (obecnej Słowenii) rochodziły się przesyłki z tą pszczołą niemal po całej Europie (Ruttner 1960). W owych czasach była ona ceniona głównie za jej dużą łagodność i skłonność do rójki (możliwość szybkiego rozmnażania). Zainteresowanie się A.m. carnica nie maleje i obecnie. Jest faworyzowana przez hodowców niektórych krajów i wypiera tam stopniowo, na przykład w Niemczech, pszczołę środkowoeuropejską (Bährmann 1962). Dzięki
strona 3długiemu języczkowi jest ona, podobnie jak A.m. ligustica Spin. i A.m. caucasica Gorb., zdolna zapylać kwiaty roślin z głęboko ukrytym nektarem, przede wszystkim koniczynę czerwoną.
Systematyka pszczół w ramach gatunku Apis mellifica opiera się na porównaniu cech morfologicznych i biologicznych. Udział cech morfologicznych w badaniach taksonomicznych jest znacznie większy niż cech biologicznych. Przewaga ich polega raczej nie na ilości, ale na jednoznaczności pomiaru i możliwości zastosowania na szeroką skalę w badaniach metod statystyczno-matematycznych. Poza tym cechy morfologiczne w mniejszym stopniu podlegają zmienności pod względem środowiska, niż cechy biologiczne, są zatem pewniejszym wskaźnikiem przynależności pszczół do tej czy innej rasy. Zmienność cech morfologicznych pszczół, która ma między innymi charakter sezonowy, można w pracach taksonomicznych w pewnym stopniu wyeliminować przez pobieranie materiału do badań w określonej porze roku (Michailoff 1927, Gromisz 1962, Bährmann 1964).
Do podstawowych cech morfologicznych w badaniach taksonomicznych zalicza się: wielkość pszczoły, długość języczka, wymiary przedniego skrzydła, kolor pancerza (Chochłow 1916, Skorikow 1929, Goetze 1930, 1940, 1964, Michailoff 1931, Ałpatow 1948). Niektórzy autorzy biorą jeszcze pod uwagę: rodzaj owłosienia pancerza pszczoły, rysunek użyłkowania na przednim skrzydle, liczbę haczyków na tylnym skrzydle, różnicę w budowie organów płciowych trutnia i w budowie aparatu żądłowego robotnicy, wielkość poszczególnych członów tylnego odnóża, pojemność wola miodowego ,liczbę rureczek jajnikowych matek, wymiary sternitów, wielkość lusterka woskowego, długość członów czułka, układ szczecinek na pierwszym członie stopy robotnicy, liczbę pierścieni, z których składa się glossa (Alpatow 1930, 1948, Komaroff i Alpatow 1934, Goetze 1940, 1959, 1964, Lukoschus 1954, Vlatkovic 1959, Droege 1960, Kolesnikow 1960, Bährmann 1963, 1965, Louis 1963, Demianowicz 1965, Du Praw 1965, el Bandy 1965, Ruttner 1965, Sekczijew 1965). W badaniach morfologicznych często są obliczane różne indeksy, wyrażające stosunek określonych cech, czy też pomiarów poszczególnych części ciała. Z tego rodzaju oznaczeń duże znaczenie w taksonomii uzyskał indeks kubitalny na przednim skrzydle robotnic (Michailoff 1931, Goetze 1940, Ałpatow 1948). Inne indeksy, na jakie można natrafić w pracach naukowych (Fąrcas 1939, Goetze 1940, Weiss 1955), wydają się nie mieć większego znaczenia. Wyjątkowo dużo indeksów w pomiarach pszczół zastosował Kolesnikow (1960) i el-Bandy (1965).
Cechy morfologiczne są wyrażone najczęściej liczbami mianowanymi. Charakteryzuje się nimi rój pszczół, w którym bada się pewną liczbę osobników. Wyniki pomiarów poszczególnych osobników — pszczół należy
strona 4zatem poddać opracowaniom matematyczno-statystycznym. Metody biometryczne do badań morfologicznych pszczół zastosował pierwszy Kożewnikow (w 1900 roku). Pod jego też kierunkiem wprowadził Chochłow (1916) do opracowań biometrycznych matematykę statystyczną w odniesieniu do długości języczka kilku ras. Zazwyczaj podgatunki czy rasy pszczół określa się rozpatrując każdą cechę oddzielnie. Tylko Michajłow (Michailoff 1931) oraz Bornus, Demianowicz i Gromisz (1966) przeprowadzili charakterystykę populacji pszczół na podstawie zespołu cech. Michajłow ograniczył się jednak do porównania kilkunastu zaledwie rojów, reprezentujących różne populacje. Natomiast pozostali autorzy dokonali masowego badania pszczół na terenie Polski. Zastosowali oni metodę matematyczną, opracowaną przez Instytut Matematyczny Polskiej Akademii Nauk we Wrocławiu (Florek i inni 1951, Perkal 1953, 1955).
Dla scharakteryzowania roju pod względem cech morfologicznych zazwyczaj dokonywało się pomiary około 100 pszczół. Miało to zapewnić dokładne obliczenie średniego błędu, a więc określenie przedziału, w jakim znajdzie się średnia rzeczywista dla badanego roju. Gromisz (1962) zwrócił uwagę, że w badaniach biometrycznych pszczół osiąga się również wystarczająco dokładne wyniki, dokonując pomiary mniej niż na 100 osobnikach.
Wprawdzie zwiększając liczbę badanych osobników w próbie zyskuje się na bardziej dokładnym określeniu średniego błędu średniej, ale to co zyskujemy na dokładności jest niewspółmiernie małe w porównaniu z nakładem pracy przy zwiększonych ilościowo pomiarach biometrycznych. Potwierdzają to niepublikowane jeszcze prace Zakładu Pszczelnictwa Instytutu Sadownictwa w zakresie opracowania matematyczno-statystycznego wymiarów przedniego skrzydła pszczół. W badaniach tych zwiększając liczbę osobników w próbie od 20 do 130 uzyskiwano wyraźnie widoczne na wykresie zmniejszanie się średniego błędu średniej do 30 osobników, później od 30 do 70 — zachodziło ono bardzo nieznacznie, od 70 do 130 było już prawie niewidoczne.
MATERIAŁ I METODA
POCHODZENIE MATERIAŁU
Na terenie Polski materiał do badań zebrano w latach 1956—1958. W krajach naddunajskich dokonano tego w 1964 roku, korzystając z uprzejmości i pomocy Országos Méhészeti Szövetkezeti Központ (Centrala Spółdzielni Pszczelarskich) na Węgrzech i Akademii Nauk Rolniczych oraz Ministerstwa Rolnictwa w Bułgarii.
Ogółem zgromadzono próbki pszczół z 210 rojów: 1) z północnej Polski — 47 próbek, 2) z południowej Polski — 74 próbki, 3) z Węgier
strona 5— 54 próbki i 4) z Bułgarii — 35 próbek. Położenie geograficzne tych wszystkich populacji zamykało się na obszarze pomiędzy 43° 30′ i 54° 30′ szerokości północnej oraz pomiędzy 16° 30′ i 27° 30′ długości na wschód od Greenwich (ryc. 1).
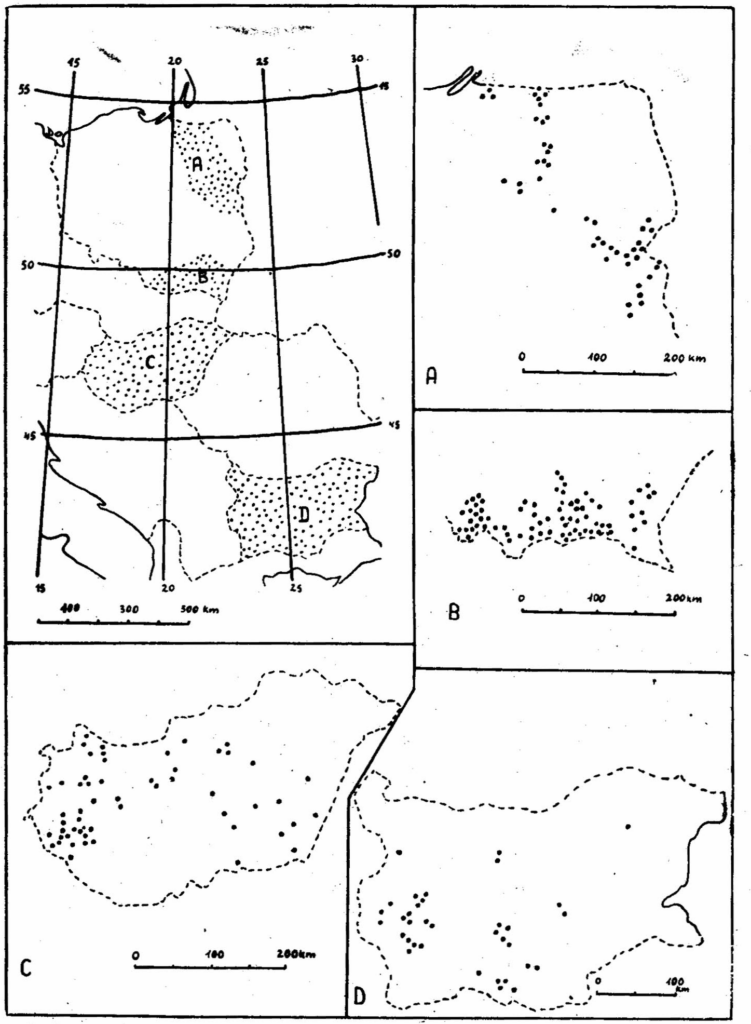
SPOSÓB POBIERANIA I UTRWALANIA PRÓBEK
Materiał gromadzono w miesiącach sierpień — wrzesień. Dzięki temu wszystkie badane osobniki pochodziły z podobnego okresu czerwienia. Eliminowało to w dużym stopniu różnice morfologiczne spowodowane zmiennością sezonową.
Z jednego roju pobierano 30—50 robotnic. Wybierano pszczoły młode, obsiadujące plastry z czerwiem, co miało gwarantować, że pochodzą one z wytypowanego roju. Zabicia pszczół dokonywano przez zanurzenie ich na przeciąg około 2 minut do wrzącej wody. Powodowało to dobre wyciągnięcie języczka pszczół. Po wyjęciu z wody umieszczano pszczoły w alkoholu 70—75%, w którym przechowywały się one aż do przeprowadzenia pomiarów biometrycznych.
POMIARY MORFOMETRYCZNE
Pomiary biometryczne przeprowadzono w latach 1958—1965. Oznaczano 8 cech morfologicznych (ryc. 2).
Wielkość pszczoły charakteryzowano sumą szerokości III i IV tergitu odwłokowego. Oznaczenia kolejności tergitów przyjęto wg Snodgrassa (1956). Tergity po wypreparowaniu umieszczono na szkiełku. Dla ułatwienia pomiaru obcinano im boczne brzegi (tergity są półksiężycowato wygięte). Pomiary wykonywano pod mikroskopem, po środku tergitu (powiększenie około 25 ×).
Długość języczka mierzono pod mikroskopem przy powiększeniu około 15 × po wypreparowaniu wargi dolnej. Sumę długości submentum, mentum i glossa z flabellum przyjęto za długość języczka.
Szerokość IV sternitu i wymiary lusterka woskowego określano przy powiększeniu około 25 ×. Najpierw wypreparowane sternity umieszczano w 10% roztworze NaOH na przeciąg 15—20 minut, aby ułatwić oczyszczenie preparatu, przez co uzyskiwano wyraźne kontury lusterek woskowych. Szerokość sternitu mierzono w najszerszym miejscu w linii przecinającej prawe lusterko. W celu obliczenia powierzchni lusterka (prawego) mierzono jego najdłuższą oś podłużną — długość (a) i najdłuższą poprzeczną — szerokość (b). Uzyskane wyniki podstawiono do zmodyfikowanego nieco wzoru na obliczenie powierzchni lusterka woskowego (P), który opracował Bornus (1960): P = 0,6908. ab.
Długość i szerokość przedniego skrzydła (prawego) mierzono po osi najdłuższej od nasady do jego końca i w najszerszym miejscu pod kątem prostym do osi długiej. Ze względu na to, że całe skrzydło nie mieściło się w polu widzenia mikroskopu (powiększenie około 15 ×), długość jego obliczano sumując pomiary dwóch odcinków a i b.
strona 7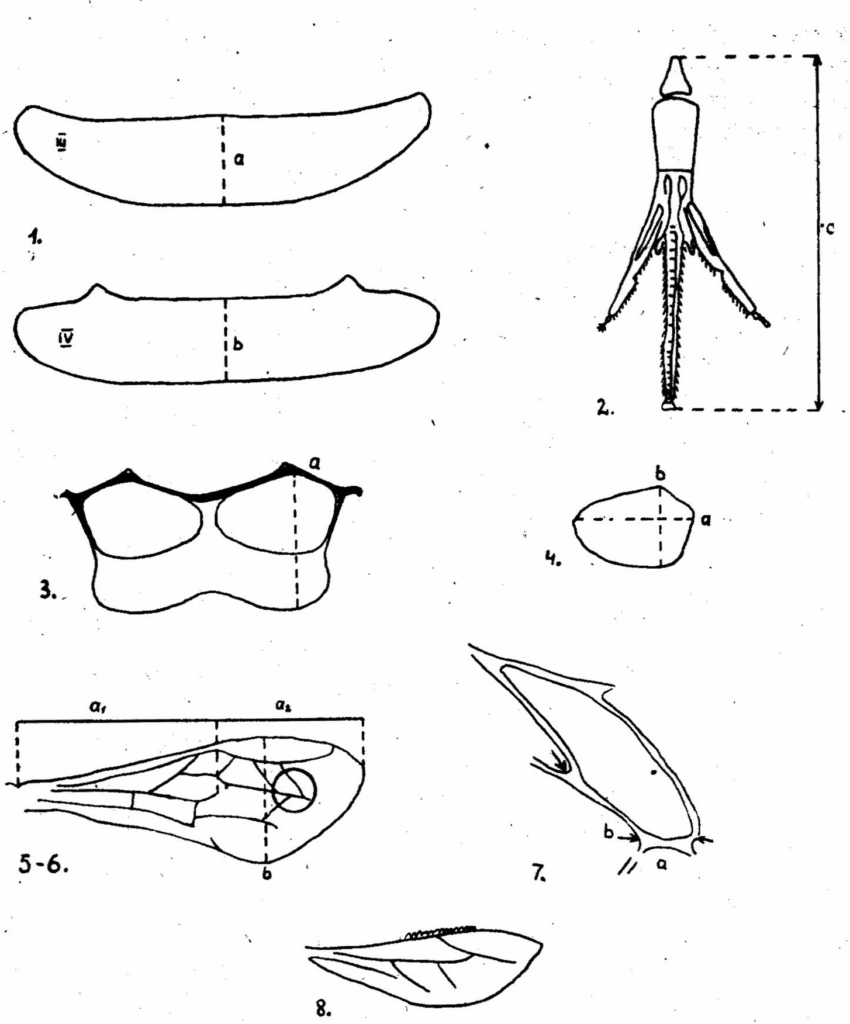
Indeks kubitalny określano metodą Ałpatowa (1948) według wzoru a · 100/b. Wyrażono go więc stosunkiem procentowym odcinków
strona 8krótszego do dłuższego, żyłki stanowiącej podstawę III komórki kubitalnej na prawym skrzydle. Pomiaru długości tych odcinków dokonywano na ekranie w specjalnie skonstruowanym aparacie, który powiększał około 180 × obraz skrzydła.
Haczyki na tylnym skrzydle (prawym) liczono przy powiększeniu około 50 ×. Dla ułatwienia tej pracy umieszczano w okularze mikroskopu czarną nitkę w ten sposób, że przepoławiała ona pole widzenia dobrze widoczną linią. Przesuwając preparat na stoliku krzyżowym można było nie myląc się liczyć haczyki w momencie, gdy one przesuwały się przez tę linię.
OPRACOWANIE MATERIAŁU MATEMATYCZNO-STATYSTYCZNE
Wszystkie pomiary pod mikroskopem odczytywano w podziałce szkiełka mikrometrycznego umieszczonego w okularze. Zostały one następnie przeliczone na milimetry i wtedy dopiero poddane dalszemu opracowaniu. W każdej próbce oznaczone były cechy morfologiczne 30 pszczół robotnic. Na podstawie tych oznaczeń obliczano średnie arytmetyczne (x̄) poszczególnych cech dla rojów (próbek). Dalsze opracowania matematyczno-statystyczne zostały oparte na tych wartościach średnich. Charakteryzują one poszczególne roje, jako jednostki całego zbioru próbek.
Dokonano analizy zmienności dla każdej z 8-miu cech morfologicznych, uwzględniając odrębności 4 badanych grup (populacji). Obliczono różnice graniczne — m1 i m2 — pomiędzy średnimi poszczególnych populacji, przyjmując dwa poziomy wiarogodności a1 = 0,05 i a2 = 0,01. Obliczono także wskaźniki zmienności (V) poszczególnych cech dla każdej populacji wg wzoru: s · 100/x̄, gdzie s oznacza standardowe odchylenia, a x̄ — średnią dla populacji.
DENDRYTOWE UPORZĄDKOWANIE ZBIORU ROJÓW
Materiałem wyjściowym do opracowania zbioru 210 rojów były wyniki pomiarów pięciu z 8-miu oznaczonych cech morfologicznych. Na podstawie tego zespołu cech dokonano dendrytowego uporządkowania całego zbioru, stosując tu metodę matematyków wrocławskich (Florek i inni 1951, Perkal 1953, 1955). Pozwala ona na podstawie wielu cech ustalić wzajemne podobieństwo między rojami i wykrywać skupienie tych rojów w całym zbiorze. Skonstruowanie dendrytu, przedstawiającego uporządkowany zbiór, poprzedzono normalizacją (zarytmetyzowaniem) badanych cech i sporządzeniem tablicy odległości między rojami według wzoru Czekanowskiego.
Wyodrębnienia grup rojów w zbiorze, jak również sprecyzowania granicy między nimi dokonano, dzieląc dendryt na części według metody
strona 9wrocławskiej (podział wrocławski), opracowanej przez Florka i innych (1951). Autorzy ci oznaczają moc podziału (mp) według wzoru: mp = S_p—1/S_p w którym: S_p = suma długości uporządkowania p części zbioru otrzymanych przez podział, a S_p—1 — suma długości uporządkowania p—1 części zbioru. Moc podziału mówi, ile razy zmniejsza się suma S_i przy przejściu od podziału na i = p — 1 części — do podziału na i = p części. Celem metody wrocławskiej jest dobieranie liczb p takich, żeby podział zbioru (jednostek) na p części był mocny — mocniejszy niż podział na p—1 części i mocniejszy niż podział na p + 1 części.
Podział dendrytu prowadzi do rozbicia zbioru rojów na części — grupy rojów. Przyjęto je nazywać typami w sensie miejsc skupienia.
WYNIKI
CHARAKTERYSTYKA MORFOLOGICZNĄ
Po uszeregowaniu średnich arytmetycznych dla 210 badanych rojów w zakresie 8 cech morfologicznych zwraca uwagę niejednakowe zróżnicowanie wartości poszczególnych cech wewnątrz całego zbioru. Stosunkowo mały rozrzut wartości średnich stwierdzono przy szerokości IV sternitu, szerokości skrzydła i liczbie haczyków. Natomiast średnie: wielkość pszczoły, długość języczka, powierzchnia lusterka woskowego, indeks kubitalny i długość skrzydła, mieszczą się w dość szerokich przedziałach. Gdy jednak analizowano oddzielnie wszystkie 4 zgromadzenia populacji pszczół, stwierdzono w każdej z nich rozrzut średnich arytmetycznych stosunkowo niewielki. Duża zmienność w ramach tego zbioru wynika zatem nie z małego wyrównania poszczególnych populacji, ale na skutek znacznych między nimi różnic wartości cech (tab. 1).
Wielkość pszczoły. Wspominano już o dużym zróżnicowaniu wartości sumy szerokości III i IV tergitu odwłokowego pomiędzy badanymi populacjami pszczół. Największe pszczoły występują na północy Polski, najmniejsze zaś w Bułgarii. Różnica między średnimi wartościami tej cechy dla tych obu populacji, geograficznie najodleglejszymi od siebie, wynosi 0,291 mm. Średnie dla pozostałych populacji mieszczą się w tym przedziale, a ich wartość wzrasta z zachowaniem pewnej kierunkowej regularności, od Bułgarii do północnej Polski. Najbardziej podobne do siebie wielkością są pszczoły bułgarskie i węgierskie, ale mimo to różnica między średnimi dla tych populacji jest wysoce istotna.
Pod względem wielkości pszczoły osobliwie przedstawia się populacja południowej Polski. Przede wszystkim zwraca uwagę duży rozrzut średnich dla rojów od 4,510 mm do 5,080 mm. W granicach tego przedziału mieści się prawie cały zbiór próbek, reprezentujący także
strona 10Tabela 1 Charakterystyka morfologiczna czterech populacji pszczół (średnie wartości i średnie błędy średnich) Morphological characteristic of 4 populations of bees (mean value and standard error of mean)
| Nazwa cechy / Name of feature | Populacja pszczół / Population of bees: wszystkie badane / all investigeted | Populacja pszczół / Population of bees: północnej Polski / Northern Poland | Populacja pszczół / Population of bees: południowej Polski / Southern Poland | Populacja pszczół / Population of bees: Węgier / Hungary | Populacja pszczół / Population of bees: Bułgarii / Bulgaria |
|---|---|---|---|---|---|
| Suma szerokości III i IV tergitu odwłokowego w mm | 4,784 | 4,915 | 4,837 | 4,699 | 4,624 |
| Sum of width of the III and IV tergite in mm | ,0096 | ,0094 | ,0142 | ,0079 | ,0152 |
| Długość języczka w mm | 6,325 | 6,104 | 6,278 | 6,485 | 6,474 |
| Length of tongue in mm | ,0117 | ,0061 | ,0109 | ,0107 | ,0177 |
| Szerokość IV sternitu w mm | 2,738 | 2,714 | 2,742 | 2,748 | 2,748 |
| Width of the IV sternite in mm | ,0027 | ,0033 | ,0049 | ,0059 | ,0054 |
| Powierzchnia lusterka woskowego na IV sternicie w w mm2 | 2,580 | 2,733 | 2,696 | 2,408 | 2,396 |
| Surface of wax plate on the IV sternite in mm2 | ,0120 | ,0117 | ,0100 | ,0105 | ,0156 |
| Długość przedniego skrzydła w mm | 9.318 | 9,385 | 9,394 | 9,235 | 9,198 |
| Length of front wing in mm | ,0088 | ,0100 | ,0130 | ,0130 | ,0151 |
| Szerokość przedniego skrzydła w mm | 3,199 | 3,174 | 3,217 | 3,201 | 3,189 |
| Width of front wing in mm | ,0034 | ,0049 | ,0073 | ,0050 | ,0060 |
| Indeks kubitalny | 53,1 | 63,2 | 54,2 | 45,7 | 48,7 |
| Value of cubital index | ,528 | ,618 | ,618 | ,368 | ,543 |
| Liczba haczyków | 21,1 | 20,5 | 20,9 | 21,7 | 21,4 |
| Number of hooks on the hind wing | ,063 | ,105 | ,108 | ,101 | ,118 |
Tabela 2 Wskaźniki zmienności cech morfologicznych w czterech populacjach pszczół Variation of coefficients of morphological features
| Nazwa cechy / Name of feature | Populacja pszczół / Population of bees: wszystkie badane / all investigated | Populacja pszczół / Population of bees: północnej Polski / Northern Poland | Populacja pszczół / Population of bees: południowej Polski / Southern Poland | Populacja pszczół / Population of bees: Węgier / Hungary | Populacja pszczół / Population of bees: Bułgarii / Bulgaria |
|---|---|---|---|---|---|
| Suma szerokości III i IV tergitu odwłokowego / Sum of width of the III and IV tergite | 2,90 | 1,31 | 2,52 | 1,24 | 1,95 |
| Długość języczka / Length of tongue | 2,69 | 0,69 | 1,50 | 1,21 | 1,62 |
| Szerokość IV sternitu / Width of the IV sternite | 1,44 | 0,83 | 1,55 | 1,58 | 1,16 |
| Powierzchnia lusterka woskowego / Surface of wax plate on the IV sternite | 6,74 | 2,93 | 3,19 | 3,22 | 3,86 |
| Długość przedniego skrzydła / Length of front wing | 1,37 | 0,73 | 1,19 | 1,03 | 0,97 |
| Szerokość przedniego skrzydła / Width of front wing | 1,54 | 1,06 | 1,96 | 1,14 | 1,11 |
| Indeks kubitalny / Value of cubital index | 14,40 | 6,71 | 9,52 | 5,92 | 6,59 |
| Liczba haczyków / Number of hooks on the hind wing | 4,32 | 3,52 | 4,46 | 3,42 | 3,27 |
pszczoły z Węgier, Bułgarii i północnej Polski. Wskazuje to na mieszany charakter pogłowia pszczół tej części naszego kraju. Dowodem tego są także: wysoki wskaźnik zmienności (V = 2,52%) i krzywa zmienności średnich z rojów (tab. 2, ryc. 3).
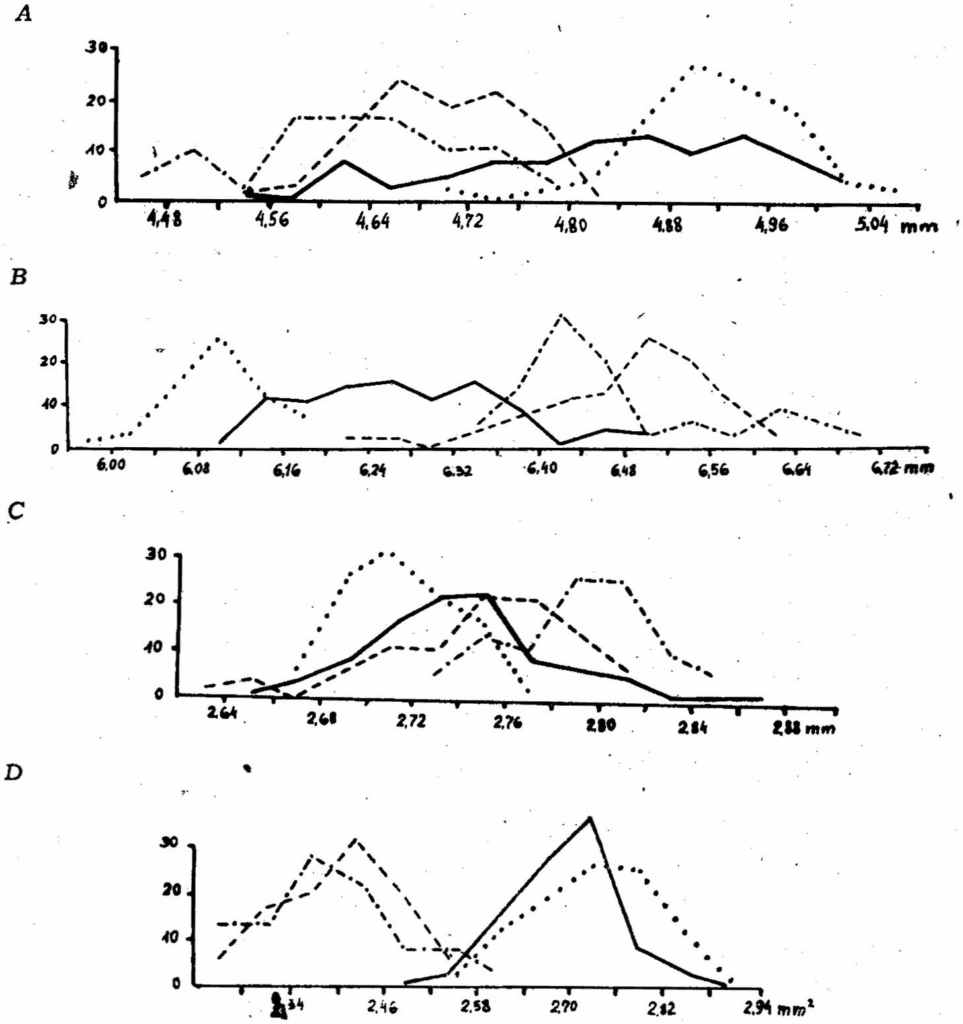
Długość języczka. Cecha ta jeszcze w większym stopniu różnicuje badane populacje niż suma szerokości III i IV tergitu odwłokowego. Ze
strona 13Tabela 3 Zestawienie wyników analiz zmienności 8 cech morfologicznych między czterema populacjami pszczół (F teoret. dla a1 — 2,65; dla a2 — 3,88) Results of the analysis of variance of 8 morphological features between 4 populations of bees (F theoretical for a1 — 2,65 and for a2 — 3,88)
| Nazwa cechy / Name of feature | F empiryczne / F empirical | Wartość różnic granicznych od….. do….. / Least significant mean difference from….. to……: a1 | Wartość różnic granicznych od….. do….. / Least significant mean difference from….. to……: a2 | Różnice pomiędzy wartościami średnich dla populacji / Differences between mean value for population: północna Polska— południowa Polska / Northern Poland— Southern Poland | Różnice …: północna Polska — Węgry / Northern Poland — Hungary | Różnice …: północna Polska — Bułgaria / Northern Poland — Bulgaria | Różnice …: południowa Polska — Węgry / Southern Poland — Hungary | Różnice …: południowa Polska — Bułgaria / Southern Poland — Bulgaria | Różnice …: Węgry — Bułgaria / Hungary— Bulgaria |
|---|---|---|---|---|---|---|---|---|---|
| Suma szerokości III i IV tergitu / Sum of width III and IV tergite | 91,17 | ,032— ,040 | ,042— ,053 | ,078** | ,216** | ,291** | ,138** | ,213** | ,075** |
| Długość języczka / Length of tongue | 222,64 | ,029— ,036 | ,038— ,048 | ,174** | ,381** | ,370** | ,207** | ,196** | ,011 |
| Szerokość IV sternitu / Width of the IV sternite | 8,76 | ,013— ,016 | ,017— ,022 | ,028** | ,034** | ,034** | ,006 | ,006 | 0 |
| Powierzchnia lusterka woskowego / Surface of wax plate | 231,84 | ,029— ,037 | ,039— ,048 | ,037* | ,325** | ,337** | ,288** | ,300** | ,012 |
| Długość przedniego skrzydła / Length of front wing | 55,11 | ,034— ,042 | ,046— ,055 | ,009 | ,150** | ,187** | ,159** | ,196** | ,037 |
| Szerokość przedniego skrzydła / Width of front wing | 8,17 | ,016— ,021 | ,022— ,027 | ,043** | ,027** | ,015 | ,016* | ,028** | ,012 |
| Indeks kubitalny / Value of cubital index | 162,45 | 1,5 —1,8 | 1,9 —2,4 | 9,0** | 17,5** | 14,5** | 8,5** | 5,5** | 3,0** |
| Liczba haczyków / Number of hooks | 20,57 | ,3— ,4 | ,4— ,5 | ,4** | 1,2** | ,9** | ,8** | ,5** | ,3** |
wszystkich możliwych porównań średnich dla 4 badanych populacji tylko różnica pomiędzy pszczołą węgierską i bułgarską jest nieznaczna (0,011 mm) i nie przekracza błędu. Wszystkie inne leżą w granicach od 0,174 mm do 0,381 mm i są wysoce istotne (tab. 3).
W Bułgarii znaleziono roje o najdłuższych języczkach ze wszystkich badanych (6,641—6,707 mm), ale średnia arytmetyczna (x̄ = 6,474 mm) dla pszczół z tego obszaru jest nieco niższa niż dla populacji węgierskiej (x̄ = 6,485 mm). Od obu tych populacji najwięcej odróżniają się pszczoły północnej Polski. Mają one najkrótsze języczki (x̄ = 6,104 mm). Języczki podobnej długości spotyka się także w niewielkiej liczbie rojów u pszczół południowej Polski. Odrębność każdej z dwóch polskich populacji jest jednak niewątpliwa, co wykazuje analiza zmienności. Różnią się one także stopniem wyrównania pogłowia na korzyść pszczół północnych (V = 0,69% i V = 1,50%). Na południu Polski występują również roje odpowiadające długością języczka pszczołom węgierskim i bułgarskim. W rezultacie krzywa zmienności u nich tej cechy wychodzi dwuwierzchołkowa (ryc. 3).
Szerokość IV sternitu. Średnia wartość tej cechy dla zbioru 210 rojów wynosi 2,738 mm. Różni się od niej najwięcej, bo o 0,024 mm, średnia dla pszczół zamieszkujących północną Polskę. Występują tam roje o przeciętnie najmniejszej ze zbioru szerokości IV sternitu (ryc. 3 tabl. 1). Istotność tych różnic potwierdziła statystyczna analiza zmienności. W południowej części Polski pszczoły mają nieco większą od pszczół północnych wartość średnią (o 0,028 mm) tej cechy i prawie dorównują pod tym względem populacjom Węgier i Bułgarii.
Powierzchnia lusterka woskowego. Średnie tej cechy wskazują na istnienie pewnej kierunkowej zmienności geograficznej. W kierunku południowym następuje zmniejszenie się wartości: od x̄ = 2,733 mm2 dla pszczół północnej Polski do x̄ = 2,396 mm2 dla pszczół Bułgarii. Największe zróżnicowanie średnich zachodzi jednak przy zestawieniu pszczół południowej Polski i Węgier. Między obiema populacjami polskimi, jak i między węgierską a bułgarską, różnice w powierzchni lusterka woskowego są stosunkowo nieduże — 0,037 mm2 i 0,012 mm2 i tylko dla pierwszej z nich stwierdzono istotność przy poziomie wiarygodności 0,05 (tab. 3). Charakterystyczny jest też rozkład średnich z rojów; niemal wszystkie one w obu populacjach polskich przewyższają średnią dla całego zbioru próbek (x̄ = 2,580 mm2), podczas gdy w populacji pszczół węgierskich i bułgarskich znajdują się poniżej jej (ryc. 3).
Wyrównanie pogłowia, określane na podstawie wskaźnika zmienności powierzchni lusterka woskowego jest we wszystkich populacjach dość zbliżone. Interesujące, że roje o najmniejszych średnich tej cechy mają największe wskaźniki zmienności. Zachodzi tu też pewna kierunkowa regularność w zmienności tego wskaźnika (tab. 2), Interesujące też, że populacja południowej Polski, pod względem innych cech zawsze najmniej
strona 15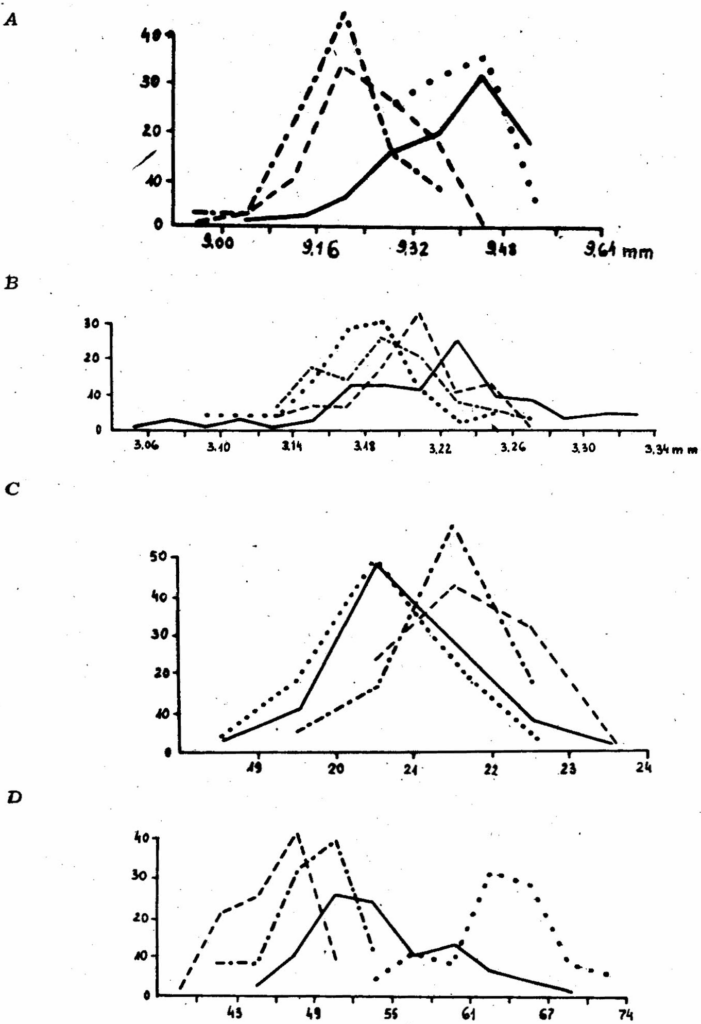
wyrównana, wypadła tutaj korzystnie, ustępując tylko pszczołom z północnej części naszego kraju.
Długość przedniego skrzydła. Zmienność tej cechy wskazuje na pewną zbieżność ze zmiennością powierzchni lusterka woskowego. Są to: 1. wartość średnia dla całego zbioru próbek (x̄ = 9,318 mm) tworzy w przybliżeniu barierę pomiędzy populacjami polskimi a węgierską i bułgarską; 2. różnice wartości średnich dla populacji znajdujących się po tej samej stronie bariery są niewielkie — 0,009 mm i 0,037 mm, i mieszczą się w granicach błędu; 3. pszczoły z terenu Polski mają skrzydła dłuższe (także i większe lusterko) od pszczół węgierskich i bułgarskich, z wyjątkiem pszczół Podkarpacia, wśród których średnie długości skrzydła zdarzają się takie same jak i u pszczół z dorzecza Dunaju (ryc. 4, tabl. 1).
Wskaźniki zmienności dla długości skrzydła w poszczególnych populacjach układają się nieco inaczej niż dla powierzchni lusterka woskowego. Pszczoły z południowej Polski okazały się tu najmniej wyrównane ze wszystkich badanych populacji (tab. 2).
Szerokość skrzydła przedniego. Najszersze skrzydła mają pszczoły z południowej Polski (x̄ = 3,217 mm). W populacjach oddalonych od tego obszaru zarówno w kierunku północnym jak i południowym następuje zmniejszenie wartości tej cechy (ryc. 4. tab. 1). Wartości średnich dla populacji północnej Polski i dla pszczół bułgarskich są bardzo zbliżone i różnica między nimi nie przekracza granicy błędu. Nie stwierdzono też istotności różnic pomiędzy średnimi dla pszczół bułgarskich i węgierskich.
Pszczoły południowej Polski wyróżniają się także dużą zmiennością szerokości skrzydła. Obserwowano tu w porównaniu do pozostałych populacji nie tylko największy rozrzut średnich arytmetycznych dla poszczególnych rojów, ale także krzywa zmienności tej cechy okazała się dwuwierzchołkowa (także i dla pszczół Węgier i Bułgarii). Wskazuje to na małe wyrównanie pogłowia pszczół, zamieszkujących tę część naszego kraju (V = 1,96%). Jest ono o wiele mniejsze niż w północnej Polsce (V = 1,06%), na Węgrzech (V = 1,14%) i Bułgarii (V = 1,11%), (tabl. 1, 2).
Indeks kubitalny. Roje o największej wartości indeksu kubitalnego (maksymalna x̄ = 72,7) występują na północy Polski, a o najmniejszej na terenie Węgier i Bułgarii (minimalna x̄ = 39,7 i x̄ = 40,4). Graniczną wartością indeksu kubitalnego, która je dzieli, jest średnia dla całego zbioru próbek x̄ = 53,1.
Środkowe miejsce w szeregu średnich całego zbioru zajmują roje z południowej Polski — od x̄ = 43,0 do x̄ = 70,0. Stanowią one jakby przejście od wysokich liczb, charakterystycznych dla północnych części naszego kraju do niskich, właściwych Bułgarii i Węgrom. Wyrównanie tej populacji w porównaniu do trzech pozostałych jest jednak najniższe
strona 17(V = 9,25%). Krzywa zmienności tych średnich wskazuje na mieszany charakter populacji, z przewagą rojów o wartości indeksu mniejszej od 53,1, a więc z zakresu pszczół bułgarskich i węgierskich.
Najbardziej podobne do siebie są populacje węgierskie i bułgarskie, których średnie wartości dla indeksu kubitalnego wynoszą odpowiednio x̄ = 45,7 i x̄ = 48,7. Różnica między tymi średnimi jest jednak istotna (tab. 3). Interesujące, że pszczoły bułgarskie zamieszkujące dalej na południe od pszczół węgierskich, mają od nich przeciętnie większą wartość indeksu. Nie jest tu więc zachowana kierunkowa regularność zmienności, która występuje wyraźnie w stosunku do polskich populacji pszczół.
Liczba haczyków na tylnym skrzydle. Średnia arytmetyczna z całego zbioru wynosi 21,1. Zmienność średnich z rojów wewnątrz każdej badanej populacji jest tu bardzo zbliżona. Stosunkowo najwięcej rojów o niskiej liczbie haczyków wchodzi w skład populacji pszczół północnej Polski, najmniej zaś jest ich na terenie Węgier (ryc. 4).
Między średnimi dla poszczególnych populacji występują niewielkie różnice (od 0,3 do 1,2), ale wszystkie one są istotne. Cały zbiór można w zasadzie podzielić na dwie grupy: w pierwszej znalazłyby się pszczoły z terenu północnej i południowej Polski, w drugiej — z terenu Węgier i Bułgarii. Różnice pomiędzy średnimi dla populacji wewnątrz tych dwóch grup są znacznie mniejsze niż przy porównaniu średnich dla obu grup.
Pod względem liczby haczyków najbardziej wyrównana jest populacja pszczół bułgarskich (V = 3,27%). Pozycja krańcowa w stosunku do nich przypadła w udziale pszczołom południowej Polski (V = 4,46%). Pewnym zaskoczeniem jest stosunkowo duża zmienność tej cechy u pszczół z terenu północnej Polski. Pod względem wyrównania pogłowia nie zajęły one w tym przypadku najlepszego miejsca, jakie było prawie zawsze ich udziałem w cechach opisywanych uprzednio.
OMÓWIENIE WYNIKÓW ANALIZY ZMIENNOŚCI
Przy charakteryzowaniu całego zbioru próbek pszczół na podstawie poszczególnych cech morfologicznych, zwraca uwagę duże podobieństwo pszczół węgierskich i bułgarskich. Potwierdza to statystyczna analiza zmienności, dokonana dla każdej z 8 badanych cech. Te dwie populacje różnią się istotnie tylko trzema cechami: wielkością pszczoły, liczbą haczyków i indeksem kubitalnym. Natomiast pod względem pozostałych 5 cech różnice między nimi nie przekraczają granic błędu (tab. 3). Tak dużego podobieństwa — mierzonego liczbą nieistotnych różnic — nie stwierdzono w żadnym z 5 innych zestawień badanych populacji. W przypadku porównania pszczół północnej Polski z węgierskimi — wszystkie różnice były istotne. Różnice między średnimi dla poszczególnych cech
strona 18tych ostatnich dwóch populacji są duże, kilkakrotnie nieraz przekraczające wartość różnic granicznych. Jeżeli ich wielkością można mierzyć stopień odrębności populacji, to pszczoły północnej Polski są najmniej podobne do pszczół bułgarskich, a potem do węgierskich.
Oceniając na tej samej podstawie stopień podobieństwa pszczół południowej Polski z każdą inną badaną populacją, stwierdzono, że przeciętnie są one bliższe naszym pszczołom północnym niż węgierskim i bułgarskim. To większe podobieństwo uwidacznia się w szerokości III i IV tergitu odwłokowego, powierzchni lusterka woskowego, długości i szerokości skrzydła oraz w pewnej mierze długości języczka. Natomiast mniejsze podobieństwo wyraża indeks kubitalny i liczba haczyków.
Badane populacje pszczół różnią się między sobą niektórymi cechami silniej, innymi zaś słabiej. Nie wszystkie cechy są więc jednakowo przydatne dla wykazania odrębności poszczególnych populacji. Pewną ocenę ich przydatności pod tym względem dają wyniki analizy zmienności. Na podstawie tych wyników można stwierdzić, że na przykład suma szerokości III i IV tergitu odwłokowego dobrze podkreśla odrębność badanych populacji. Wszystkie możliwe porównania między średnimi dla 4 populacji (6 kombinacji) dają tu różnice przekraczające, często wielokrotnie, wartość różnic granicznych (tab. 3). Podobnymi właściwościami wykazuje się indeks kubitalny, a także w dalszej kolejności cechy: długość języczka, powierzchnia lusterka woskowego i długość skrzydła. Nie odnosi się to jednak do wszystkich populacji. Mniejsze znaczenie w odróżnianiu odrębności badanych populacji mają: szerokość IV sternitu, szerokość przedniego skrzydła i liczba haczyków.
UPORZĄDKOWANIE DENDRYTOWE
Dobór cech do uporządkowania zbioru rojów. Każdy rój w całym zbiorze był charakteryzowany 8 cechami morfologicznymi. Poszczególne roje różniły się między sobą mniej lub więcej w zależności od wyboru cechy. Do porównania określenia odrębności badanych populacji nadawały się tylko niektóre cechy i z tego względu kwestia doboru ich w badaniach morfologicznych jest ważnym zagadnieniem (Skorkowski 1956).
Nas interesują różnice morfologiczne pomiędzy badanymi populacjami pszczół. Wystarczającą ocenę poszczególnych cech pod tym kątem daje charakterystyka ich zmienności w badanym zbiorze rojów. Na podstawie układania się krzywych zmienności i analizy wariancji wybrano 5 cech z ogólnej liczby 8 określanych. Są to: suma szerokości III i IV tergitu odwłokowego, długość języczka, powierzchnia lusterka woskowego, długość przedniego skrzydła i indeks kubitalny. Po znormalizowaniu tych cech i obliczeniu wzajemnych odległości rojów w celu
strona 19sporządzenia tablicy według wzoru Czekanowskiego, opracowano dendryt wrocławski dla zbioru 210 rojów (ryc. 5).
Opis dendrytu. W uporządkowaniu dendrytowym zbiór 210 rojów tworzy cztery dość zwarte skupiska na głównej osi. Skupiska te są połączone przez roje, które przeważnie nie mają bocznych odgałęzień. Podkreśla to odrębność skupisk. Najwyraźniej występuje ona między 2 i 3 skupiskiem licząc od góry. Boczne odgałęzienia dendrytowe nie odbiegają zbyt daleko od osi głównej, a zatem skupiska, poza drugim, są zwarte i jednakowo rozbudowane we wszystkich kierunkach. Tylko pierwsze od góry nieco bardziej rozgałęzia się w kierunku pionowym. Skupisko drugie jest zdecydowanie najmniej zwarte ze wszystkich czterech, a odległości między jego rojami największe w całym zbiorze.
Silnie wydłużony kształt dendrytu mówi o dużym zróżnicowaniu odległości między wszystkimi rojami zbioru i o tym także, że zachodzi ono w sposób charakterystyczny. Roje ze skupisk w górnej i dolnej części dendrytu są najmniej do siebie podobne w całym zbiorze. Łączy je jednak szereg form pośrednich, które reprezentują roje umieszczone przede wszystkim na głównej osi dendrytu. Brakuje między rojami szczególnie dużych odległości, które dzieliłyby zdecydowanie dendryt na części. Wydłużenie dendrytu w pionie i brak bardziej rozbudowanych bocznych odgałęzień świadczy, że różnicowanie się wartości cech morfologicznych pszczół tego zbioru zachodzi regularnie w pewnym kierunku.
Wewnątrz poszczególnych skupisk dendrytu występuje wyraźnie koncentryczne rozmieszczenie rojów. Odgałęzienia każdego z nich wyznaczają w przybliżeniu krąg. Roje na jego krańcach są najmniej podobne do rojów z centrum skupiska, lecz jest ich stosunkowo mało, a całość tego małego fragmentu zbioru stanowi raczej zwartą konstrukcję.
Podział na grupy. W całym zbiorze zarysowują się cztery skupiska rojów (ryc. 5). Podobieństwo wzajemne rojów jest większe w centrum każdego skupiska niż na jego peryferiach, niezależnie od tego czy porównywane roje znajdują się na odgałęzieniach bocznych czy też na dalszych częściach głównej osi dendrytu. Uporządkowanie dendrytowe 210 rojów rozpada się zatem na części w sposób naturalny (według terminologii Florka i innych 1951). Wyodrębnione w ten sposób grupy rojów przedstawiają typy pszczoły w sensie miejsca skupienia ich w dendrycie. Są one bardzo podobne wewnątrz grupy, a odrębność wykazują w stosunku do innych grup. Mogą one przedstawiać także i typy pszczoły w sensie morfologicznym, o ile spełnione będą następujące warunki: 1. jeżeli grupę tworzy dostatecznie duża liczba rojów, 2. jeżeli odległości między rojami różnych grup są znacznie większe niż między rojami wewnątrz grupy, 3. jeżeli roje danej grupy są ściśle związane z określonym terenem lub warunkami środowiska przyrodniczego.
Ze wszystkich możliwych podziałów dendrytu (209 podziałów na 210 części) tylko 14 okazało się mocniejszymi. Z tej liczby mocniejszych podziałów
strona 20jedynie trzy, na 39, 75 i 101 części, wyodrębniały w zbiorze większe grupy rojów. Wszystkie inne podziały prowadziły do oddzielenia pojedynczych rojów na bocznych odgałęzieniach. W opracowaniu wyników wykorzystano zatem te trzy podziały, nazywając je podziałem I, II, i III.
Charakterystyka morfologiczna grup rojów w zbiorze. Przy podziale dendrytu na 39 części (podział I) utworzyły się w zbiorze dwie duże grupy, skupiające łącznie 164 rojów. Pozostałe 46 rojów, albo zostały wydzielone na bocznych odgałęzieniach tych grup, uzupełniając je w pewnym sensie, albo znalazły się między nimi na osi głównej dendrytu. Dwie duże grupy rojów, oznaczone numerami I i II licząc od góry dendrytu, różniły się znacznie cechami: sumą szerokości III i IV tergitu (o 0,212 mm), długością języczka (o 0,289 mm), powierzchnią lusterka woskowego (o 0,197 mm), długością skrzydła (o 0,183 mm), indeksem kubitalnym (o 11,5).
Niektóre roje sklasyfikowane jako uzupełniające grupę I i II różnią się znacznie wartością cech od rojów wchodzących w skład tych grup. Z tych rojów pośrednie miejsce między obu grupami zajmują te, które znajdują się w środkowej części dendrytu. Długością języczka i indeksem kubitalnym są one zbliżone bardziej do grupy I, natomiast sumą szerokości III i IV tergitu i długością skrzydła — do grupy II. Interesujące, że mają one skrzydła węższe, a lusterka woskowe większe od pszczół obu tych grupy (tab. 4).
Wśród 75 części dendrytu, powstałych przy podziale II-gim, cztery obejmują dość duże skupiska rojów, które nazwano grupami drugiego podziału. Oznaczono je kolejno literami od A do D, poczynając od góry dendrytu. W stosunku do podziału pierwszego zaszły istotne różnice przede wszystkim w II-giej grupie rojów; została ona podzielona niemal w połowie na grupy C i D.
Pod względem wartości cech morfologicznych te cztery grupy rojów (A, B, C i D) układają się w kolejności, odpowiadającej ich położeniu w dendrycie. Krańcowe pozycje przypadają tu w udziale grupom A i D.
W rezultacie trzeciego podziału dendrytu na 101 części, uformowało się pięć większych grup rojów. Lecz podział ten przyniósł zasadnicze zmiany jedynie w górnej partii dendrytu. Wyodrębniły się tam mianowicie w ramach grupy A (wg drugiego podziału) dwie grupy, które oznaczono numerem 1 i 2. Pozostałe grupy, uformowane po trzecim podziale: 3, 4 i 5 odpowiadają grupom B, C i D według drugiego podziału, tylko, że są nieco mniejsze. Wartość cech morfologicznych rojów w tych odpowiadających sobie grupach, powstałych po drugim i trzecim podziale jest prawie równa. Natomiast średnie dla grupy A (drugi podział) są zbliżone do przeciętnych z 1 i 2 grupy trzeciego podziału. Bardziej szczegółowy podział wyodrębnia więc w grupie A dwa typy pszczół, które różnią się przede wszystkim długością języczka (o 0,097 mm) i in-
strona 21Tabela 4 Charakterystyka morfologiczna grup rojów według trzech mocnych podziałów Morphological characteristic of group of colonies according to 3 division of dendryt
| Podział / Division | Grupy i roje uzupełniające / Group and connected colonies | Liczba / Number: części dendrytu / parts of dendryt | Liczba / Number: rojów / colonies | Suma szerokości III i IV tergitu / Sum of width of III and IV tergite mm | Długość języczka / Length of tongue mm | Szerokość IV sternitu / Width of the IV sternite mm | Powierzchnia lusterka woskowego / Surface of wax plate mm2 | Długość przedniego skrzydła / Width of front wing mm | Szerokość przedniego skrzydła / Width of front wing mm | Indeks kubitalny / Value of cubital index | Liczba haczyków / Number of hooks |
|---|---|---|---|---|---|---|---|---|---|---|---|
| Pierwszy / First | I | 1 | 86 | 4,885 | 6,180 | 2,723 | 2,599 | 9,406 | 3,201 | 58,3 | 20,7 |
| 16 | 18 | 4,915 | 6,288 | 2,751 | 2,734 | 9,429 | 3,227 | 57,0 | 21,1 | ||
| Roje między I a II grupą / Colonies between I and II group | 1 | 5 | 4,759 | 6,262 | 2,754 | 2,670 | 9,303 | 3,162 | 57,8 | 20,1 | |
| 8 | 9 | 4,719 | 6.250 | 2,755 | 2,707 | 9,259 | 3,170 | 56,7 | 21,0 | ||
| II | 1 | 78 | 4,673 | 6,469 | 2,745 | 2,402 | 9,223 | 3,195 | 46,8 | 21,6 | |
| 12 | 14 | 4,658 | 6,521 | 2,759 | 2,433 | 9,214 | 3,199 | 47,3 | 21,3 | ||
| Drugi / Second | A | 1 | 56 | 4,911 | 6,146 | 2,718 | 2,730 | 9,411 | 3,193 | 59,9 | 20,6 |
| B | 1 | 7 | 4,782 | 6,338 | 2,757 | 2,675 | 9,394 | 3,221 | 51,1 | 20,7 | |
| C | 1 | 30 | 4,701 | 6,483 | 2,765 | 2,451 | 9,297 | 3,211 | 47,0 | 21,8 | |
| D | 1 | 32 | 4,669 | 6,473 | 2,727 | 2,354 | 9,188 | 3,189 | 45,9 | 21,5 | |
| Trzeci / Third | 1 | 1 | 22 | 4,911 | 6,107 | 2,702 | 2,733 | 9,378 | 3,170 | 63,5 | 20,6 |
| 2 | 1 | 19 | 4,908 | 6,204 | 2,726 | 2,731 | 9,451 | 3,226 | 55,5 | 20,4 | |
| 3 | 1 | 7 | 4,782 | 6,338 | 2,757 | 2,675 | 9,394 | 3,221 | 51,1 | 20,7 | |
| 4 | 1 | 25 | 4,714 | 6,485 | 2,764 | 2,446 | 9,300 | 3,209 | 46,8 | 21,9 | |
| 5 | 1 | 28 | 4,676 | 6,480 | 2,724 | 2,349 | 9,192 | 3,188 | 46,0 | 21,6 |
deksem kubitalnym (o 8,0). Te dwie cechy zdecydowały w pierwszym rzędzie o odrębności morfologicznej 1 i 2 grupy (tab. 4).
Miejsce badanych populacji pszczół w uporządkowaniu dendrytowym. Wszystkie badane populacje rozlokowały się w dendrycie z zachowaniem pewnej kolejności. Górę dendrytu zajmują pszczoły północnej Polski, dalej ku dołowi następują po nich pszczoły południowej Polski, Węgier i Bułgarii. Te dwie ostatnie populacje oddzielają się jednak od siebie mniej wyraźnie. Podział pierwszy, który wyodrębnia między innymi dwie grupy rojów (I i II), oddziela populacje polskie poza trzema rojami od węgierskiej i bułgarskiej. Między tymi dwiema grupami znajduje się kilkanaście rojów, które należą do populacji zamieszkującej południową Polskę.
O ile pszczoły węgierskie i bułgarskie w zasadzie nie oddzielają się od siebie w dendrycie, to taki podział zarysowuje się między dwiema populacjami polskimi. Grupa 1 trzeciego podziału prawie całkowicie składa się z rojów należących do populacji północnej Polski, w grupie 2 występują one już tylko sporadycznie, natomiast w 3 nie ma ich wcale. Grupa 1 trzeciego podziału może być zatem uważana za typ pszczoły, która w przewadze zamieszkuje północną Polskę.
Dalsze podziały dendrytu, drugi i trzeci, wskazują, że populacje węgierska i bułgarska składa się z dwóch typów pszczół, które różnią się przede wszystkim wartością 3 cech: długością skrzydła, sumą szerokości III i IV tergitu odwłokowego, powierzchnią lusterka woskowego (tab. 4). Te dwa typy zamieszkują w podobnych proporcjach ilościowych Węgry i Bułgarię. Różnice, jakie istnieją między nimi, nie są zatem związane z pochodzeniem geograficznym rojów.
Część rojów zostało wyodrębnionych jako samodzielne części uporządkowania dendrytowego. Stosunkowo niewiele tych rojów jest wśród pszczół węgierskich i północno-polskich, co świadczy o dużym ich wyrównaniu. Najmniej wyrównana ze wszystkich badanych jest druga populacja polska — pszczoły Podkarpacia. Struktura tej części dendrytu wyróżnia się w całym uporządkowaniu dużym rozluźnieniem. Występuje na Podkarpaciu 5 typów pszczół, wśród których znajdują się odpowiadające pszczołom z północy naszego kraju jak i z krajów dorzecza Dunaju. Roje jednej z grup — grupy 3 — występują wyłącznie na Podkarpaciu, ale znaleziono ich tam za mało (9,5%), aby można było mówić o nich jako o typie pszczół właściwych dla tego regionu.
STANOWISKO SYSTEMATYCZNE BADANYCH POPULACJI
Próbki pszczół do badań morfologicznych zebrano z terenów zamieszkałych przez A. m. mellifica i A. m. carnica. Rozmieszczenie rojów na rysunku dendrytu odpowiada ich pochodzeniu geograficznemu, z zachowaniem
strona 23kierunku północ-południe. W dendrycie nie ma między rojami dostatecznie dużych odległości, które by wyraźnie świadczyły o „skokowym” różnicowaniu się morfologicznym rojów. Wprawdzie zarysowują się większe skupiska bardzo podobnych do siebie rojów (małe odległości między nimi), ale łączą się one ze sobą za pośrednictwem łańcucha innych rojów w mało co mniejszym podobieństwie wzajemnym od wewnętrznego w skupiskach. Dendryt nie wskazuje na to, że występują w nim przedstawiciele dwóch podgatunków pszczół, różniących się morfologicznie. Wszystkie roje układają się w długi łańcuch z bocznymi odgałęzieniami, o stopniowo narastających różnicach w wartości cech morfologicznych. Regularność tej zmienności pokrywa się z położeniem geograficznym badanych rojów. Zostaje tu potwierdzona reguła Bergmanna, że w kierunku północnym zwierzęta stają się większe i reguła Allena, że mają one tam stosunkowo mniejsze członki ciała.
Przy porównaniu krańcowych ogniw łańcucha badanych populacji, to znaczy pszczół północnej Polski z pszczołami Bułgarii, odrębność ich pod względem morfologicznym jest oczywista i dlatego zostały one określone jako oddzielne podgatunki. Istnienie form pośrednich między tymi podgatunkami mówi o względności tego podziału systematycznego pszczół Europy środkowej. Jest on jednak ugruntowany tradycyjnie, a także ma pewne zalety praktyczne: stanowi bowiem jeden z przejściowych stopni w drobniejszym podziale systematycznym gatunku A. mellifica. Ponieważ hodowcy ograniczają zasięg swej działalności do mniejszych populacji, ściśle związanych z określonym środowiskiem, istnieje zatem potrzeba oznaczania tych populacji dla odróżnienia od innych, różniących się nieraz bardzo nieznacznie.
Stopniowe z północy na południe różnicowanie się morfologiczne badanych populacji jest równoległe ze zmienianiem się podstawowych dla bytowania pszczół elementów środowiska przyrodniczo-geograficznego: klimatu i szaty roślinnej. Wskazuje to na większy udział selekcji naturalnej w różnicowaniu populacji niż pozostałych czynników: migracji, mutacji i zmienności losowej. Można zatem wyróżniać typy pszczół, które się łączą ściśle z miejscem ich odrębnego geograficznego pochodzenia. Selekcja naturalna wystąpiła szczególnie ostro w stosunku do wielkości pszczoły, długości języczka, długości przedniego skrzydła, powierzchni lusterka woskowego. Przypuszczalnie cechy te odgrywają niebagatelną rolę w życiu pszczół.
Wydzielenie podgatunków w badanym zbiorze rojów nastręcza pewne trudności wobec specyficznej budowy dendrytu. Duże wzajemne podobieństwo rojów w całym dendrycie nie uwidacznia zdecydowanie granicy, dokąd sięga pierwszy z podgatunków, a skąd zaczyna się drugi. Obiektywne wskazówki w tym względzie może dostarczyć podział zbioru na części. Przydatny staje się tu podział pierwszy. Dwie duże grupy rojów, wyodrębnione przez ten podział, wyznaczają w dendrycie zasięg
strona 24tych dwóch podgatunków (ryc. 5). Roje grupy I reprezentują zatem w naszych badaniach typ A.m. mellifica, grupy II — typ A.m. carnica (tabl. 4).
Scharakteryzowanie najbardziej złożonej populacji — pszczół Podkarpacia było niezmiernie trudne. Większość występujących tam rojów należy do A. m. mellifica, ale pewna ich część znajduje się poza wyróżnionymi tu dwoma typami (ryc. 5, tab. 5).
POPULACJA PSZCZÓŁ POŁUDNIOWEJ POLSKI
O specyficznym charakterze pszczół południowej Polski dostatecznie informuje analiza poszczególnych cech morfologicznych i analiza uporządkowania dendrytowego. Występują tam roje, które są podobne rojom w trzech pozostałych populacjach. Szczególnie zaznacza się to wyraźnie przy porównaniu pojedynczych cech morfologicznych. Natomiast ze względu na zespół cech znaczna część rojów Podkarpacia zajmuje pośrednie miejsce między pszczołami północnej Polski a pszczołami węgierskimi i bułgarskimi.
Wykres (ryc. 6) uwidacznia, że pszczoły podkarpackie w przybliżeniu są jednakowo odległe od pszczół węgierskich i bułgarskich, a także i od północno-polskich. Zwraca przy tym uwagę duże zróżnicowanie odległości — od 0 do 9,00. W tym przedziale prawie bez reszty mieszczą się też odległości pomiędzy populacjami północno-polską a węgierską i bułgarską oraz pomiędzy tymi dwiema ostatnimi. Roje północnej Polski są więc jednakowo bliskie pszczołom z dorzecza Dunaju, jak części rojów z Podkarpacia. Podobnie też pszczoły bułgarskie i niektóre roje z Podkarpacia znajdują się w tej samej odległości od pszczół węgierskich.
W podobny sposób przedstawiono na wykresie również i odległości największe między rojami poszczególnych populacji (ryc. 6). Zobrazowano więc to, co nie „łączy” ale w pewnym sensie „dzieli” populację. I tu także wyłania się zróżnicowanie populacji Podkarpacia: występują elementy typowe dla A. m. mellifica z północy naszego kraju i dla A.m. carnica z dorzecza Dunaju. W takiej interpretacji obszar południowej Polski leży zatem w zasięgu obu tych podgatunków pszczół.
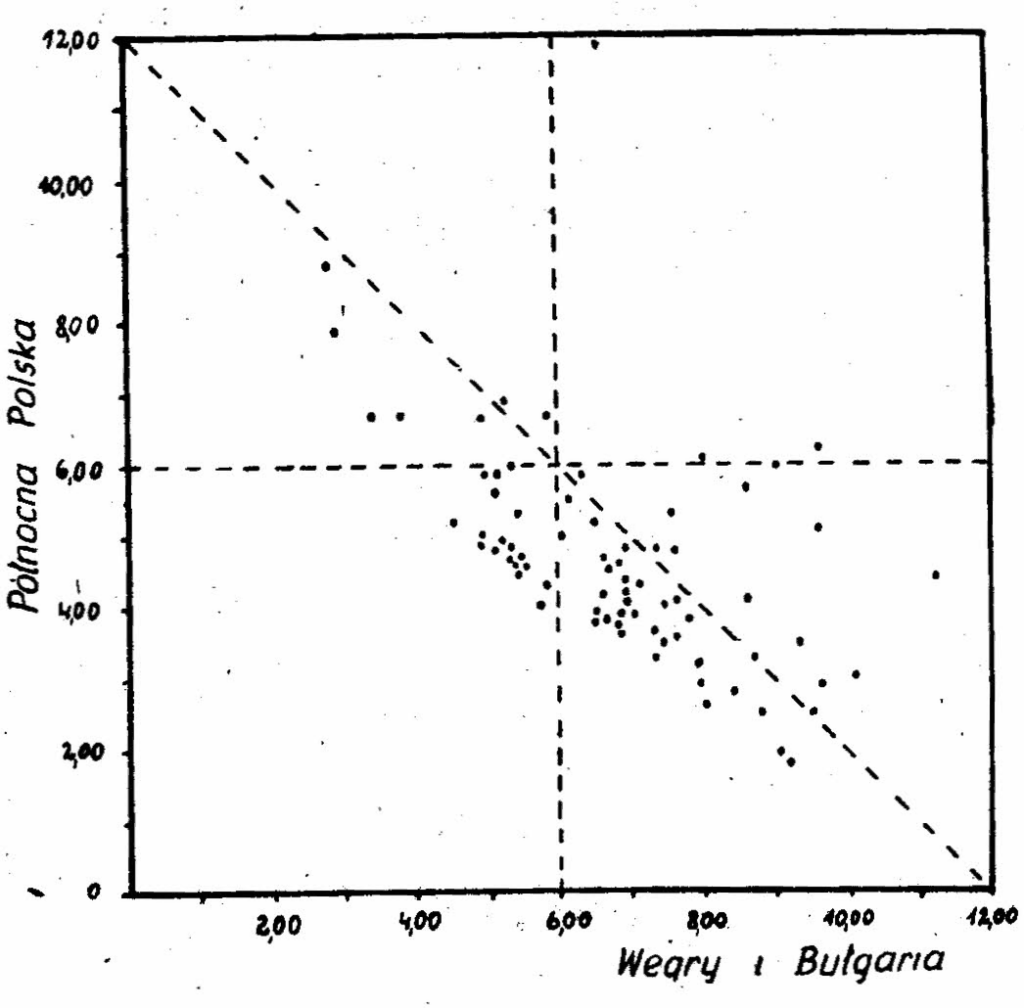
Większość badanych na Podkarpaciu rojów nie wykazuje jednak zdecydowanej przynależności do żadnego z tych podgatunków, szczególnie gdy oznacza się je na podstawie zespołu cech. Obliczając dla każdego z nich średnie odległości od rojów populacji północnej Polski i od rojów populacji w dorzeczu Dunaju stwierdzono, że 1) stosunkowo duża grupa rojów jest bardziej zbliżona do pszczół północnej Polski niż do pszczół z dorzecza Dunaju, 2) prawie równie duża grupa rojów jest w przybliżeniu tak samo odległa od obydwu tych populacji i 3) im poszczególne roje bardziej oddalają się od populacji północnej Polski, tym są bliższe
strona 25Tabela 5 Struktura badanych populacji pszczół według grup rojów drugiego i trzeciego podziału dendrytu Structure of investigated populations of bees according to group of colonies of second and third division of dendryt
| Populacja pszczół / Origin of bee population | Liczba badanych rojów / Number of investigeted colonies | Procent rojów / Per cent of colonies — podział drugi / second division: grupa / group A | … podział drugi: grupa / group B | … podział drugi: grupa / group C | … podział drugi: grupa / group D | … podział drugi: poza grupami / behind group | Procent rojów / Per cent of colonies — podział trzeci / third division: grupa / group 1 | … podział trzeci: grupa / group 2 | … podział trzeci: grupa / group 3 | … podział trzeci: grupa / group 4 | … podział trzeci: grupa / group 5 | … podział trzeci: poza grupami / behind group |
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Północno-polska / Northern Poland | 47 | 76,6 | — | — | — | 23,4 | 42,6 | 8,5 | — | — | — | 48,9 |
| Południowo-polska / Southern Poland | 74 | 27,0 | 9,5 | 2,7 | 1,4 | 59,4 | 2,7 | 20,2 | 9,5 | 2,7 | 1,4 | 63,5 |
| Węgierska / Hungary | 54 | — | — | 38,9 | 38,9 | 22,2 | — | — | — | 33,3 | 35,2 | 31,5 |
| Bułgarska / Bulgaria | 35 | — | — | 20,0 | 28,6 | 51,4 | — | — | — | 14,5 | 22,9 | 62,8 |
| Ogółem / Total | 210 | 26,7 | 3,3 | 14,3 | 15,2 | 40,5 | 10,5 | 9,1 | 3,3 | 11,9 | 13,3 | 51,9 |
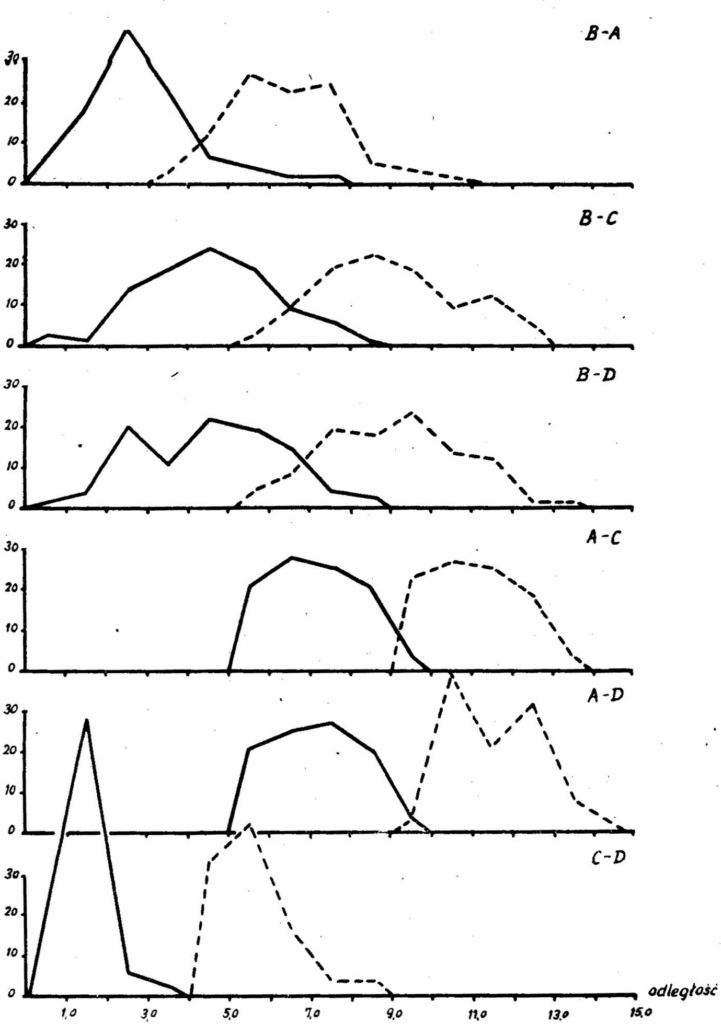
populacjom z dorzecza Dunaju. Morfologiczny pokrój pszczół Podkarpacia oscyluje więc między typowymi dla tych dwóch populacji i nie ujawnia składników pszczół innych, różniących się od nich cechami morfologicznymi. Są to więc w istocie formy „pośrednie” podgatunków A. m. mellifica i A. m. carnica zacierające w całym zbiorze rojów różnice morfologiczne między nimi (ryc. 7).
Pszczoły Podkarpacia nie tworzą wyrównanej zbiorowości i trudno tu o jakiś jednoznaczny pogląd o stanowisku systematycznym i strukturze populacji tej części Polski. Wiele przemawia za tym, że 1) morfologiczna odrębność populacji Podkarpacia jest przejawem regularnej zmienności geograficznej pszczół od Bałtyku po Bałkany, jak i za tym, że 2) populacja ta uformowała się na styku naturalnego zasięgu dwóch podgatunków. Według pierwszego poglądu ukształtowanie się populacji Podkarpacia jest przede wszystkim wynikiem działania selekcji naturalnej, według drugiego zaś — skutkiem migracji (izolacji) — wymieszania i krzyżowania się pszczół dwóch odrębnych podgatunków. Różnica w poglądach dotyczy zatem rodowodu podkarpackich pszczół.
Przytoczone tu dwa różniące się poglądy w zasadzie nie wykluczają
strona 28się nawzajem. Jeden i drugi może być w pewnym sensie słuszny i prawdopodobny dzięki przeszkodzie terenowej, jaką w tym miejscu Europy stanowią Karpaty. Na północ i na południe od pasma tych gór populacje pszczół kształtowały się w zupełnie odmiennych środowiskach przyrodniczych. Szybciej tedy mogło następować tu zróżnicowanie między tymi populacjami i było ono większe niż tam, gdzie pszczoły mogły swobodnie się przemieszczać. Przenikanie pszczół z południowej na północną stronę Karpat (lub odwrotnie) było możliwe w nielicznych miejscach, przede wszystkim przez Bramę Morawską i wzdłuż pasma gór od Morza Czarnego. Takie kontakty mogły z czasem uwidocznić się nawet w postaci krzyżowania się różnych mórfologicznie typów pszczół.
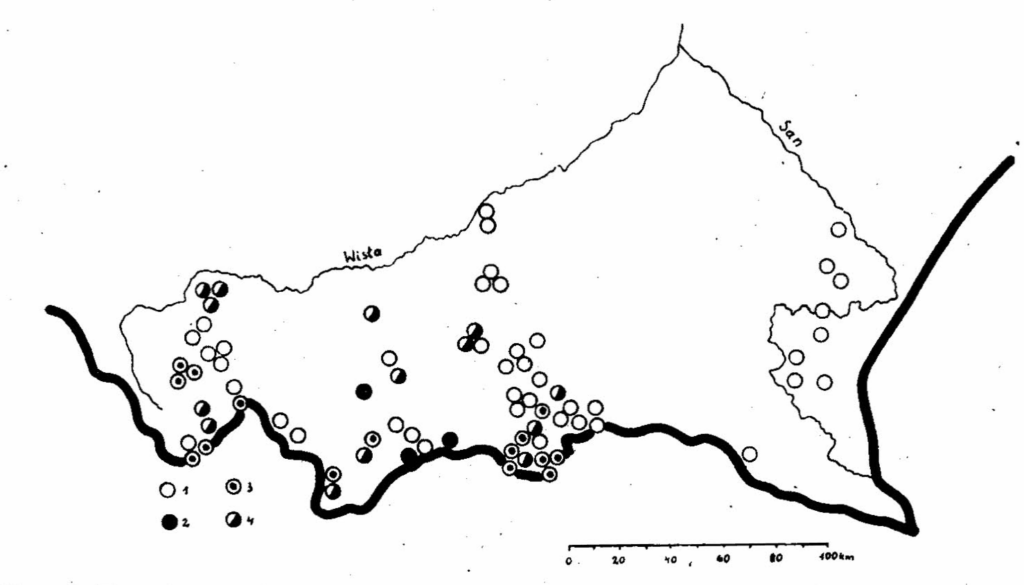
Rozmieszczenie terenowe poszczególnych typów pszczół na południe od Wisły i Sanu wydaje się wykazywać pewne zależności od ukształtowania powierzchni (ryc. 8). Na terenach górzystych, wzniesionych wyżej nad poziom morza, jest więcej pszczół bliższych A. m. carnica. Występują one dość zwarcie wzdłuż południowej granicy państwa na terenie województwa krakowskiego. Znajduje się tam jednak i pszczoły, które w uporządkowaniu dendrytowym są bliskie rojom II grupy trzeciego podziału, a więc podobne do A. m. mellifica, typowej dla Podkarpacia (tab. 4). Szczególnie bogaty w A. m. carnica lub zbliżone do niej
strona 29formy jest powiat Nowy Targ i Limanowa. W powiatach Żywiec i Nowy Sącz jest natomiast więcej form pośrednich, przede wszystkim rojów z 3 grupy podziału trzeciego. Dalej na północ, wzdłuż Wisły, przeważała A. m. mellifica (II grupa trzeciego podziału). Do tego podgatunku zostały również zaliczone wszystkie roje, jakie zbadano na terenie województwa rzeszowskiego.
DYSKUSJA
Część badanych rojów pszczół na południu Polski wykazuje pewne podobieństwo do Apis mellifica carnica. Mogą one być zatem zaliczone do tego podgatunku, jako jedne z jego licznych lokalnych odmian, o których istnieniu wspomina Ruttner (1960). Północny zasięg A. m. carnica obejmuje więc i tereny zgodne z oznaczeniami Goetzego (1940, 1964), który wykonał je na podstawie pomiarów długości języczka pszczół.
Obok form zbliżonych do A. m. carnica występują na Podkarpaciu także pszczoły o cechach typowych dla A. m. mellifica z północy naszego kraju, a także pszczoły, które w ocenie morfologicznej zajmują pośrednie miejsce między tymi dwoma podgatunkami. Tych ostatnich jest stosunkowo dużo. Z pewną ostrożnością można dopatrywać się pochodzenia ich ze skrzyżowania się dwóch podgatunków. Słuszne to będzie wtedy, gdy przyjmiemy hipotezę (Goetze 1963) o rozdzieleniu terytorialnym pszczół Europy przez lodowiec na dwie grupy i o powtórnym ich zetknięciu się — już zróżnicowanych morfologicznie — po ustąpieniu lodowca. W takiej sytuacji na styku ich terytorialnych zasięgów mogły także powstawać formy pośrednie o różnej kombinacji cech. Skutki tego zjawiska można obserwować na Morawach i częściowo w Czechach, gdzie populacja tamtejszych pszczół jest silnie zróżnicowana pod względem morfologicznym (Tomšik, Škrobal, Veselý 1962, Goetze 1963, Veselý 1965). Natomiast dalej na wschód na terenie Słowacji, zjawisko to przypuszczalnie nie występuje. Pszczoły słowackie są raczej dobrze wyrównane i morfologicznie podobne do swych południowych sąsiadek z Bałkanów (Hejtmanek 1962). Bardzo zbliżona do A. m. carnica jest także pszczoła ze Wschodnich Karpat i z Podola, o czym świadczą badania morfologiczne Szeremietjewa i innych (1965) oraz Demianowicza i Gromisza (1966).
Doszukiwanie się u podstaw kształtowania się populacji pszczół Podkarpacia pierwiastków w pewnym sensie czysto mechanicznych, nie jest przekonywające. Przemawia przeciw temu różnicowanie się wartości morfologicznych pszczół europejskich. Niektóre z cech morfologicznych pszczół przejawiają pewną regularność kierunkową w zmienności geograficznej
strona 30(Alpatov 1926, Mikhailof 1926, Skorikov 1930). Stwierdzono jej istnienie u A. m. mellifica na terenie Polski dla cech długości języczka i sumy szerokości III i IV tergitu odwłokowego (Gromisz 1963, Bornus i Gromisz 1963). Pszczoły na północy kraju są większe i mają krótszy języczek niż na południu. Wyniki niniejszej pracy pozwalają sądzić, że podobne zjawisko występuje i u pszczół na południu od Karpat, a więc w obrębie zasięgu geograficznego A. m. carnica. Jest zatem naturalne, że na północy obszaru zamieszkałego przez ten podgatunek — załóżmy, że to nasze Podkarpacie — znajdziemy pszczoły nieco inne niż na południu. Będą one przede wszystkim większe i o krótszych języczkach, czyli w przybliżeniu takie, jakie występują na Podkarpaciu. Lecz podkarpackie pszczoły pod względem morfologicznym można również traktować jako jedną z form A. m. mellifica, zamieszkującą tereny u granic jej południowego zasięgu. Brak więc tu zdecydowanego przejścia od jednego podgatunku do drugiego.
Porównując podkarpacką pszczołę z A. m. carnica i A. m. mellifica znajdujemy analogię ze szwajcarską Nigrą. Obie one zajmują w przybliżeniu pośrednie miejsce między tymi dwoma podgatunkami. Nigrę zalicza się do A. m. mellifica (Hunkeler 1961).
Możliwe, że w kształtowaniu się pogłowia pszczół na Podkarpaciu mogła odegrać pewną rolę także i A. m. carnica przywożona przed pierwszą wojną światową przede wszystkim z Austrii (Mendrala 1948). Przypuszcza się jednak, że rozmiary tego importu były raczej skromne.
Pszczołę tego podgatunku sprowadzono i sprowadza się nadal głównie na Śląsk i na Pomorze (Goetze 1930, Bornus i Gromisz 1963, Strachalska 1965). Z innych ras można brać tu pod uwagę A. m. ligustica, która swego czasu była u nas chętnie rozprowadzana (Lubieniecki 1859, Piwowarski 1928, Mazak 1961). Główne szlaki wędrówek tej pszczoły omijały raczej pasieki Podkarpacia poza niektórymi rejonami, przede wszystkim Tarnowa. Szczególnie dużo A. m. ligustica spotykało się na Śląsku i na Podolu (Goetze 1930, Mazak 1961, Demianowicz i Gromisz 1966). Także i w eksterierze pszczół węgierskich Bakk (1955) dopatruje się domieszki cech A. m. ligustica. Niski indeks kubitalny pszczół węgierskich, niższy niż bułgarskich, wydaje się potwierdzać przypuszczenia tego autora. Dużo cech dodatnich, przypisuje się A.m. carnica. Wydaje się jednak, że w naszych warunkach wystarczającym powodem dla zainteresowania się tą pszczołą jest jej długi języczek. Ta zaleta ułatwia jej zbieranie nektaru również i z koniczyny czerwonej, która jest na ogół niedostępną pod tym względem dla A. m. mellifica. Dla naszego rolnictwa nie jest bez znaczenia kwestia zapylania tych roślin. Zawsze jest za mało owadów zapylających ich kwiaty, w konsekwencji czego zbiory nasion są bardzo niskie. Nasza podkarpacka pszczoła po odpowiedniej selekcji może stać się dobrą zapylaczką koniczyny czerwonej. Prace selekcyjne
strona 31ułatwiają w znacznej mierze dokładne poznanie pszczół od Bałtyku po Bałkany, ich pochodzenia, i ich pierwotne warunki bytowania (Ruttner 1960). Wytyczy to w pewnym stopniu zakres możliwości zupełnie realnych do osiągnięcia u poszczególnych form tych pszczół, które są zaliczane do dwóch odrębnyh podgatunków. Dotychczas znana dobrze jest tylko A. m. carnica z Karyntii (Austria) i Krainy (Słowenii), skąd wyszła w świat. O innych lokalnych odmianach wiemy niewiele. Praca niniejsza daje trochę wiadomości o pszczołach węgierskich i bułgarskich.
WNIOSKI
Wyniki tej pracy pozwalają na wyciągnięcie następujących wniosków:
- Z ogólnej liczby ośmiu określonych cech morfologicznych dużą wartość taksonomiczną mają: suma szerokości III i IV tergitu odwłokowego, długość języczka, powierzchnia lusterka woskowego, długość przedniego skrzydła, indeks kubitalny.
- Prosta analiza zmienności poszczególnych ilościowych cech morfologicznych jest niewystarczająca dla szczegółowego opisu populacji. Pełniejsze scharakteryzowanie badanych populacji daje ich ocena na podstawie zespołu cech (metoda dendrytów wrocławskich).
- Na obszarze od Bałtyku po Bałkany następuje stopniowe różnicowanie się taksonomiczne ważnych cech morfologicznych pszczół. Na północy pszczoły są większe, mają krótsze języczki, dłuższe skrzydła, większe lusterka woskowe, większą wartość indeksu kubitalnego.
- W zbiorze badanych rojów pszczół pochodzących z terytorialnych zasięgów Apis mellifica mellifica L. i Apis mellifica carnica Pollm. brakuje zdecydowanej granicy między tymi podgatunkami. Podział taksonomiczny w ramach gatunku Apis mellifica L. zasiedlającego Europę środkową jest najczęściej umowny.
- Według przyjętych w tej pracy kryteriów podziału systematycznego znaczna część rojów południowej Polski należy do A. m. mellifica L. Również znaczna część rojów stanowi formy pośrednie między tym podgatunkiem a A. m. carnica Pollm.
- Populacja pszczół południowej Polski jest najmniej wyrównana pod względem morfologicznym w zestawieniu z populacjami północnej Polski, Węgier i Bułgarii.
- Z czynników wpływających na kształtowanie się populacji pszczół największą rolę na Podkarpaciu odegrały: selekcja naturalna i migracja (izolacja).
- Specyficzna struktura morfologiczna populacji południowej Polski daje możliwości wyselekcjonowania tam pszczół o cechach zbliżonych
do typowych dla A. m. carnica Pollm., to znaczy pszczoły o dużych zaletach użytkowych przede wszystkim zdolnej do zapylania koniczyny czerwonej.
Promotorowi swojemu, Panu Doc. Janowi Wąsowiczowi, pragnę złożyć serdeczne podziękowanie za opiekę nad pracą, a Panu Prof. Dr Leonowi Bornusowi za umożliwienie przeprowadzenia jej i nieskąpienie cennych wskazówek. Za bezpośrednią pomoc oraz życzliwie krytyczne uwagi dziękuję również Panu Prof. Dr Antoniemu Demianowiczowi, Panu Prof. Dr Władysławowi Hermanowi, Panu Doc. Stefanowi Mandeckiemu, a Panom Kocsisowi Sándorowi, Bakkowi Ferencowi, Jašzvári Ferencowi i Szabó Tiborowi oraz Panom Borysowi Mitewowi i Dymitrowi Sebewowi — za umożliwienie zebrania materiałów do badań na terenie Węgier i Bułgarii.
LITERATURA
Alber M. (1952) — Imkerbummel in Algerien. Dtsch. Bienenwirtstsch., 3 : 204
Alpatov W. W. (1926) — Über die Verkleinerung der Rüssellänge der Honigbiene vom Süden nach dem Norden hin. Zool. Anz., 65 : 103—111
Alpatow W. W. (1930) — Zur Erkennung der Veränderungen der Bieneneigenschaften im europäischen Teil der Sovjetunion und des Kaukasus. Streszczenie w Archiv. f. Bienen., (1931), 13 : 380—382
Ałpatow W. W. (1930) — Niekotoryje itogi biometriczeskogo izuczenja porod miedonosnoj pczeły. Kollektiwnoje pczełowodnoje dieło, (1) : 14—19
Ałpatow W. W. (1948) — Porody miedonosnoj pczeły. Moskwa
Bakk F. (1955) — A magyarországi mézelömék fajtavizsgálota. Méhészet, 3(12) 223—227
Bährmann R. (1962) — Ergebnisse und Probleme unserer Körarbeit. Archiv f. Bienen., 39(1) : 48—50
Bährmann R. (1963) — Zum Vorkommen von Anomalien im Flügelgeäder der Honigbiene. Archiv f. Bienen. 40(2) : 49—53
Bährmann R. (1964) — Die Körung der Honigbiene-Ergebnisse und Probleme. Dtsch. Bienenwirtsch., 15(9) : 190—193
Bährmann R. (1965) — Merkmalsstudien und infraspezifische Verwandtschaftsverhältnisse bei Apis mellifica L.Z.f.Bienenforsch., 8(2) : 17—47
Bornus L. (1960) — Badania nad zależnością wielkości lusterka woskowego od wielkości pszczoły. Pszczeln. Zesz. Nauk., 4(2) : 73—86
Bornus L., Demianowicz A., Gromisz M. (1966) — Morfometryczne badanie krajowej pszczoły miodnej (Apis mellifica L.). Pszczeln. Zesz. Nauk. 10(1—4) : 1—46
Bornus L. i Gromisz M. (1963) — Zależność wielkości pszczoły od szerokości geograficznej. Pszczeln. Zesz. Nauk., 7(2) : 49—61
Braun E. (1955) — Nigra und Carnica einander gegenübergestellt. Dtsch. Bienenwirtsch., 6(11) : 229—231
strona 33Carlisle E. (1955) — Biometrical investigation of some European and other races of honey-bees. Bee World, 36(2) : 41—45
Chochłow W. P. (1916) — Untersuchungen über Rüssellänge der Arbeiterinnen der Honigbiene. Streszczenie w Archiv f. Bienen. (1926), 7 : 35—36
Demianowicz A. (1957) — Hodowla pszczół. Warszawa, PWRiL : 40—52
Demianowicz A. (1965) — The configuration of the posterior wing nervures of the honey bee (Apis mellifica). Ref. XX I.B.J.C., Bucharest
Demianowicz A. i Gromisz M. (1966) — Materiały do poznania pszczoły na pograniczu środkowej i wschodniej Europy. Pszczeln. Zesz. Nauk., 10(1—4) : 47—55
Droege G. (1960) — Zur Frage der Unterscheidbarkeit der Carnica-Stämme Archiv f. Gefl.u.Kleintierk., 9(3) : 182—202
Du Praw E. J. (1965) — Non-Linnean taxonomy and the systematics of honey-bees. Systematic Zoology, 14(1) : 1—24
el-Banby M. A. (1965) — The inheritance of some qualitative characters in the carnico-egyption honey-bee hybrid. XX I B.J.C., Bucharest
Farcas A. (1939) — Variationsstatistische Untersuchungen des Bienenrüssels. Archiv f.Bienen., 21(6) : 216—224
Florek K., Łukaszewicz J., Perkal J., Steinhaus H. i Zubrzycki S. (1951) — Taksonomia Wrocławska. Przegląd Antropologiczny, 17 : 193—211
Goetze G. (1930) — Variabilitäts-und Züchtungsstudien an der Honigbiene mit besonderer Berücksichtigung der Langrüsseligkeit. Archiv f.Bienen., 11 : 185—275
Goetze G. (1940) — Die beste Biene. Leipzig, Liedloft, Loth u.Michaelis
Goetze G. (1959) — Die Bedeutung des Flügelgeäders für die züchterische Beurteilung der Honigbiene. Z.f.Bienenforsch., 4(7) : 141—148
Goetze G. K. L. (1964) — Die Honigbiene in natürlicher und künstlicher Zuchtauslese. Hamburg u. Berlin, Paul Parey
Gromisz M. (1961) — Zmienność długości języczka u pszczoły krajowej. Pszczeln. Zesz. Nauk., 5(1) : 1—31
Gromisz M. (1962) — Sezonowa zmienność wymiarów skrzydeł i indeksu kubitalnego u pszczół. Pszczeln. Zesz. Nauk., 6(3) : 112—120
Gromisz M. (1963) — Zmienność długości języczka pszczół w Polsce w zależności od szerokości geograficznej. Pszczeln. Zesz. Nauk., 7(1) : 15—22
Hejtmanek J. (1962) — Exterier včiel slovenskoho chovu. Polnohospodarstvo, 9(4) : 295—309
Hunkeler M. (1961) — Rassen und Rassenmerkmale. Schweiz. Bienenztg., 84(2): 58—62
Kolesnikow A. N. (1960) — O niekotorych osobiennostiach eksteriera i interiera roboczych pczeł. Tr. obszcz. jestisp., 120(6) : 271—321
Komaroff P. M., Alpatov W. W. (1934) — Beiträge zur Kenntnis der Variabilität der Honigbiene. Archiv f.Bienen., 15 : 11—20
Louis J. (1963) — Étude de la translation du point discoidal (Discoidalverschiebung) de l’abeille (A. mellifica L.). Ann. Abeille, 6(4) : 303—320
Lubieniecki J. (1859) — Dokładna praktyczna nauka dla pasieczników. Lwów
Lukoschus F. (1954) — Beobachtungen zur Entwicklung und zum Bau der Bienenzunge. Z.f.Bienenforsch., 2(8) : 219—223
Lunder R. (1953) — Sammenlikning av ulike biraser under norske forhold. Nord. Bitidskrift, 3 : 71—83
Mazak S., ks. (1961) — Rozprzestrzenienie geograficzne pszczoły włoskiej przez Jana Dzierżona i opinie o wartości tej pszczoły. Przegląd Zoologiczny, 5(3): 190—200
strona 34Mendrala S. (1948) — Obserwacja pszczół Strefy Podgórskiej. Pasieka (3): 65—67
Michailoff A. S. (1927) — Ueber die Saison — Variabilität der Honigbiene. Archiv f. Bienen., 8 : 304—312
Michailoff A. S. (1931) — Weitere Untersuchungen über die phänotypische Variabilität der Honigbiene (Apis mellifica L.) in Verbindung mit der Frage der Bienenrassen. Archiv f. Bienen., 12 : 315—229
Michailoff A. S. (1929) — Über eine lineare Korrelation zwischen der. Rüssellänge der Honigbiene und der geographischen Breite im ebenen europäischen Russland. Archiv f. Bienen., 7 : 28—33
Oeroesi-Pal Z. (1934) — Über die Länge der ungarischen Bienenzungen. Streszczenie w Archiv f. Bienen., (1934), 15 : 276
Perkal J. (1953) — Taksonomia wrocławska. Przegląd Antropologiczny, 19 : 82—105
Perkal J. (1955) — Porządkowanie przedmiotów. Kosmos „B”, 5(3): 197—206.
Piwowarski J. (1928) — Rasy i odmiany pszczoły miodonośnej. Miechów.
Rihar J. (1960) — Biometrische Untersuchungen an Bienen in Jugoslawien. Atti ufficiali, 2 : 253—255 (XVII Międzynarodowy Kongres Pszczelarski w Rzymie).
Rihar J. (1961) — Recherches biometriques sur la couleur des abeilles carnica linnes en Yugoslavie (Apis mellifica var. carnica Pollm). Ann. Abeille, 4(1) : 43—50.
Ruttner F. (1960) — Die Carnica in der Bienenwirtschaft. Dtsch. Bienewirtsch., 11(10) : 229—237.
Ruttner F. (1965) — Versuch einer Charakterisierung der Carnica-Biene nach ihrem Flügelgeäder. Védecké práce Vyzkumného ústavu včelarského v Dole, 4 : 165—172.
Rytiř J. (1929) — Rozbor morfologických vlastnosti Bathovy Vlasty. Včelařské Rozhledy, 7(8) : 113—119.
Rytiř J. (1930) — Včela medonosná barva a plemenný chov, dědičnost a variabilita. Praha.
Sekczijew A. J. (1965) — Charakteristika morfo-biołogiczeskich i choziajstwiennopoleznych priznakow prostych i słożnych pomiesiej pczeł. XX I.M.K.P. Bucharest.
Skorikow A. S. (1929) — K poznaniu porod kawkaskich pczeł. (Gen. Apis). Izw. Otd. Prikł. Entomoł., 4(1) : 1—60.
Skorikov A. S. (1930) — Neues in der Frage der Bienenrassen. Archiv f. Bienen., 11 : 333—337.
Skorkowski E. (1956) — Analiza biometryczna. Medycyna Weterynaryjna, 12(4) : 213—217.
Snodgrass R. E. (1956) — Anatomy of the Honey Bee. New York, Comstock Pub. Ass. Ithaca.
Strachalska J. (1965) — Opolszczyzna — kraj głębokich kontrastów, Pszczelarstwo, 16(2) : 20—22.
Szeremietjew A. F., Walijew N. M., Korolew W. G., Nieruczew W. M., Petrow I. W. (1965) — Ekołogogeneticzeskije osobiennosti pczeł zakarpackoj obłasti, Baszkirii, gorkowskoj i wołogodskoj obłastiej. XX. I.M.K.P., Bucharest.
Tomšik B. Škrobal D., Veselý V. (1962) — Individualni výbér v chovu včel a jého perspektivy. Sbornik Vysoké školy zemédélské v Brné, (1) : 77—88.
strona 35Veselý V. (1965) — Organizacja pracy hodowlanej w Czechosłowacji. Pszczelarstwo, 16(10) : 6—8.
Vlatkovic B., Kulinçevic J. (1959) — Morfološka ispitivanja pčela Grdelička Klisure, Vranjske kotline, Kosova i Metóhije. Institut za poljoprivredua istrazivanja akmo-Pec, 2(2) : 373—379.
Weiss K. (1954) — Zur Frage der Leistungsverschidenkeit von Nigra- und Krainerbienen. Z.f.Bienenforsch., 2(8) : 213—218.
Weiss K. (1955) — Messungen von Rüssellänge und Reichtiefe bei N-und K-Bienen. Z.f.Bienenforsch., 3(3) : 53—56.
СРАВНЕНИЕ ПЧЕЛЫ ПОДКАРПАТЬЯ С ПЧЕЛАМИ СЕВЕРНОЙ ПОЛЬШИ И БАССЕЙНА РЕКИ ДУНАЯ
Михал Громиш
На основе измерений 8 морфологических признаков у пчел из 210 пчелиных семей установлено, что на пространстве от Балтийского моря по Балканы наблюдается регулярная изменчивость некоторых признаков. На севере пчелы большего размера, имеют более короткий хоботок, более длииные крылья, большее восковое зеркальце и высшее число кубитального индекса. Не обнаружено четкой географической границы между Apis m. mellifica L. и Apis m. carnica Pollm. Между отдельными популяциями имеются промежуточные формы. Пчелы Подкарпатья имеют некоторое сходство с пчелами северной Польши но в большей степени похожи на пчелы бассейна реки Дуная. Они в Польше менее всего унифицированы.
COMPARISON OF BEES FROM CARPATHIAN MOUNTAINS DISTRICT WITH BEES FROM NORTHERN PART OF POLAND AND DUNBE BASIN
Michał Gromisz
On the basis of measurements of 8 morphological characteristics of bees from 210 bee colonies it was stated that there takes place a regular changeability of some of their characteristics in the area from the Baltic Sea as far as the Balkans. In the North the bees have: a) the shorter tongues, b) the longer wings, c) the bigger wax plate and d) the higher number of cubital index. There was not found any distinct geographical boundry between Apis mellifica mellifica L. and Apis mellifica carnica Pollm. Between different bee populations there can be found intermidiate forms. The bees in the Carpathian Mountains area partly similar to the bees from the north of Poland, and to a great extend they are similar to the bees from Dunbe basin. In Poland they represent the least aqualized population.
Errata — błędy druku znalezione podczas digitalizacji
- s. 2: „rochodziły” → rozchodziły
- s. 2: „Menderala” → Mendrala
- s. 3: „Fąrcas” → Farcas
- s. 3: „el Bandy” → el-Banby
- s. 3: „el-Bandy” → el-Banby
- s. 5, ryc. 1, podpis angielski: „Hungary, D — Bułgaria” → Hungary, D — Bulgaria
- s. 7, ryc. 2, podpis angielski: „dimentions” → dimensions
- s. 8: „standardowe odchylenia” → standardowe odchylenie
- s. 9, podtytuł: „CHARAKTERYSTYKA MORFOLOGICZNĄ” → CHARAKTERYSTYKA MORFOLOGICZNA
- s. 10, tab. 1, główka: „all investigeted” → all investigated
- s. 20: „obu tych grupy” → obu tych grup
- s. 21, tab. 4, główka: „Długość przedniego skrzydła / Width of front wing” → Długość przedniego skrzydła / Length of front wing
- s. 25, tab. 5, główka: „Number of investigeted colonies” → Number of investigated colonies
- s. 25, tab. 5, Bułgaria, grupa 4 podziału trzeciego: „14,5″ → 14,3
- s. 26, ryc. 6, podpis angielski: „The smalest distance” → The smallest distance
- s. 26, ryc. 6, podpis angielski: „Nothern Poland” → Northern Poland
- s. 27, ryc. 7, oś pozioma: „Wegry i Bułgaria” → Węgry i Bułgaria
- s. 27, ryc. 7, podpis angielski: „colonies of Dunbe basin” → colonies of Danube basin
- s. 28: „mórfologicznie” → morfologicznie
- s. 28, ryc. 8, podpis: „Polm, z dorzecza” → Pollm. z dorzecza
- s. 28, ryc. 8, podpis angielski: „from the Dunbe basin” → from the Danube basin
- s. 31: „odrębnyh” → odrębnych
- s. 32, LITERATURA, Alber: „Bienenwirtstsch.” → Bienenwirtsch.
- s. 33, LITERATURA, el-Banby: „carnico-egyption” → carnico-egyptian
- s. 34, LITERATURA, Ruttner 1960: „Bienewirtsch.” → Bienenwirtsch.
- s. 35, LITERATURA, Vlatkovic: „poljoprivredua” → poljoprivredna
- s. 35, LITERATURA, Weiss 1954: „Leistungsverschidenkeit” → Leistungsverschiedenheit
- s. 35, streszczenie rosyjskie: „длииные” → длинные
- s. 35, tytuł angielski: „DUNBE BASIN” → DANUBE BASIN
- s. 35, streszczenie angielskie: „bees from Dunbe basin” → bees from Danube basin
- s. 35, streszczenie angielskie: „boundry” → boundary
- s. 35, streszczenie angielskie: „intermidiate” → intermediate
- s. 35, streszczenie angielskie: „great extend” → great extent
- s. 35, streszczenie angielskie: „aqualized” → equalized