

Opis morfologiczny pszczoły norweskiej
tekst: Michał Gromisz
Pszczelnicze Zeszyty Naukowe, Rok XLIV, 2000 — Michał Gromisz
strona 185- długość i szerokość przedniego skrzydła (prawego) mierzono po osi najdłuższej od nasady do jego końca i w najszerszym miejscu pod kątem prostym do osi długiej;
- indeks kubitalny określano metodą Ałpatowa (1948) według wzoru (a:b)100, wyrażano go więc stosunkiem procentowym odcinka krótszego do dłuższego, żyłki stanowiącej podstawę III komórki kubitalnej na prawym skrzydle;
- haczyki liczono na prawym skrzydle (tylnym); oznaczeniami objęto 54 roje;
- diskoidalne przesunięcie na prawym skrzydle oznaczano według metody Goetzego (1959); wielkość odchylenia mierzono w podziałkach okularu, jedna podziałka odpowiada 0,0263 mm (Gromisz i Skowronek 1975); badano 15 rojów (ryc. 2);
- metryczne szacowanie różnic w rysunku zbiegu żyłki środkowej z promieniową na tylnym skrzydle (prawym) oparto na 10-cio stopniowej skali (Gromisz 1981b); badaniami objęto 54 roje (ryc. 1).
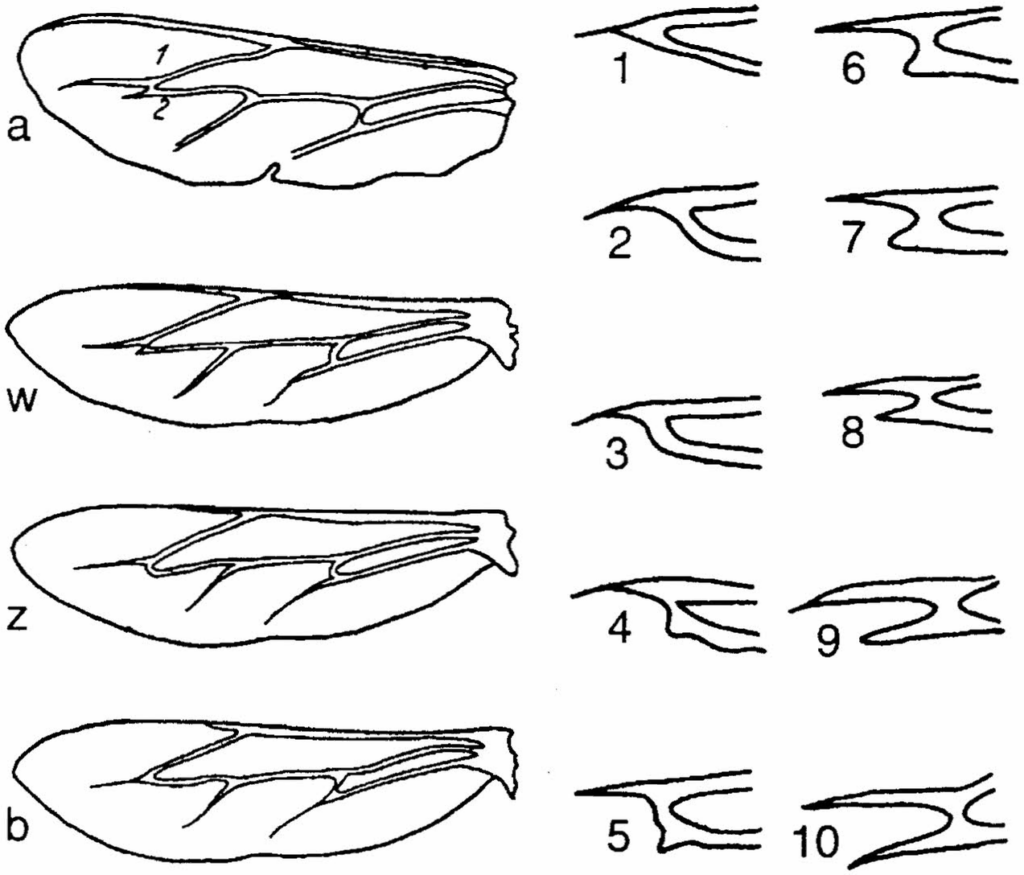
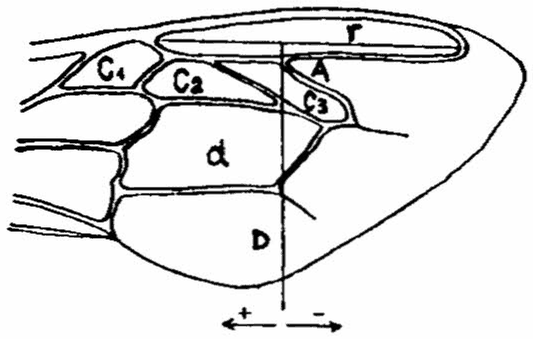
W ten sposób oznaczane cechy miały charakter ilościowy i odpowiadały rozkładowi normalnemu. Z pomiarów robotnic obliczano dla poszczególnych rojów średnią wartość cech (x) oraz standardowe odchylenie (s), którego znaczenie w ocenie morfologicznej kończy się na tym etapie. Natomiast wartości średnie posłużyły jako wyjściowy materiał liczbowy do charakterystyki zbioru rojów, które reprezentowały populację pszczoły norweskiej. Obliczono dla tego zbioru średnie wartości (X) poszczególnych cech i standardowe odchylenie (S). Te parametry, X i S, posłużyły z kolei do konstrukcji modelu populacji. Jego zapis matematyczny jest następujący:
-3< z >+3
z oznacza znormalizowaną wartość cechy roju według wzoru:
z = (x – X) : S
We wzorze tym wartości X i S charakteryzują grupę rojów i jako takie są wartościami stałymi, natomiast x oznacza średnie wartości rzeczywiste cechy dowolnego roju, który jest poddawany modelowej weryfikacji. Ostateczna postać równania modelowego sprowadza się do zapisu:
z = ax + b
w którym współczynnik a i liczba stała b są inne dla poszczególnych cech morfologicznych danej populacji pszczół, w tym przypadku norweskich.
Podkreślamy, że eksponowane w Wynikach równania modelowe są oparte na wartościach S rzeczywistych dla populacji pszczoły norweskiej i dotyczą one 9 cech morfologicznych (9 równań). Jako dopełnienie przedstawiamy na drugim planie zapis modelowy tej populacji oparty na sformalizowanych
strona 187wartościach S, jakie przyjęto w polskiej hodowli zarodowej dla wygody i dużej przydatności praktycznej w ocenie morfologicznej selekcjonowanych linii pszczół trzech ras środkowoeuropejskiej, kaukaskiej i kraińskiej (Gromisz 1981a). Model ten dotyczy trzech cech, szerokości IV tergitu, długości języczka i indeksu kubitalnego, uważanych za podstawowe w tego rodzaju wykorzystaniu.
WYNIKI I DYSKUSJA
Populację rodzimej ciemnej pszczoły reprezentowały w badaniach 82 roje, z których pobierano próbki pszczół do pomiarów 9 cech morfologicznych. Dla każdej próbki-roju oznaczano średnią arytmetyczną wartość cechy. Zbiór tych średnich wartości posłużył do szacowania parametrów populacji: wartości średniej (X), standardowego odchylenia (S) i średniego błędu średniej (Sx). Dane te dla poszczególnych cech zawarto w tabeli 1.
Tabela 1. Charakterystyka morfologiczna populacji pszczoły norweskiej. Morphological characteristic of the population of the Norwegian bee.
| Cecha – Feature | Liczba rojów / Number of colonies | Średnia arytmetyczna / Arithmetic mean | Błąd średni średniej / Mean error of a mean | Standardowe odchylenie / Standard devation |
|---|---|---|---|---|
| 1. Szerokość IV tergitu w mm – Width of tergit IV in mm | 82 | 2,336 | 0,0030 | 0,0273 |
| 2. Długość języczka w mm – Tongue length | 82 | 6,072 | 0,0088 | 0,0799 |
| 3. Indeks kubitalny – Cubital index | 82 | 64,8 | 0,3599 | 3,259 |
| 4. Powierzchnia lusterka woskowego w mm2 – Surface of wax mirror | 82 | 2,634 | 0,0101 | 0,0919 |
| 5. Długość skrzydła w mm – Wing length in mm | 82 | 9,436 | 0,0104 | 0,0939 |
| 6. Szerokość skrzydła w mm – Wing width in mm | 82 | 3,164 | 0,0048 | 0,0436 |
| 7. Liczba haczyków – Number of wing hooks | 54 | 21,2 | 0,0740 | 0,544 |
| 8. Użyłkowanie skrzydła tylnego – Venation of the posterior wing | 54 | 4,197 | 0,0411 | 0,3023 |
| 9. Diskoidalne przesunięcie – Dyscoidal shift | 15 | -2,23 | 0,3444 | 1,334 |
Zwraca uwagę przede wszystkim duże wyrównanie populacji tej pszczoły, znacznie ono przewyższa wzorzec standardu rasowego przyjętego w polskiej hodowli zarodowej, który tu przytaczamy dla trzech cech podstawowych:
„` długość języczka S = 0,0980 mm szerokość IV tergitu S = 0,0412 mm indeks kubitalny S = 3,215 „`
strona 188Pod tym względem należy zatem wysoko ocenić pszczołę norweską, traktowaną jako zbiór rojów. Jak na populację nieselekcjonowaną należy się jej także wysoka nota za wyrównanie w obrębie poszczególnych rojów pomiędzy robotnicami. Zmienność osobnicza na przykład szerokości IV tergitu w żadnym przypadku nie sięga s = 0,08 mm, natomiast długość języczka tylko w 5-ciu rojach na 82 badanych przekracza s = 0,18 mm, a indeksu kubitalnego w 16 rojach przewyższa s = 8,0. To są wartości przyjęte jako graniczne w ocenie morfologicznej rojów selekcjonowanych populacji. Zmienność osobniczą niektórych pozostałych cech możemy odnieść do dość ostrych kryteriów przyjętych przez nas w hodowli doświadczalnej: powierzchnia lusterka woskowego s = 0,12 mm , długość skrzydła s = 0,15 mm, forma zakończenia żyłki środkowej na tylnym skrzydle s = 1,0. Te pułapy zostały przekroczone tylko w powierzchni lusterka woskowego w 23% rojów. W ogóle sporo rojów pszczół norweskich charakteryzowało się bardzo dużym wyrównaniem.
Wysokie wyrównanie na poziomie poszczególnych rojów i na poziomie ich zbioru dobrze świadczy o jednorodności populacji, co stanowi solidne podstawy, na których można oprzeć konstrukcje modelu matematycznego. Tym kryterium odpowiadała w pełni badana populacja pszczoły norweskiej. Budowę jej modelu rozpoczęto od rozwinięcia równania z = (x-X):s dla na przykład długości języczka:
Z = (x-X) : s = (x – 6,072 mm) : 0,0799 mm = 12,5156x − 75,9947
Tabela 2. Model matematyczno-morfologiczny pszczoły norweskiej w zakresie 9 cech; z – znormalizowana wartość cechy, x – średnia wartość rzeczywista cechy dowolnego roju – Mathematical-morphological model of the Norwegian bee in the range of 9 features.; z – normalised feature value, x – mean real value of the feature of an individual bee swarm
| Cecha – Feature | Równanie modelowe |
|---|---|
| 1. Szerokość IV tergitu – Width of targit IV | z = 36,6300x − 85,5677 |
| 2. Długość języczka – Length of the tongue | z = 12,5156x − 75,9947 |
| 3. Indeks kubitalny – Cubital index | z = 0,3068x − 19,8806 |
| 4. Powierzchnia lusterka woskowego – Surface of wax mirror | z = 10,8814x − 28,6616 |
| 5. Długość skrzydła przedniego – Length of the anterior wing | z = 10,6496x − 100,4896 |
| 6. Szerokośc skrzydła przedniego – Width of the anterior wing | z = 22,9336x − 72,5619 |
| 7. Liczba haczyków – Number of wing hooks | z = 1,8382x − 38,9698 |
| 8. Użyłkowanie skrzydła przedniego -Venation of the anterior wing | z = 3,3080x − 13,8837 |
| 9. Diskoidalne przesunięcie – Dyscoidal shift | z = 0,7496x + 1,6716 |
Podobnie postępiono w przypadku pozostałych cech. Odpowiednie równania podano w tabeli 2. Służą one do obliczania znormalizowanych wartości cech rojów w odniesieniu do populacji modelowej, której średnia wartość równa się 0 a standardowe odchylenie 1. Pojemność modelu ograniczają krańcowe wielkości –3 i +3. Wszystkie roje, które mieszczą się w tym przedziale, spełniają warunki przynależności do populacji pszczoły norweskiej.
strona 189Znając średnie rzeczywiste wartości poszczególnych cech dowolnego roju, możemy określić jego miejsce w modelowej populacji. Wystarczy te wartości podstawić do wzoru w miejsce x i wykonać działanie. W praktyce najczęściej chodzi o weryfikację poszczególnych rojów, rzadziej większego ich zbioru. Należy oczekiwać, że najwięcej przypadkowych rojów uzyska lokalizacje w przedziale od –1 do +1, jak to wynika z właściwości rozkładu normalnego, którego warunki spełniają cechy ilościowe jednorodnych populacji. Dotyczy to także zbioru norweskich rojów, którego parametry średnie posłużyły do konstrukcji modelu. Zbieżność rozkładu modelowego i rzeczywistego jest więc tutaj na miejscu, jak przedstawiono dla długości języczka na rycinie 3, co nie dziwi, tak jak i drobne odchylenia, jakie tu są widoczne. Wynikają one przede wszystkim z ograniczeń liczbowych próby. Modelowy rozkład rojów jest następujący:
„`
- 1 – 0 i 0 – +1 – po 34%
- 2 – -1 i +1 – +2 – po 13,5%
- 3 – -2 i +2 – +3 – po 2,35%
- 3> i +3< – po 0,15% „`
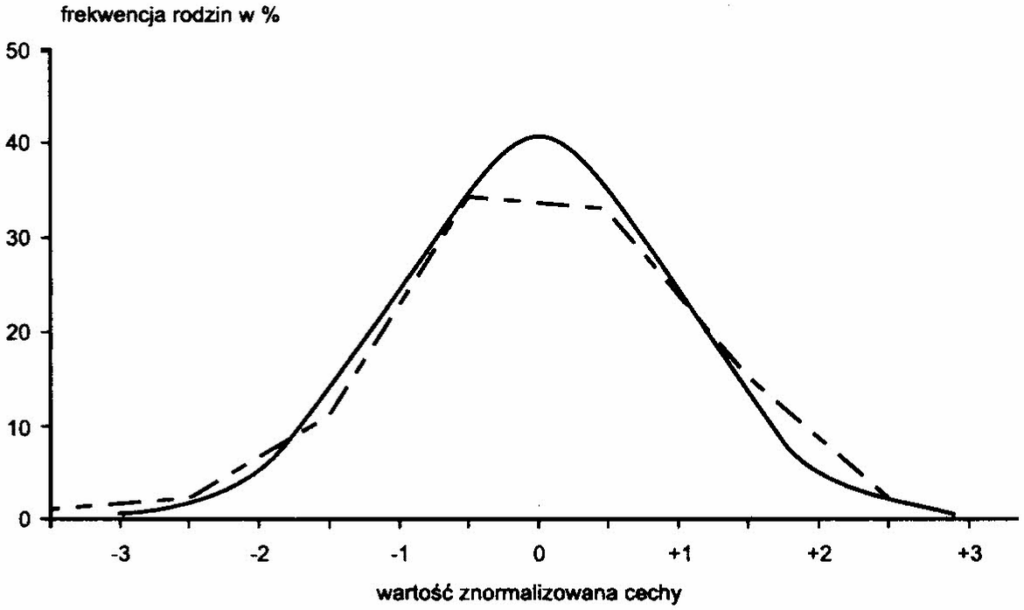
Widzimy, że model obejmuje 99,7% rojów populacji, skoro z założenia kwestionujemy przynależność do niej tych rojów, które znajdą się poza przedziałem –3 – +3. Ta różnica do 100% jest ryzykiem popełnienia błędu w tego rodzaju ocenie morfologicznej. Znaczy to, że w miarę oddalania się od
strona 190zerowego miejsca modelu, maleje prawdopodobieństwo przynależności rojów do modelowej populacji. W ocenie pojedynczego roju nie ma to praktycznie większego znaczenia, natomiast w kwalifikowaniu większej ich grupy, której przypisuje się jednorodność, konieczny jest dopełniający sprawdzian. Zasadza się on na granicznych uwarunkowaniach wielkości znormalizowanej wartości standardowego odchylenia w relacji do znormalizowanej wartości cechy. W polskiej praktyce hodowlanej do tego rodzaju bonitacji służą odpowiednie zestawienia tabelaryczne.
Użyteczność modelów populacji nabiera szczególnej wagi na obszarach, gdzie są selekcjonowane pszczoły więcej niż jednej rasy. W Polsce mamy oficjalnie do czynienia z rasą środkowoeuropejską, kaukaską i kraińską. Każdej z tych ras służy odrębny model morfologiczny, ale ich konstrukcję oparto na jednakowym dla wszystkich sformalizowanym standardowym odchyleniu. Ponieważ niektórzy polscy hodowcy interesują się pszczołą norweską, dopisano do kompletu jej model, zbudowany na obowiązujących w Polsce zasadach:
„` szerokość IV tergitu z = 24,2718x − 56,6989 długość języczka z = 10,2041x − 61,9593 indeks kubitalny z = 0,311x − 20,1528 „`
Skoro zapożyczono wzory oceny morfologicznej tyczące także selekcjonowanej w Polsce pszczoły środkowoeuropejskiej, nasuwa się pytanie w jakiej relacji do tej rasy pozostaje pszczoła norweska, należąc do tego samego podgatunku Apis mellifera mellifera. W szacowaniu przybliżenia wykorzystamy równania modelowe dla pszczoły środkowoeuropejskiej, podstawiając do nich parametry (x) pszczoły norweskiej:
„` szerokość IV tergitu z = 24,217x − 57,1844 x = 2,336 długość języczka z = 10,2041x − 62,3981 x = 6,072 indeks kubitalny z = 0,311x − 19,0954 x = 64,8 „`
Po wykonaniu obliczeń otrzymano znormalizowaną wartość średnią cech dla populacji norweskiej, która wyznacza ich miejsce w modelu rasy środkowoeuropejskiej. Podano niżej te wartości średnie (z), dopisując obok odpowiadające im znormalizowane standardowe odchylenia (sz):
„` z sz szerokość IV tergitu -0,485 0,6626 długość języczka -0,439 0,8153 indeks kubitalny +1,057 1,0137 „`
strona 191Na dalszym etapie tego sprawdzianu można skorzystać z zestawienia tabelarycznego, jakim posługują się polscy hodowcy. Sporządzimy wypis z tego zestawienia: otóż dla z = -0,485 i z = -0,439 graniczna wartość znormalizowanego standardowego odchylenia wynosi 1,1, natomiast dla z = +1,057 równa się ona 0,9667. Graniczna – to znaczy taka wielkość, po przekroczeniu której można kwestionować przynależność ocenianej grupy rojów do populacji modelowej. Mamy więc wtedy dwie różne populacje pszczół według dowodu statystyczno-matematycznego. Indeks kubitalny jest zatem tą cechą, która może dobrze służyć w taksonomii hodowlanej, gdy obiektem starań jest pszczoła norweska w ramach podgatunku Apis mellifera mellifera, reprezentowanego w tej części Europy przez pszczołę środkowoeuropejską. Wartość niektórych cech morfologicznych pszczoły środkowoeuropejskiej, której modelem się posłużono, jest następująca: szerokość IV tergitu 2,356 mm, długość języczka 6,115 mm, indeks kubitalny 61,4, powierzchnia lusterka woskowego 2,733 mm, długość skrzydła przedniego 9,385 mm, szerokość skrzydła 3,174 mm, liczba haczyków 20,5, użyłkowanie skrzydła tylnego 4,20, diskoidalne przesunięcie – 2,34.
WNIOSKI
Pod względem morfologicznym pszczoła norweska charakteryzuje się dużym wyrównaniem zarówno wewnątrz rojów jak i pomiędzy rojami, co dobrze świadczy o jednorodności populacji.
Wartością cech morfologicznych jest ona bliska pszczole środkowoeuropejskiej selekcjonowanej w Polsce; jest ona od niej nieco mniejsza, ma krótszy języczek i większą wartość indeksu kubitalnego.
W morfologicznej ocenie pszczoła norweska kwalifikuje się do potraktowania jej jako odrębnego taksonu hodowlanego, który z racji geograficznego zasięgu i tradycji odpowiada pszczole wrzosowej.
Z trzech podstawowych cech morfologicznych (szerokość IV tergitu, długość języczka i indeks kubitalny), które służą systematyce w obrębie gatunku Apis mellifera, tylko indeks kubitalny może mieć znaczenie taksonomiczne w hodowli sympatrycznej pszczoły norweskiej i pszczoły środkowoeuropejskiej jako odrębnych grup rasowych w ramach podgatunku Apis mellifera mellifera; należy zatem na tę okazję skompletować specjalny zestaw cech.
LITERATURA
Ałpatow W.W. (1948) – Porody miedonosnej pczeły. Moskwa
strona 192Bornus L. (1960) – Badania nad zależnością wielkości lusterka woskowego do wielkości pszczoły. Pszczeln. Zesz. Nauk., 4(2):73-86.
Buttel-Reepen H. (1925) – Leben und Wessen der Bienen.Verlag Friede. Vieweg 8 Sohn, Braunschweig.
Demianowicz A. (1957) – Systematyka pszczół. w: Hodowla pszczół, PWRiL Warszawa
Goetze C. (1940) – Die beste Biene. Verlag Liodlaft, Loth i Michaelis, Leipzig
Goetze C. (1959) – Die Bedeutung des Flügelgeaders fur züchterische Beurteilung der Honigbine. Zeitschrift. F. Bienenforschung., 4(7):141-148.
Gromisz M. (1981a) – Morfologiczna ocena populacji rojów w pasiekach zarodowych. Pszczeln. Zesz. Nauk., 25:51-66.
Gromisz M. (1981b) – Użyłkowanie tylnego skrzydła pszczoły miodnej jako cecha taksonomiczna. Pszczeln. Zesz. Nauk., 25:97-104.
Gromisz M., Skowronek W. (1975) – Ocena przydatności przesunięcia diskoidalnego w systematyce pszczoły miodnej. Pszczeln. Zesz. Nauk., 29:93-107.
Prabucki J., Bobrzecki J. (1975) – Zastosowanie różnych miseczek i różnego podłoża w norweskiej metodzie produkcji matek pszczelich. Pszczelarstwo, 26(11):4-5.
Ruttner F. (1988) – Biogeography and taxonomy of honeybees. Springer-Verlag. Heidelberg-New York.
Ruttner F., Milner E., Dews J.E. (1990) – The dark european Honeybee. Published by the British Isles Bee Breeders Association.
Snodgrass R.E. (1956) – Anatomy of the Honey Bee. New York, Lomstock Pub. Ass. Ithaca.
Michał Gromisz
Summary
Local bees were studied morphologically in Norway.
The bees were similar within and among the colony. They are very close morphologically to the Central Europe bee selected in Poland; however, the bee examined is a little smaller, has a shorter tongue and a higher value of the cubital index. It may be considered a separate breeding taxon, which corresponds to the heather bee geographically and shares the apiary tradition point of view.
Keywords: honey bee, heather bee, Central Europe bee, morphological features, taxsonomy, mathematical model of population, Norway, Poland.
Errata — błędy druku znalezione podczas digitalizacji
- s. 187, tab. 1: „Standard devation” → Standard deviation
- s. 188, tab. 2: „Width of targit IV” → Width of tergit IV
- s. 188, tab. 2: „Szerokośc” → Szerokość
- s. 188, tab. 2: „Użyłkowanie skrzydła przedniego” → Użyłkowanie skrzydła tylnego
- s. 188, tab. 2: „Venation of the anterior wing” → Venation of the posterior wing
- s. 192, piśmiennictwo: „Wessen” → Wesen
- s. 192, piśmiennictwo: „Friede.” → Friedr.
- s. 192, piśmiennictwo: „Vieweg 8 Sohn” → Vieweg & Sohn
- s. 192, piśmiennictwo: „Liodlaft” → Liedloff
- s. 192, piśmiennictwo: „Flügelgeaders” → Flügelgeäders
- s. 192, piśmiennictwo: „fur züchterische” → für züchterische
- s. 192, piśmiennictwo: „Honigbine” → Honigbiene
- s. 192, piśmiennictwo: „Lomstock” → Comstock
- s. 192, streszczenie: „taxsonomy” → taxonomy