

OCENA MORFOLOGICZNA PSZCZÓŁ Z PASIEK ZARODOWYCH
tekst: Michał Gromisz
Pszczelnicze Zeszyty Naukowe, Rok XVI, 1972 — Michał Gromisz
strona 1PSZCZELNICZE ZESZYTY NAUKOWE ROK XVI LISTOPAD 1972
Michał Gromisz
Oddział Pszczelnictwa IS
WPROWADZENIE
Hodowlą pszczół interesowano się w Polsce od dawna. W miarę polepszania metod wychowu matek wzrastała ich ilość oferowana na sprzedaż. Równolegle zwiększały się wymagania nabywców co do jakości genetycznej matek. Dopingowało to hodowców do poświęcania więcej uwagi pracom selekcyjnym. W okresie międzywojennym wiele pasiek prowadziło selekcję pszczół, ale zakres ich oddziaływania był stosunkowo niewielki.
W odbudowanym po wojnie pszczelarstwie sprawy hodowlane zajęły czołowe miejsce. Powołano strefowe Stacje Hodowli Matek i organizowano trutowiska (Demianowicz 1951). Pod koniec lat pięćdziesiątych podjęto próbę ujednolicenia działalności pasiek hodowlanych na terenie kraju, przede wszystkim w zakresie metod selekcji i dystrybucji materiału hodowlanego (Bornus 1964).
Masowe badania morfologiczne pszczoły krajowej podjęte w 1957 roku przez Oddział Pszczelnictwa (Bornus, Demianowicz, Gromisz — 1966), umożliwiły pełniejsze poznawanie i ocenę wartości hodowlanej materiału zarodowego. Dalsze badania pozwoliły na polepszanie metod pracy selekcyjno-hodowlanej, przede wszystkim w zakresie cech morfologicznych (Bornus i Mackiewicz 1966, Bornus, Gromisz i Weliczkow 1967, Bornus i Gromisz 1970, Gromisz i Bornus 1971).
Prawie we wszystkich systemach organizacyjnych hodowli pszczół cechy morfologiczne brane są pod uwagę w ocenie materiału zarodowego (Tomšik, Škrobal, Vesely — 1962, Bährmann, Gromisz, Veselý — 1966, Bährmann — 1967, Ruttner — 1967, Veselý — 1968). Zakres i sposób ich wykorzystywania jest jednak różny. Służą one na przykład do oznaczania przynależności rasowej selekcjonowanych pszczół bądź też są obiektem selekcji.
strona 2W stosowanym u nas systemie oceny początkowo wyżej punktowano roje zarodowe bliższe wartościom cech przeciętnych dla rasy (typu), natomiast w późniejszym okresie wprowadzono poprawkę, zapewniającą w ramach rasy lepszą ocenę dla pszczół o większych wymiarach ciała i o dłuższym języczku (Bornus — 1964, Bornus, Gromisz, Weliczkow — 1967). Wprowadzono także zmiany co do doboru ocenianych cech, zrezygnowano mianowicie z oznaczania długości i szerokości skrzydła, a także z punktowania wartości wskaźników zmienności. Obecnie oceny morfologicznej materiału zarodowego dokonuje się na podstawie średnich wartości cech: sumy szerokości III i IV tergitu odwłokowego, długości języczka i indeksu kubitalnego.
W ciągu wielu lat pracy selekcyjnej w pasiekach zarodowych na terenie kraju zgromadzono obfity materiał z zakresu morfologii pszczół. Pragniemy przedstawić tutaj opracowanie tego materiału.
MATERIAŁ I METODA
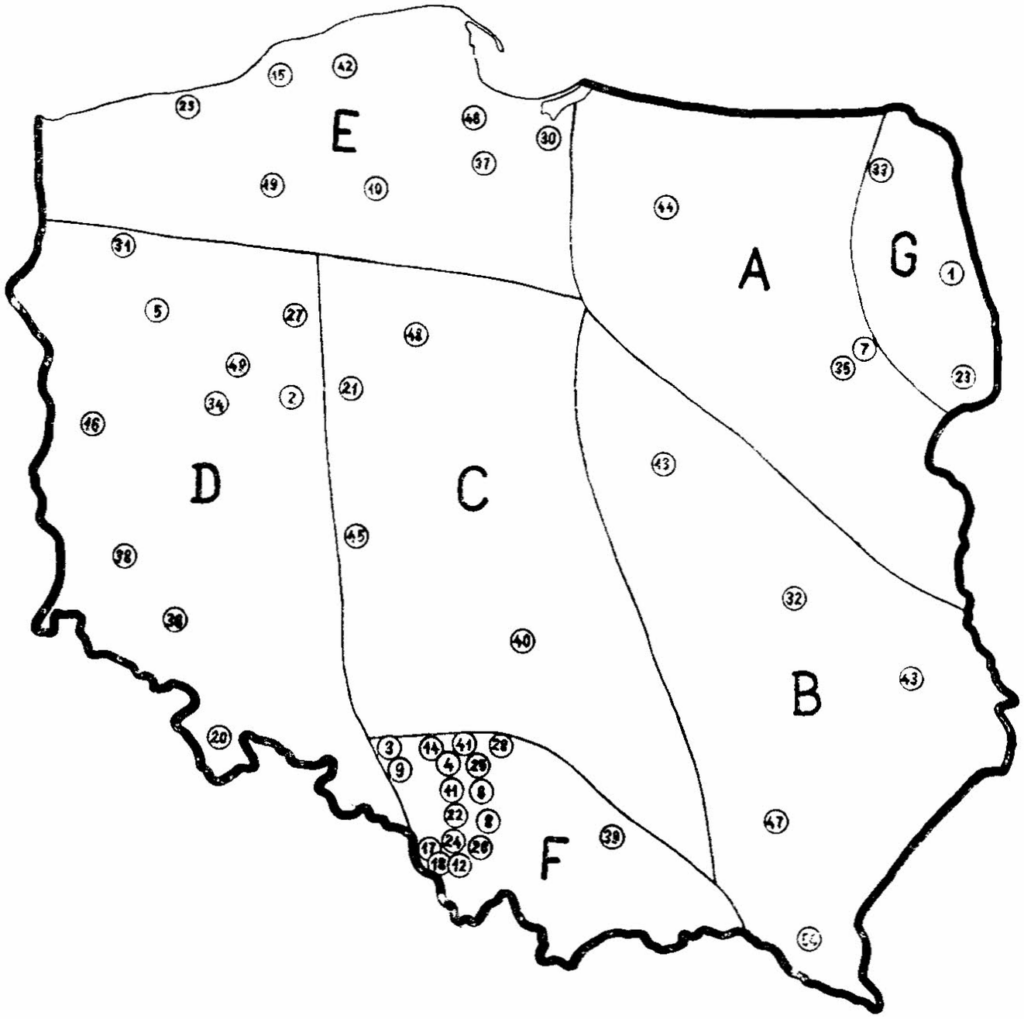
W okresie 1962—1970 badano pod względem morfologicznym 352 roje w 50 pasiekach zarodowych bądź kandydujących na zarodowe według rejestru prowadzonego przez Polski Związek Pszczelarski (ryc. 1, tab. 1). Oznaczano trzy cechy: sumę szerokości III i IV tergitu odwłokowego, długość języczka i indeks kubitalny. Stosowano metodykę pomiarów przyjętą w Oddziale Pszczelnictwa IS (Bornus, Demianowicz, Gromisz — 1966). Początkowo mierzono w każdym roju 100, a w późniejszym okresie 50 i 30 robotnic. Obliczono następnie średnie arytmetyczne (x̄) wartości cech dla rojów oraz wskaźniki zmienności (V) według wzoru:
V = 100 S : x̄,
gdzie przez S oznaczono standardowe odchylenie.
Analizę rojów zarodowych pod względem ich typu morfologicznego przeprowadzano na podstawie modeli matematycznych opracowanych przez Gromisza i Bornusa (1971) dla zbiorczej populacji pszczoły krajowej, populacji regionalnych (7 modeli) i dla dwóch typów pszczoły występującej na terenie Polski.
W celu scharakteryzowania wyrównania populacji pszczół w pasiekach zarodowych, obliczono odległości pomiędzy rojami według wzoru:
Odległość a — b = y_a — y_b,
gdzie odległość pomiędzy rojem a i rojem b równa się sumie różnic ich wskaźników podobieństwa (y_a i y_b) pod względem poszczególnych cech w stosunku do zbiorczej populacji pszczoły krajowej. Do porównań tego rodzaju wykorzystano także materiał opracowany przez Gromisza (1967) dla populacji pszczoły krajowej i populacji z dorzecza Dunaju.
strona 3Tabela 1 Wykaz pasiek objętych badaniami morfologicznymi List of apiaries included in morphological investigation
| Nr pasieki / No of apiary | Hodowca / Breeder | Rejon / Area | Liczba badanych rojów / Number of investigated colonies | Rok badania / Year of investigation |
|---|---|---|---|---|
| 1 | Bałakier Wincenty | G | 1 | 1962 |
| 2 | Bartkowiak Stanisław | D | 1 | 1965 |
| 3 | Brandys Alojzy | F | 3 | 1968 |
| 4 | Borek Alfons | F | 2 | 1968 |
| 5 | Bortnik Władysław | D | 4 | 1969 |
| 6 | Cubała Jan | F | 6 | 1968, 1969 |
| 7 | Dworakowski Stanisław | A | 1 | 1961 |
| 8 | Etgens Stefan | F | 7 | 1962, 1963, 1966—1969 |
| 9 | Golli Paweł | F | 3 | 1964 |
| 10 | Grunt Wacław | E | 14 | 1964—1966, 1970 |
| 11 | Grzegorczyk Henryk | F | 7 | 1968, 1970 |
| 12 | Gwóźdź Antoni | F | 8 | 1962, 1963, 1967 |
| 13 | Hetman Marian | B | 15 | 1968—1970 |
| 14 | Jańczyk Paweł | F | 1 | 1968 |
| 15 | Kaczmarek Alojzy | E | 1 | 1969 |
| 16 | Karpik Bolesław | D | 3 | 1969 |
| 17 | Kubeczek Józef | F | 14 | 1966, 1967, 1969, 1970 |
| 18 | Kubok Józef | F | 7 | 1963, 1964, 1966 |
| 19 | Kulawik Ryszard | E | 1 | 1969 |
| 20 | Kumko Weronika | D | 36 | 1962, 1964, 1966, 1969, 1970 |
| 21 | Kwiatkowski Kazimierz | C | 1 | 1966 |
| 22 | Langer Józef | F | 12 | 1968, 1970 |
| 23 | „Las” | G | 2 | 1962 |
| 24 | Niemiec Karol | F | 2 | 1970 |
| 25 | Nyc Hubert | F | 3 | 1970 |
| 26 | Paluch Jan | F | 1 | 1969 |
| 27 | Paluszkiewicz Ludwik | D | 5 | 1969 |
| 28 | Peła Alojzy | F | 3 | 1968 |
| 29 | Pestka Jan | E | 1 | 1969 |
| 30 | Przybylski Zygmunt | E | 1 | 1970 |
| 31 | RRZD Barzkowice | D | 5 | 1970 |
| 32 | RRZD Końskowola | B | 3 | 1967 |
| 33 | RRZD Siejnik | G | 53 | 1962, 1968—1970 |
| 34 | RRZD Sielinko | D | 15 | 1962, 1969, 1970 |
| 35 | RRZD Szepietowo | A | 36 | 1962, 1963, 1965, 1967, 1968 |
| 36 | RRZD Targoszyn | D | 2 | 1966 |
| 37 | SZD Miłobądź | E | 16 | 1962, 1964, 1967, 1969 |
| 38 | Słonecki Jerzy | D | 9 | 1966, 1968 |
| 39 | SHiUP Bochnia | F | 3 | 1964 |
| 40 | Stasiński Aleksander | C | 6 | 1962, 1963, 1967 |
| 41 | Strzebińczyk Bernard | F | 3 | 1969 |
| 42 | Swat Stanisław | E | 3 | 1970 |
| Nr pasieki | Hodowca | Rejon | Liczba badanych rojów | Rok badania |
|---|---|---|---|---|
| 43 | Szichowicz Stanisław | B | 1 | 1970 |
| 44 | Trybocki Władysław | A | 2 | 1970 |
| 45 | Wiatr Jan | C | 3 | 1969 |
| 46 | WZP Gdańsk | E | 4 | 1967, 1970 |
| 47 | WZP Rzeszów | B | 1 | 1966 |
| 48 | ZD Kołuda Wielka | C | 4 | 1966, 1969 |
| 49 | Zmitrukiewicz Jan | D | 1 | 1967 |
| 50 | Żołna Jan | B | 16 | 1968, 1970 |
Jako miarę zmienności cech wewnątrz rojów przyjęto wskaźniki zmienności. Kształtowanie się ich wartości dla rojów zarodowych zinterpretowano na podstawie porównania do materiałów zaczerpniętych z opracowania Bornusa, Demianowicza i Gromisza (1966) dla zbiorczej populacji pszczoły krajowej.
WYNIKI I DYSKUSJA
W ramach oceny materiału hodowlanego pod względem morfologicznym przebadano w latach 1962—1970 na terenie kraju 352 roje zarodowe. Przeciętna wartość ze wszystkich pomiarów wynosi dla sumy szerokości III i IV tergitu odwłokowego — 5,91 mm, dla długości języczka — 6,18 mm, dla indeksu kubitalnego — 57,2. Najmniejsze i największe wartości średnich dla rojów wyznaczają bardzo szerokie przedziały ich różnicowania się, odpowiednio od 4,61 mm do 5,10 mm, od 5,90 mm do 6,92 mm i od 39,8 do 71,4. Krańcowe odchylenia występują jednak rzadko, bo 80% ocenianych rojów nie przekracza granic 4,73 mm — 4,97 mm w szerokości III i IV tergitu, 6,04 mm — 6,37 mm w długości języczka oraz 49,5—65,7 w wartości indeksu kubitalnego.
Pszczoły, które są wybierane do hodowli na terenie kraju, charakteryzują się dużym zróżnicowaniem morfologicznym. Jest ono uzasadnione, jeżeli nie wykracza poza rozmiary zmienności populacji pszczół krajowych. Model takiej populacji został opracowany przez Gromisza i Bornusa (1971) na podstawie badania 389 rojów. Z matematycznego równania tego modelu obliczono wskaźniki podobieństwa dla każdego roju zarodowego, oddzielnie dla poszczególnych cech. Przy wskaźnikach podobieństwa, które są liczbą standardowego odchylenia od średniej arytmetycznej populacji zbiorczej, zachowano znaki plus lub minus w celu uwidocznienia kierunku odchylenia.
Wszystkie badane roje zarodowe pod względem szerokości III i IV tergitu mieszczą się w obrębie populacji pszczoły krajowej, ich wskaźniki podobieństwa nie przekraczają liczby 3, którą przyjęto jako wartość graniczną (prawdopodobieństwo pomyłki 1%).
Inne wyniki otrzymujemy przy ocenie dwóch pozostałych cech, a zwłaszcza długości języczka (ryc. 2). Pod tym względem przynależność 10% rojów zarodowych do populacji krajowej staje się wątpliwa. Legitymują się one o wiele za długimi języczkami w porównaniu do naszej pszczoły miejscowej. Można się więc tutaj dopatrywać udziału obcych ras pszczół w selekcjonowanym materiale. Dlatego co roku pewna liczba rojów otrzymuje ocenę negatywną pod względem morfologicznym.
Hodowlę pszczół krajowych prowadzi się w oparciu o materiał miejscowy. Rozumiemy to dosłownie: na przykład w Gdańskim szukamy odpowiednich rojów w populacji nasiedlającej Pomorze, a w Białostockiem
strona 6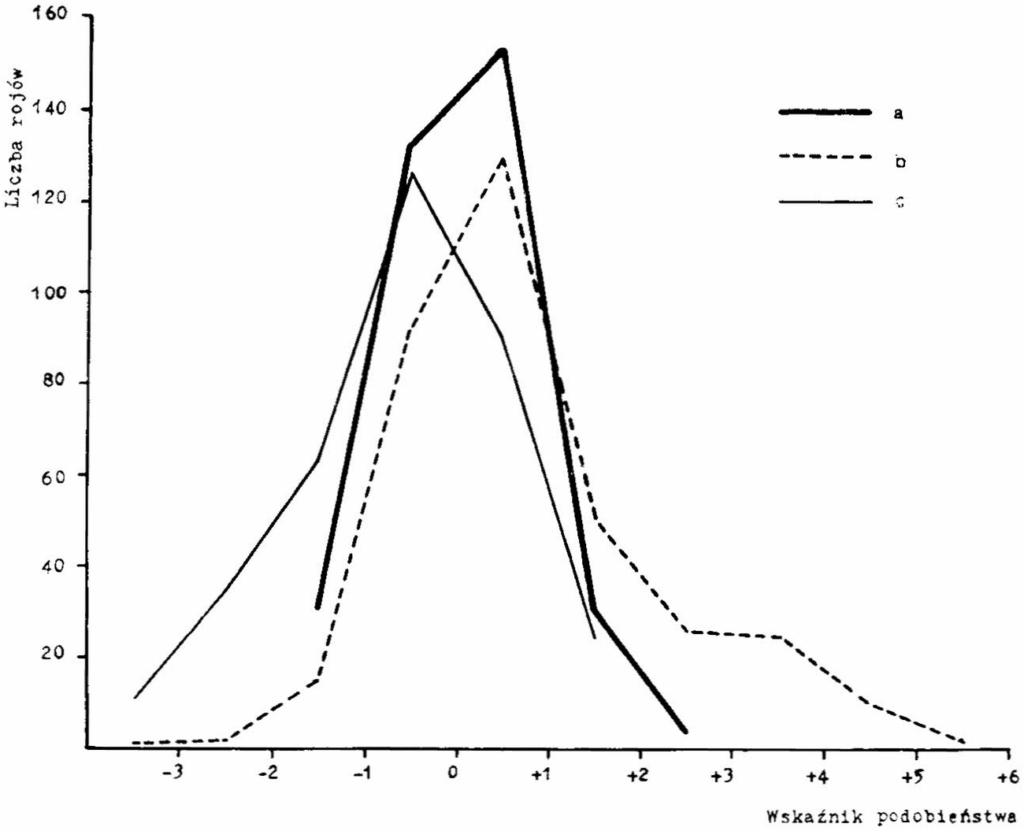
— Podlasie. Pogłowie poszczególnych pasiek zarodowych mieści się więc w obrębie wartości cech pszczół odpowiednich populacji regionalnych, które różnią się nieraz znacznie między sobą. Czy warunek ten zostaje w praktyce zachowany, postaramy się wykazać, wykorzystując do tego celu modele regionalnych populacji pszczół. Obliczyliśmy zatem wskaźniki podobieństwa poszczególnych rojów zarodowych, dobierając odpowiednie modele populacji, zależnie od geograficznego położenia pasieki według oznaczeń na rycinie 1.
Wskaźniki podobieństwa przeważającej części rojów (przeciętnie 87%) mieszczą się w przedziale od —2 do +2 (ryc. 3). Graniczny wskaźnik 3 przekracza w wartości indeksu kubitalnego 2% rojów, w sumie szerokości III i IV tergitu 4%, w długości języczka 22%. Jest to większy odsetek niż otrzymaliśmy przy porównaniu z modelem populacji krajowej. Pamiętajmy jednak, że zakres zmienności w populacjach regionalnych jest mniejszy niż w zbiorczej populacji krajowej. Wymagania regionalne
strona 7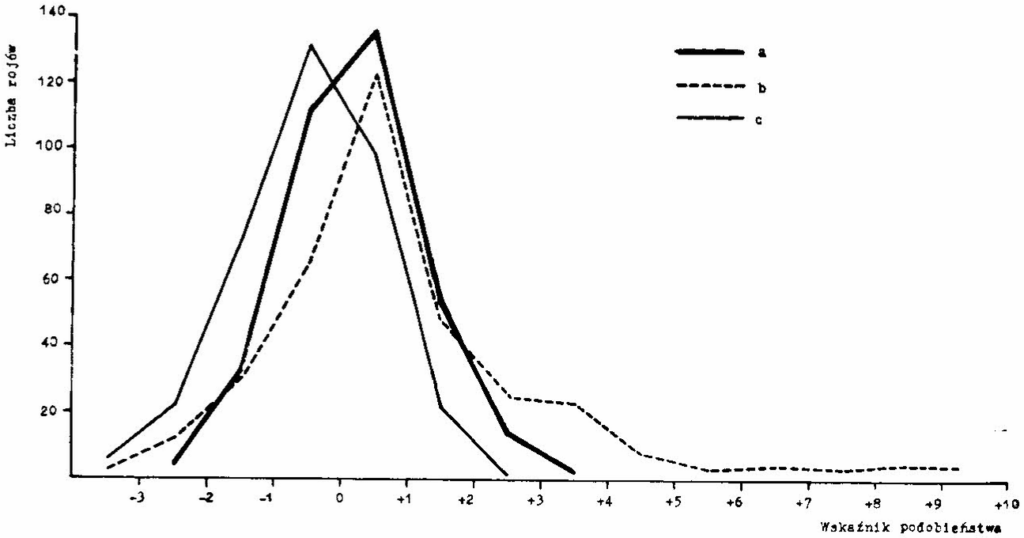
są zatem bardziej skonkretyzowane. Ilustrują to dobrze krańcowe odchylenia na plus wskaźników podobieństwa rojów pod względem długości języczka. Zastosowanie w ocenie tych rojów modeli regionalnych zwiększa ich odległość od średniej arytmetycznej z 5—6 do 9—10 wielokrotności odchylenia standardowego. Na peryferiach populacji regionalnej mogą się znaleźć zarówno roje obce rasowo jak i mieszczące się w ramach populacji krajowej, lecz właściwe innym regionom. Często wynika to z poszukiwania materiału zarodowego w miejscowościach oddalonych znacznie od terenu lokalizacji pasieki zarodowej. Z tego powodu jak i z innych zarysowuje się niezgodność morfologiczna pszczół pasiek zarodowych i populacji miejscowej przede wszystkim w regionie B i F. Są to jednak przypadki sporadyczne. Przeważająca większość rojów odpowiada populacjom regionalnym, można zatem uważać, że hodowcy selekcjonują pszczołę miejscową. Zaznaczają się przy tym tendencje do utrwalania typu morfologicznego pszczół, o przeciętnej wartości cech dla populacji regionów, a więc występującego najliczniej w pogłowiu nieselekcjonowanym. Ta selekcja zachowawcza zachodzi samorzutnie, bo wartość cech morfologicznych praktycznie nie wywiera wpływu na wybór matek do reprodukcji. Główne kryterium stanowi tu użytkowość rojów. Hodowcy znajdują miodne roje w każdej klasie wartości cech morfologicznych od —3 do +3, w stosunkach ilościowych odpowiadających liczebności poszczególnych klas. Najwięcej wybranych
strona 8rojów mieści się w przedziale od —1 do +1, bo on jest też najliczniej reprezentowany w rozkładzie wartości cech morfologicznych pszczół populacji regionalnych. Nasuwają się przypuszczenia, że jest to dowodem braku związków korelacyjnych pomiędzy cechami morfologicznymi pszczół a użytkowością rojów, przynajmniej w obrębie populacji regionalnych. Trudno przewidzieć, czy w toku dalszej pracy selekcyjnej sugestie te znajdą potwierdzenie. Obserwujemy bowiem zarysowującą się asymetrię w rozkładzie wartości cech selekcjonowanych rojów. Pod względem długości języczka i sumy szerokości III i IV tergitu przedział od +1 do +2 jest liczniej reprezentowany (14% rojów) niż przedział od —1 do —2 (9%). W indeksie kubitalnym większą frekwencję znajdujemy natomiast w odchyleniu na minus (21% i 6%). Taki układ sygnalizuje, że oddziaływanie selekcji może zmienić kierunek z zachowawczego na zmierzający do zmiany średnich wartości cech morfologicznych. Do tego zagadnienia powrócimy na dalszych stronach.
Na podstawie badań morfologicznych Bornus, Demianowicz i Gromisz (1966) wyodrębnili w populacji krajowej dwa zasadnicze typy pszczoły: typ I i typ II. Roje wewnątrz tych typów charakteryzują się dużym podobieństwem cech morfologicznych. W przeważającej części kraju pszczoły typu I i typu II występują obok siebie (z wyjątkiem regionów A, D, G) wraz z rojami uzupełniającymi je, które pod względem morfologicznym zbliżają się do I bądź II typu. Poszczególni hodowcy tego samego regionu mogą więc selekcjonować pszczoły zasadniczo się różniące fenotypowo. Średnie wartości cech morfologicznych pszczół głównych typów układają się następująco:
| typ I | typ II | |
|---|---|---|
| Suma szerokości III i IV tergitu | 4,90 mm | 4,73 mm |
| Długość języczka | 6,12 mm | 6,23 mm |
| Indeks kubitalny | 61,5 mm | 61,5 mm |
Wprawdzie pszczoły typu I i typu II mieszczą się w modelach populacji regionalnych, ale nie zostaje wtedy odzwierciedlona ilościowa struktura ich udziału w materiale selekcjonowanym. Wśród badanych rojów zarodowych częstotliwość występowania pszczoły typu I wynosi 0,69. Pozostałe roje (0,31) znajdują się poza modelem populacji tego typu. Średnie ich wskaźniki podobieństwa, obliczone na podstawie wartości trzech cech, przekraczają liczbę 3. Podobna ocena według modelu dla typu II przynosi, że 0,78 badanych rojów można zaliczyć do tego typu, a tylko 0,22 wykracza poza granice tego modelu. Porównanie tych wskaźników informuje, że znaczna część rojów może równolegle spełniać wymagania stawiane obu tym typom pszczoły. Częstotliwość występowania takich rojów wynosi 0,64, natomiast 0,19 rojów legitymuje się wyłącznie
strona 9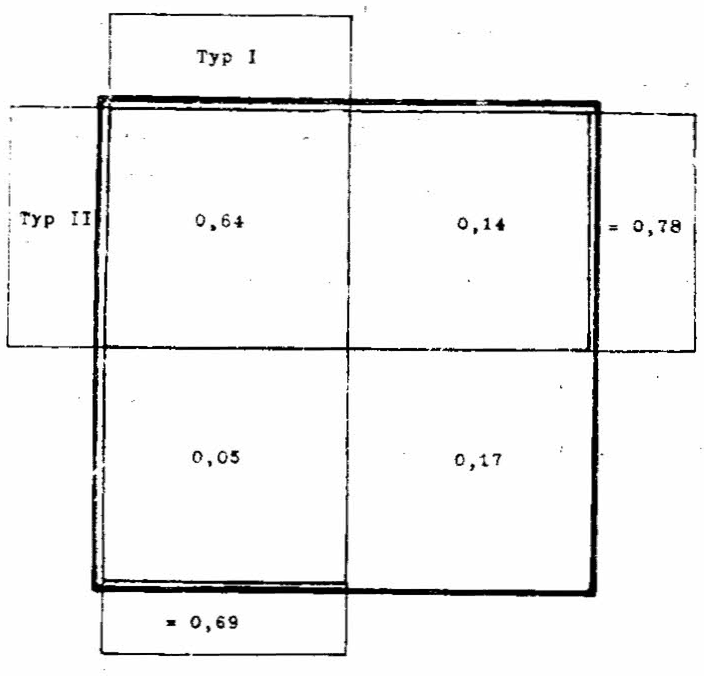
przynależnością do typu I bądź do typu II (ryc. 4). Poza obu typami znajduje się co szósta oceniana przez nas rodzina pszczela (0,17). Mogą być to pszczoły nie tylko obcych ras, ale i odpowiadające morfologicznie populacji regionalnej, której zakres zmienności jest szerszy niż grupy pszczół typu I lub II.
Roje, które spełniają równolegle warunki obu modeli, różnicują się wielkością podobieństwa w stosunku do każdego z nich. Niektóre są bardziej zbliżone do pszczoły typu II, inne natomiast odwrotnie: raczej odpowiadają typowi I niż II. Porządkując je na tej zasadzie otrzymujemy, że na łączną ich frekwencję 0,64 skłania się ku typowi I — 0,43, a ku typowi II — 0,21. Po takim umownym podziale frekwencja rojów typu I w ocenianym materiale zarodowym wynosi 0,48, a typu II — 0,35. W poszczególnych regionalnych populacjach oznaczanych od A do G (ryc. 1), proporcje tych wskaźników są następujące:
| A | B | C | D | E | F | G | |
|---|---|---|---|---|---|---|---|
| pszczoły typu I | 0,72 | 0,19 | 0,64 | 0,56 | 0,55 | 0,12 | 0,84 |
| pszczoły typu II | 0,28 | 0,53 | 0,22 | 0,39 | 0,45 | 0,37 | 0,16 |
| poza typem I i II | — | 0,28 | 0,14 | 0,05 | — | 0,51 | — |
W morfologicznym opracowaniu populacji pszczoły krajowej Bornus, Demianowicz i Gromisz (1966) zaliczyli 35% badanych rojów do pszczół typu I, niecałe 3% do typu II, a resztę sklasyfikowali jako grupy morfologicznie podobne i uzupełniające każdy z tych typów. W populacji krajowej frekwencja rojów typu I z grupą go uzupełniającą
strona 10wynosi 0,74, a podobnie obliczona dla typu II — 0,26. Od tej proporcji odbiega znacznie stosunek liczby ocenianych przez nas rojów zarodowych typu I do typu II (0,48 i 0,35). Zestawienie tych wskaźników sugeruje, że pszczelarze chętniej selekcjonują pszczołę typu II niż typu I. W rzeczywistości przewaga ta nie przejawia się na terenie kraju w jednakowym stopniu. Świadczy o tym porównanie w poszczególnych regionach naszych danych z materiałami opracowanymi przez Bornusa, Demianowicza i Gromisza (1966). Na podstawie tych materiałów udział pszczół obu typów przedstawia się następująco:
| A | B | C | D | E | F | G | |
|---|---|---|---|---|---|---|---|
| typ I + roje uzupełniające | 1,0 | 0,89 | 0,81 | 0,87 | 0,53 | 0,51 | 0,12 |
| typ Il + roje uzupełniające | — | 0,11 | 0,19 | 0,13 | 0,47 | 0,49 | 0,88 |
Jedynie na terenie regionów B, D i F jest wyraźnie widoczne preferowanie pszczoły typu II w porównaniu do wyjściowej struktury tamtejszych populacji. Na innych obszarach kraju nie obserwuje się tego, a w regionie G nawet daje się zauważyć pewien regres w stosunku do pszczoły typu II.
W populacji krajowej pszczoła typu II jest liczniej reprezentowana na południu Polski niż w jej części centralnej i północnej (Bornus, Demianowicz i Gromisz 1966). Wiąże się to częściowo z oddziaływaniem na tamtejszym terenie podgatunku Apis mellifica carnica, którego naturalny zasięg przekracza w rejonie Karpat granice naszego kraju. Pod względem morfologicznym do A.m. carnica jest bardziej zbliżona pszczoła typu II niż pszczoła typu I, którą zalicza się do A. m. mellifica. Poszukiwanie materiału selekcyjnego na południu regionów B i D oraz na terenie całego regionu F może w konsekwencji przynieść przewagę rojów zarodowych o wartości cech bliższych do przeciętnych dla pszczoły typu II niż dla pszczoły typu I. Chyba szczególnie jest to aktualne na terenie regionu B, gdzie Bieszczady były stosunkowo słabo napszczelone w okresie opracowywania populacji krajowej (1956—1958), a obecnie są nasiedlane głównie pszczołą typu II.
Tylko zaletami miejscowej pszczoły typu II nie można tłumaczyć sytuacji w wyborze rojów do reprodukcji na terenie regionu F. Rozległe tradycje hodowlane sprawiają, że wychów i reprodukcja matek są tam bardzo rozpowszechnione, szczególnie wśród pszczelarzy województwa katowickiego. Wielu z nich opiera jednak działalność reprodukcyjną swoich pasiek na materiale importowanym. Wśród badanych przez nas rojów zarodowych natrafiono na pszczoły, które odpowiadają wymaganiom stawianym dla A.m. carnica pod względem morfologicznym. Dla zilustrowania tego podajemy średnie wartości cech dla a) rojów w takich pasiekach (32 roje z 8 pasiek) oraz dla: b) populacji pszczoły miejscowej
strona 11regionu F (według Bornusa, Demianowicza i Gromisza 1966), c) pszczoły typu II, d) A.m. carnica z dorzecza Dunaju (Węgry).
| a | b | c | d | |
|---|---|---|---|---|
| Suma szerokości III i IV tergitu w mm | 4,72 | 4,82 | 4,73 | 4,70 |
| Długość języczka w mm | 6,47 | 6,26 | 6,23 | 6,48 |
| Indeks kubitalny | 48,7 | 54,4 | 61,5 | 45,7 |
W pracy selekcyjnej trzeba zdawać sobie sprawę, że A.m. carnica różni się zdecydowanie pod względem morfologicznym od naszej miejscowej krainki. Także nie odpowiada ona w pełni wzorcowi pszczoły, do którego dążymy. Pragniemy wprawdzie uzyskać pszczołę o długim języczku, ale zmierzamy także do powiększania rozmiarów jej ciała. Takiego połączenia cech brakuje u importowanej A.m. carnica. Z biologicznych cech pożądana jest zdolność dobrego wykorzystywania pożytku spadziowego i odporność na chorobę zarodnikowcową.
W pracy hodowlanej zmierzamy do utrwalenia w populacji korzystnych cech. Cel ten osiąga się przede wszystkim przez stosowanie w różnym stopniu kojarzenia krewniaczego. Zwiększa się wtedy także wyrównanie pogłowia, bo w populacji wzrasta udział tych samych genów w ogólnej ich puli. Poszczególne osobniki stają się do siebie coraz bardziej podobne. Stopień podobieństwa może więc być miarą wysiłków hodowlanych, lub przynajmniej informować o stosowanym sposobie doboru rodziców do kojarzenia.
Jako miarę podobieństwa przyjęto w naszych badaniach różnicę pomiędzy wartością danej cechy u porównywanych rojów. Wyrażenie tej różnicy przez wielokrotność standardowego odchylenia umożliwia przedstawienie odległości między rojami, jako sumy ich wskaźników podobieństwa pod względem poszczególnych cech. Im odległość ta jest większa, tym wzajemne podobieństwo rojów mniejsze.
W pasiekach zarodowych odległość pomiędzy rojami tego samego pokolenia wynosi przeciętnie 2,0. Średnia odległość w poszczególnych pokoleniach wewnątrz pasiek w 67% przypadków waha się w granicach od 1,3 do 2,4, a przedział od 0,7 do 3,0 mieści 90% przypadków. Pokolenia o bardzo małym wyrównaniu trafiają się rzadko (powyżej 3,0—4 pokolenia na 49 badanych w 18 pasiekach). W poszczególnych pasiekach odległości pomiędzy niektórymi rojami zarodowymi wewnątrz pokoleń znacznie przewyższają wartości średnie, nawet 3—4 krotnie. Większość tego rodzaju porównań (70%) wypada poniżej wskaźnika 2,4 (ryc. 5).
Nie mamy wyczerpujących wzorów z zakresu hodowli pszczół, aby oceniać dokładnie prace selekcyjne na podstawie stopnia wyrównania
strona 12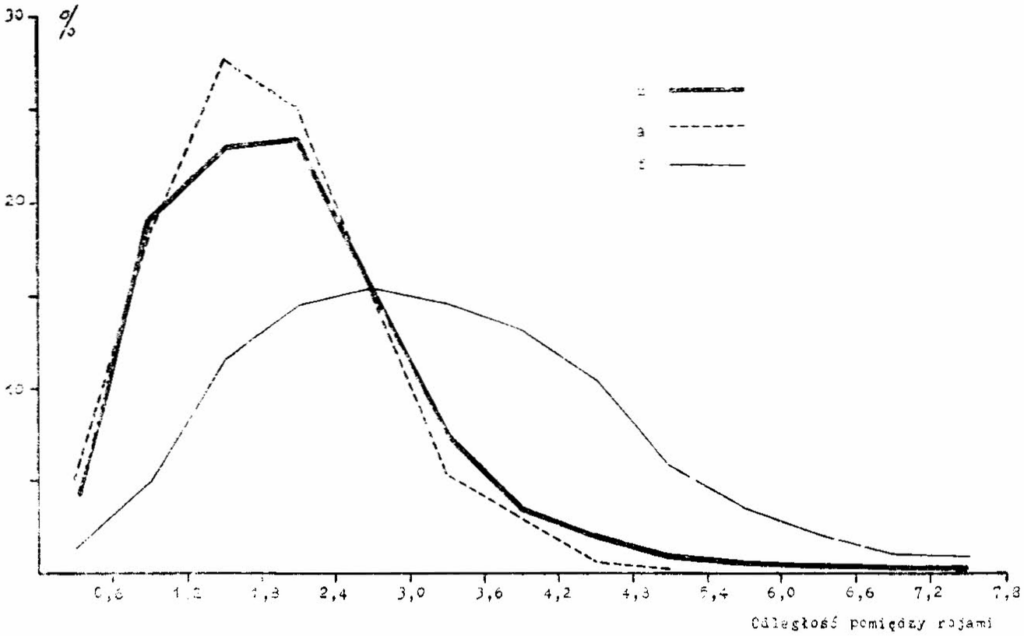
pogłowia pasieki zarodowej. Możemy natomiast wykorzystać wskaźniki obliczone dla populacji pszczół nieselekcjonowanych, gdzie kojarzenie rodziców odbywa się losowo. Do porównania wybrano populację nasiedlającą środkową część regionu A (47 rojów) i populację z regionu F (74 roje). Zajmują one krańcowe stanowiska pod względem wyrównania pogłowia (Gromisz 1967).
Średnia odległość pomiędzy rojami populacji A wynosi 1,9 natomiast populacji F — 3,1. W skład tych populacji wchodzą roje z różnych pasiek. Gdy obliczymy odległości pomiędzy rojami dla poszczególnych pasiek, z sumy ich otrzymamy wtedy średnie wartości dla pasieki w regionie A — 1,5 i w regionie F — 1,8. W porównaniu do tych danych przeciętne wyrównanie pogłowia pasieki zarodowej przedstawia się nie najlepiej. Jeżeli przyjmiemy je za 100, otrzymamy wówczas dla populacji A i F wskaźniki następujące:
| A | F | |
|---|---|---|
| wewnątrz populacji | 95 | 155 |
| wewnątrz pasiek | 75 | 90 |
Pogłowie pasiek zarodowych jest zatem bardziej zróżnicowane niż w pasiekach nie prowadzących selekcji pszczół. Ustępuje ono też pod tym względem populacji A, dzięki liczniejszemu udziałowi większych odległości (3,0) pomiędzy rojami zarodowymi (ryc. 5).
strona 13Praca hodowlana naszych pasiek nie prowadzi do wzrostu wyrównania selekcjonowanego pogłowia pszczół w porównaniu do tego, jakie może występować w populacji rozmnażającej się losowo, przynajmniej w zakresie doboru. Nasuwają się przypuszczenia, że 1) stopień pokrewieństwa pomiędzy rojami (matkami) zarodowymi nie jest większy niż w populacji rozmnażającej się losowo; 2) do kojarzenia dobiera się rodziców bardzo różniących się fenotypowo; 3) kojarzenia rodziców są niedostatecznie kontrolowane, między innymi na skutek niewystarczającej liczby trutni na trutowisku; 4) występuje mała odziedziczalność cech (badanych).
Działanie i współdziałanie tych czynników może wpływać między innymi na kształtowanie się podobieństwa fenotypowego rojów w pasiekach. Na podstawie zebranego przez nas materiału niewiele możemy powiedzieć o zakresie udziału każdego z nich. Zresztą każda pasieka zarodowa pracuje w innych specyficznych dla siebie warunkach i ma odrębne osiągnięcia, nie można więc tutaj zagadnienia generalizować. O wyborze rojów na zarodowe rozstrzyga jednak produkcja miodu, którą z kolei można tłumaczyć większą heterogenetycznością osobników w porównaniu do występującej w przeciętnych pasiekach nieselekcyjnych, znajdujących się poza zasięgiem migracji pszczół. Sugerują to nasze porównania. Dążenie hodowców do podnoszenia poziomu wydajności sprzyja utrzymaniu heterozygotyczności w materiale zarodowym. Zachodzi obawa, że na pewnym etapie pasieki zarodowe mogą przekazywać do reprodukcji świetny materiał użytkowy, ale o niewielkiej wartości hodowlanej.
Według naszego materiału pasieki zarodowe wskaźnikami hodowlanymi nie przekraczają pułapu, wyznaczonego przez losowo rozmnażającą się populację. Poziom ich produkcji jest zatem możliwy do uzyskania także w pasiekach użytkowych bez wprowadzania materiału hodowlanego z zewnątrz. Stała selekcja rojów w takich pasiekach może zapewnić i utrwalić osiągnięcia produkcyjne nie mniejsze niż realizuje wiele pasiek zarodowych, korzystających z trutowiska. Współdziałanie w tym zakresie sąsiadujących ze sobą pasiek pomoże zwiększyć efekt ich zabiegów selekcyjnych.
W praktyce hodowcy zwracają większą uwagę na stopień wyrównania pogłowia wewnątrz rojów niż między rojami w pasiece. Informują się oni bowiem na tej podstawie o „czystości” kojarzenia. Z niepokojem sprawdzają zatem na oficjalnych drukach oceny morfologicznej, czy aby wskaźniki zmienności ich rojów zarodowych nie osiągają zbyt dużych wartości.
Wskaźniki zmienności cech morfologicznych 352 badanych rojów są bardzo zróżnicowane: dla sumy szerokości III i IV tergitu od 0,6 do 5,6, dla długości języczka od 0,8 do 4,3, dla indeksu kubitalnego od 2,8 do 19,8. Uporządkowanie ich w szeregach statystycznych daje jednak roz-
strona 14Tabela 2 Rozkład wskaźników zmienności (V) sumy szerokości III i IV tergitu odwłokowego dla rojów (populacja krajowa wg Bornusa, Demianowicza i Gromisza 1966) Distribution of variation coefficient of sum width of the III and IV tergites of abdomen in colonies (local population according to Bornus, Demianowicz and Gromisz 1966)
| Wyszczególnienie / Specification | Liczba rojów / Number of colonies | -1,6 | -2,2 | -2,8 | -3,4 | -4,0 | -4,6 | -5,2 | -5,8 | -6,4 | -7,0 |
|---|---|---|---|---|---|---|---|---|---|---|---|
| Populacja krajowa / Local population | 389 | 9 | 114 | 90 | 59 | 25 | 31 | 27 | 22 | 10 | 2 |
| Pasieki zarodowe / Breeders apiaries | 352 | 46 | 209 | 73 | 15 | 5 | 2 | — | 2 | — | — |
kład zbliżony do rozkładu jaki uzyskali Bornus, Demianowicz i Gromisz (1966) dla populacji pszczół krajowych (tab. 2, 3, 4). Zakres zmienności poszczególnych cech przeważającej części rojów w pasiekach zarodowych (a) i w populacji pszczół krajowych (b) układa się następująco:
| a | b | |
|---|---|---|
| szerokość III i IV tergitu poniżej V = 2,2 | 72% rojów | 32% rojów |
| długość języczka poniżej V = 2,0 | 76% rojów | 76% rojów |
| indeks kubitalny poniżej V = 13,0 | 75% rojów | 58% rojów |
Tabela 3 Rozkład wskaźników zmienności (V) długości języczka dla rojów (populacja krajowa wg Bornusa, Demianowicza i Gromisza 1966) Distribution of variation coefficient of length of tongue in colonies (local population according to Bornus, Demianowicz and Gromisz 1966)
| Wyszczególnienie / Specification | Liczba rojów / Number of colonies | -1,0 | -1,5 | -2,0 | -2,5 | -3,0 | -3,5 | -4,0 | -4,5 | -5,0 | 5,5 |
|---|---|---|---|---|---|---|---|---|---|---|---|
| Populacja krajowa / Local population | 389 | 38 | 165 | 91 | 49 | 20 | 13 | 8 | 2 | 1 | 2 |
| Pasieki zarodowe / Breeders apiaries | 352 | 11 | 84 | 172 | 60 | 15 | 5 | 4 | 1 | — | — |
Hodowcy osiągnęli zwiększenie wyrównania pogłowia rojów zarodowych pod względem szerokości III i IV tergitu oraz wartości indeksu kubitalnego. Natomiast w stosunku do zmienności długości języczka nie
strona 15można tego powiedzieć. Możliwe więc jest, że do reprodukcji dobiera się materiał stosunkowo silniej zróżnicowany w długości języczka niż w wartości innych cech morfologicznych. W ogólnym zestawieniu otrzymujemy jednak, że wskaźniki zmienności cech morfologicznych wewnątrz rojów zarodowych kształtują się przeciętnie na tym samym poziomie co i w nieselekcjonowanej populacji pszczół. Zbieżność ta sugeruje brak zasadniczych różnic w stopniu pokrewieństwa w obrębie osobników kojarzonych losowo i kojarzonych na trutowisku. W miarę wzrastania pokrewieństwa wartości wskaźników zmienności maleją.
Praca hodowlano-selekcyjna zwykle prowadzi do spotęgowania różnic pomiędzy populacjami poszczególnych pasiek zarodowych. Odrębność morfologiczna niektórych populacji regionalnych znacznie ułatwia ten proces w skali krajowej. Niekiedy więc różnice pomiędzy liniami hodowlanymi (pasiekami zarodowymi) nie nasuwają wątpliwości, bo już występują w materiale wyjściowym. Dla zilustrowania tego przykładem podajemy średnie wartości cech rojów zarodowych z wybranych pasiek po jednej w regionie A (1969, 6 rojów) i w regionie F (1969, 4 roje):
| A | F | |
|---|---|---|
| szerokość III i IV tergitu w mm | 4,92 | 4,80 |
| długość języczka w mm | 6,12 | 6,58 |
| indeks kubitalny | 63,0 | 49,3 |
Reprezentowane są tutaj, przez te pasieki zarodowe, pszczoły z zasięgów geograficznych dwóch podgatunków: Apis mellifica mellifica i Apis mellifica carnica. Ich odrębność morfologiczna świetnie się zaznacza w materiale tam selekcjonowanym. Lecz na terenie każdego z tych zasięgów, a przede wszystkim należącego do A.m. mellifica (regiony A, B, C, D, E, G) różnice pomiędzy liniami hodowlanymi nie mogą być wielkie, jeżeli jest rzeczywiście selekcjonowana pszczoła miejscowa. Nie mniej jednak można i tu osiągnąć odrębność morfologiczną poszczególnych linii hodowlanych. Do takiego stwierdzenia upoważnia nas charakterystyka pogłowia wybranej pasieki zarodowej z regionu D i pasieki z regionu G, gdzie w roku 1970 badano po 20 rojów.
Wszystkie różnice wartości trzech cech morfologicznych pomiędzy pogłowiem tych pasiek są wysoce istotne. Średnia wartość poszczególnych cech pszczół populacji tego samego pokolenia matek, wyhodowanych przez te pasieki, mieści się w przedziałach następujących (prawdopodobieństwo pomyłki 1%):
| D | G | |
|---|---|---|
| szerokość III i IV tergitu w mm | 4,8[?] < × < 5,00 | 4,80 < × < 4,88 |
| długość języczka w mm | 6,20 < × < 6,30 | 6,10 < × < 6,18 |
| indeks kubitalny | 55,3 < × < 59,5 | 60,9 < × < 67,3 |
Tabela 4 Rozkład wskaźników zmienności (V) indeksu kubitalnego dla rojów (populacja krajowa wg Bornusa, Demianowicza i Gromisza 1966) Distribution of variation coefficient of cubital index in colonies (local population according to Bornus, Demianowicz and Gromisz 1966)
| Wyszczególnienie / Specification | Liczba rojów / Number of colonies | 3,0 -5,0 | -7,0 | -9,0 | -11,0 | -13,0 | -15,0 | -17,0 | -19,0 | -21,0 | -23,0 | -25,0 |
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Populacja krajowa / Local population | 389 | 1 | 9 | 16 | 81 | 120 | 93 | 44 | 18 | 5 | — | 2 |
| Pasieki zarodowe / Breeders apiaries | 352 | 3 | 10 | 38 | 103 | 111 | 50 | 27 | 9 | 1 | — | — |
Podobne wyniki można uzyskać, porównując pod względem morfologicznym i inne linie hodowlane. Małe różnice pomiędzy nimi nie mogą jednak wystarczać, aby mówić o ich odrębności morfologicznej pod względem genetycznym. W niektórych pasiekach stwierdzono także statystycznie istotność różnic, zestawiając poszczególne pokolenia selekcjonowanej pszczoły. Nie znamy schematów doboru rodziców w takich pasiekach, aby na podstawie rodowodów prześledzić dziedziczenie cech. Brakuje także dostatecznej liczby badanych tam rojów, żeby można było przeprowadzić wiarogodną analizę. Poprzestajemy zatem tylko na zasygnalizowaniu tego zjawiska bez dociekania jego przyczyn.
Zmiany wartości cech morfologicznych z pokolenia na pokolenie przejawia pewien kierunek. Na przykład roje zarodowe na terenie regionu F, oceniane w pierwszych i ostatnich 3 latach okresu 1962—1970, przeciętnie różnią się sumą szerokości III i IV tergitu o —0,14 mm, długością języczka o +0,19 mm oraz wartością indeksu kubitalnego o —4,2. Zmniejsza się zatem wielkość ciała u selekcjonowanych tam pszczół, wzrasta długość ich języczka i maleje wartość indeksu kubitalnego.
Podobne zmiany co do kierunku obserwuje się i w pozostałych regionach, różne są tylko wyjściowe wartości cech, bo odpowiadają one dla A.m. mellifica. Kształtowanie się tych zmian ilustrują dobrze średnie wartości cech, obliczane co rocznie w miarę narastania liczby badanych rojów od 1962 do 1970 roku. Na rycinie 6 przedstawiono różnice między nimi w procentach, przyjmując wartości średnie z 1962 roku za 100. Wartości średnie obliczane w 1970 roku, ostatnie w tym szeregu, są średnimi z wszystkich badanych rojów w latach 1962—1970.
Pszczoły oferowane obecnie do reprodukcji przez pasieki zarodowe są przeciętnie mniejsze i o dłuższym języczku niż przed laty. Wartość indeksu kubitalnego nie uległa natomiast zasadniczej zmianie.
strona 17Narastanie różnic obserwuje się w materiale selekcjonowanym przez kilka pokoleń, ale nie osiągają one tam rozmiarów sugerowanych przez nasze zestawienie. W pięciu pasiekach zarodowych na terenie zasięgu A.m. mellifica wartość cech w czterech kolejnych pokoleniach (od I do IV) kształtowała się następująco:
| I | II | III | IV | |
|---|---|---|---|---|
| szerokość III i IV tergitu w mm | 4,93 | 4,84 | 4,86 | 4,86 |
| długość języczka w mm | 6,17 | 6,12 | 6,12 | 6,20 |
| indeks kubitalny | 61,3 | 60,7 | 59,1 | 58,7 |
A na terenie zasięgu A.m. carnica (region F, 3 pasieki):
| I | II | III | IV | |
|---|---|---|---|---|
| szerokość III i IV tergitu w mm | 4,86 | 4,72 | 4,84 | 4,75 |
| długość języczka w mm | 6,27 | 6,35 | 6,44 | 6,42 |
| indeks kubitalny | 52,1 | 53,2 | 54,0 | 51,5 |
W zasadzie tendencje kierunkowe się zarysowują, ale poza długością języczka w pasiekach zarodowych regionu F, zróżnicowanie między pokoleniami jest stosunkowo mniejsze niż otrzymano przy ocenie wszystkiego materiału zarodowego według lat. Na kształtowanie się wartości cech w ostatnich latach wpływa głównie materiał wprowadzony do selekcji przede wszystkim przez pasieki ubiegające się o licencję. Pod względem morfologicznym materiał ten różni się zdecydowanie od tego, jakim dysponowała hodowla zarodowa na początku lat sześćdziesiątych. Wątpliwe czy jest to następstwem już dokonanych i utrwalonych zmian w strukturze morfologicznej populacji pszczoły krajowej. A zatem chyba nie wszystek materiał zarodowy reprezentuje wiernie cechy współczesnej populacji pszczół miejscowych, i przypuszczalnie często przekracza ramy jej zmienności morfologicznej. Krańcowe odchylenia od przeciętnych dla populacji są jednak w toku reprodukcji szybko łagodzone. Świadczy o tym między innymi rozkład wskaźników podobieństwa, przedstawiony na rycinie 2. Informuje on o braku widocznego wpływu wprowadzonych do hodowli pszczół „małych”. Wskaźniki podobieństwa pod względem szerokości III i IV tergitu większości rojów odchylają się na plus od średniej modelu populacji.
Stopniowy wzrost długości języczka u pszczół zarodowych odpowiada zamierzeniom hodowlanym, ale zmniejszanie się rozmiarów ciała pszczoły następuje wbrew intencjom zalecanego kierunku selekcji. W ocenie wartości hodowlanej matek preferuje się bowiem pszczoły większe i o dłuższym języczku. Stosuje się skalę punktacji: 0,2,4 dla każdej z ocenianych 3 cech morfologicznych. W sumie za cechy morfologiczne rój może otrzymać najwięcej 12 punktów to znaczy 12% udziału maksymalnej
strona 18wartości indeksu selekcyjnego. Dla pszczół typu I (A.m. mellifica) i typu II (pszczoła zbliżona do A.m. carnica) punktuje się inne zakresy wartości cech.
Ocena punktowa poszczególnych pokoleń pszczół selekcjonowanych może informować o osiągnięciach hodowlanych pasiek zarodowych. W naszych badaniach przeważnie drugie pokolenie selekcjonowanej pszczoły otrzymuje mniej punktów w porównaniu do materiału wyjściowego. Następnym pokoleniom przybywa na ogół punktów i to nieraz bardzo dużo. Jeżeli przyjmiemy średnią liczbę punktów I pokolenia za 100, to następne pokolenia, od I do V otrzymają wskaźniki następujące:
| I | II | III | IV | V | |
|---|---|---|---|---|---|
| zasięg A.m. mellifica | 100 | 98 | 116 | 109 | 150 |
| zasięg A.m. carnica | 100 | 97 | 140 | 148 | 160 |
Zwracamy uwagę, że w naszych obliczeniach w miarę wzrostu numeru pokolenia, wchodzi coraz to mniej pasiek do obliczenia wskaźników. W pasiekach, w których selekcjonowano pszczołę do IV—V pokolenia matek, nie obserwujemy w zasadzie zbyt dużego różnicowania się wartości punktacyjnej.
Obniżenie wartości punktacyjnej dla drugiego pokolenia w regionie F (25% pasiek) zachodzi głównie w zakresie sumy szerokości III i IV tergitu, a w pozostałych regionach — długości języczka. W pierwszym przypadku oceniane pszczoły były za małe, aby mogły otrzymać maksymalną liczbę punktów, w drugim natomiast miały za długie języczki. Punktowany zakres zmienności długości języczka pszczoły typu I (A.m. mellifica) jest ograniczony pułapem, po przekroczeniu której rój otrzymuje 0 punktów. Przynależność takiego roju do A.m. mellifica jest wątpliwa. Pod względem morfologicznym odpowiada on pszczole typu II, jaka występuje w przeważającej części na południu, ale nie jest obca i w innych częściach kraju.
W intensyfikacji produkcji pasiecznej ciężar polityki hodowlanej przesuwa się ostatnimi czasy z masowego oddziaływania w zakresie poprawy pogłowia pszczół na wykorzystanie mieszańców użytkowych. Na początku brane są pod uwagę krzyżówki międzyrasowe. W takiej sytuacji szczególnie wzrasta waga oznaczeń morfologicznych pszczół, jako wskaźników informujących o utrzymaniu wytyczonego kierunku w pracach hodowlanych. Cechy morfologiczne stają się przeto bardziej przydatne do oznaczania typu pszczoły, niż jako obiekt selekcji. Pożądany jest zatem inny sposób wykorzystania oceny morfologicznej materiału zarodowego niż w dotychczas stosowanym systemie punktacyjnym. Opracowania morfologiczne mogą być poszerzone na przykład o obliczanie zmienności cech wewnątrz pasiek, a nie tylko i wewnątrz rojów, co może znacznie powiększyć zakres informacji o materiale zarodowym i skuteczności
strona 19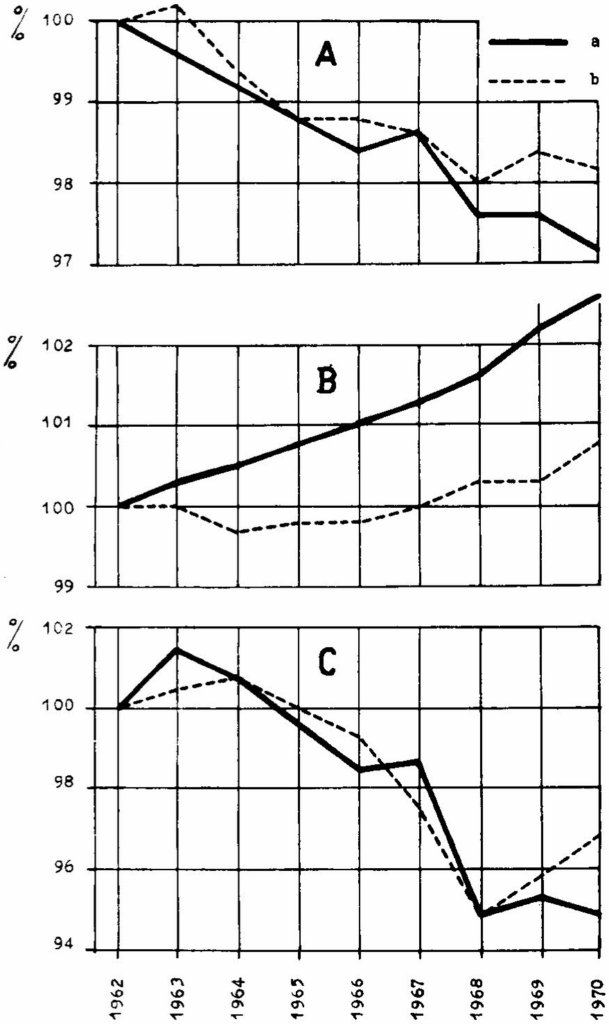
pracy selekcyjnej. Obowiązkowe badania morfologiczne powinny się jednak ograniczać do niezbędnego minimum. Uważamy, że je stanowi liczba obecnie oznaczanych cech.
Wprowadzenie na teren kraju hodowli zarodowej pszczół ras obcych stawia nieco w innym świetle rejonizację opartą na naturalnych zasięgach podgatunków pszczół. Nasuwa się pytanie czy utrzymywanie jej jest celowe. Pamiętajmy, że strefy hodowlane ograniczały tylko terytorialny zasięg poszukiwania materiału wyjściowego do selekcji przez pasieki zarodowe, ale niczym nie krępowały rozprowadzania matek selekcyjnych. Pod tym względem nie zachodzą żadne zmiany. Do produkcji mieszańców użytkowych stale będzie potrzebna sprawdzona, dobra pszczoła miejscowa. Należy przypuszczać, że w miarę upływu lat będą wzrastały trudności z wyselekcjonowaniem takiej pszczoły, odpowiedniej do krzyżowania z pszczołą obcych ras. Ze wzrostem zmieszańcowania populacji krajowej zwiększą się nakłady na pracę selekcyjną. Przypuszczamy, że w rejonach, gdzie krzyżówki z rasami obcymi nie wypadają zbyt atrakcyjnie ze względu na specyficzny układ pożytków, opłaci się otoczyć opieką i chronić przed zbastardowaniem pszczołę miejscową.
WNIOSKI
Na podstawie wyników badania morfologicznego pszczół pasiek zarodowych w latach 1962—1970 można sformułować następujące wnioski ogólne:
- Badania morfologiczne należy wykorzystywać głównie do oznaczania typu (rasy) pszczoły i zakresu zmienności w rojach i w populacji selekcjonowanej, jako sprawdzianu kontynuowanego rodzaju doboru. Trzeba zatem w pasiekach zarodowych zwiększyć liczbę badanych rojów i dobierać je losowo.
- W selekcjonowaniu pszczoły kaukaskiej oraz miejscowej przeznaczonej do krzyżowania z pszczołami o długich języczkach, można w indeksie selekcyjnym silniej zaakcentować długości języczków, pomijając inne cechy morfologiczne.
- Trzeba zmierzać do zwiększenia w kojarzeniach na trutowisku udziału selekcjonowanych trutni przez zwiększenie ich liczby w pniach wychowujących i poszerzanie pasa izolacji wokół trutowiska. Należy stosować także na szerszą skalę w pasiekach zarodowych sztuczne unasienianie matek.
- Należałoby rozpocząć propagowanie prac selekcyjnych przez pasieki amatorskie na ich własny użytek. Mają one realne szanse uzyskania poprawy pogłowia pszczół bez wprowadzania materiału z zewnątrz.
- Na obszarach niezbyt atrakcyjnych pod względem układu pożytków dla mieszańców międzyrasowych, zachodzi potrzeba otoczenia opieką
i chronienia pszczoły krajowej, przed nieprzemyślanym krzyżowaniem z obcymi rasami. Takie miejscowe populacje pszczół będą w przyszłości dostarczać materiału do selekcji.
LITERATURA
Bährmann R. (1967) — Die Bedeutung des Flügelgeäders der Honigbienen (Apis mellifica carnica) für die Linienzucht. Information. 2(2): 79—85.
Bährmann R., Gromisz M. u. Veselý V. (1966) — Merkmalsbeurteilung bei der Zuchtauslese der Honigbiene, Archiv f. Gefl. u. Kleintierk., 15(1): 41—57.
Bornus L. (1964) — Jednolity system hodowli zarodowej pszczół, Warszawa. PZP i CSO.
Bornus L., Demianowicz A., Gromisz M. (1966) — Morfometryczne badania krajowej pszczoły miodnej (Apis mellifica L.), Pszczeln. Zesz. Nauk., 10(1—4): 1—46.
Bornus L., Gromisz M. (1969) — Matematyczne modele populacji pszczół różnych ras. Pszczeln. Zesz. Nauk., 13(1—3): 73—83.
Bornus L., Gromisz M. i Veliczkov V. (1967) — Ocena linii zarodowych pszczół w Polsce metodą taksonomii wrocławskiej. Pszczeln. Zesz. Nauk., 11(1—3): 51—60.
Bornus L. i Mackiewicz D. (1966) — Morfologiczna ocena linii zarodowych pszczoły krajowej na podstawie pięcioletnich badań. Pszczeln. Zesz. Nauk., 10(1—4): 57—72.
Demianowicz A. (1951) — Pszczelarstwo. Warszawa PWRiL.
Gromisz M. (1967) — Porównanie pszczoły Podkarpacia z pszczołami północnej Polski (Apis mellifica mellifica L.) i dorzecza Dunaju (Apis mellifica carnica Pollm.) Pszczeln. Zesz. Nauk., 11(1—3): 1—36.
Gromisz M. i Bornus L. (1971) — Morfologiczno-matematyczne modele populacji pszczoły krajowej. Pszczeln. Zesz. Nauk., 15(1—2): 1—14.
Ruttner F. (1967) — Die Zuchtauslese bei der Biene. Ehrenwirth Verlag. München.
Tomšik B., Škrobal D., Veselý V. (1962) — Individuálni výběr v chovu vcel a jeho perspektivy. Sbornik Vysoké Školy zemědělské v Brně. (1): 77—88.
Veselý V. (1968) — Orientačni křiženi kmenů cestou oplozovacich stanic a zhodnoceni dalšiho postupu při křiženi za použiti inseminačni techniky. Vědecke práce výzkumného ústavu Včelařského v Dole, 141—173.
МОРФОЛОГИЧЕСКАЯ ОЦЕНКА ПЧЕЛ НА ПЛЕМЕННЫХ ПАСЕКАХ В 1962—1970 ГГ.
М. Громиш
Резюме
В периоде 1962—1970 испитано 352 племенных семии на 50 пасеках, измерая у пчел работниц наследийющие признаки: сумму ширины III и IV брюшных терпитов (показатель величины пчелы), длину хоботка и кубительный индекс.
Определено, что 10% опытных семей предступают (на фоне этих признаков) домашную популяцию пчелы. Зато 22% семей не находиться в моделях региональных популяции пчел, в которых делают племенные пасеки.
strona 22Морфологическая дифференциация племенного материяла на пасеках сравнительно высока. Еслибы принять этое положение на 100%, так для популяции семей неплеменных северно-восточней Польши получим показатель 95%, а для популяции с юга Польши 155% (найхуже стандарызована популяция в стране).
Выравнивание во всех племенных семях, измеране показателем изменчивости (V) стоит как видно:
| Ширина III и IV брюшного тергита | — 97% семей ниже | V = 3,4% |
| Длина хоботка | — 93% „ „ | V = 2,5% |
| Кубитальный индекс | — 83% „ „ | V = 1,5% |
Для таких самых показатели процент в домашней популяции неплеменной стоит соотвиетственно 70%, 88% и 82%.
В племенной работе 1962—1970 рысуется в материяле увеличение длины хоботка, уменшение суммы ширины III и IV брюшных терпитов и уменьшение показателя кубитальнего индекса.
MORPHOLOGICAL EVALUATION OF BEES IN BREEDING APIARIES IN THE YEARS OF 1962—1970
Michał Gromisz
Summary
In the years of 1962—1970 there were investigated 352 breeding colonies in 50 apiaries in which described following features of workers: sum of width of III and IV tergites of abdomen (factor of bee size), length of tongue and value of cubital index. It was stated, that 10% of investigated colonies there are behind country population as far as mentioned features are concerned. Furthermore 22% of colonies did not fit to model of bee population in regions where those breeding apiaries perform selection work. Morphological differentiation of breeding material in breeding apiaries is quite large. If one accept this condition for 100%, at that time for population of colonies in northeastern part of Poland indicator equals 95%, and for population from southern Poland — 155% (the least even population of bees in Poland). Differences between workers inside colonies measured by variation coefficient (V) is following: sum of width of III and IV tergites of abdomen 97% colonies below V = 3,4%, length of tongue — 93 colonies below V = 2,5%. Value of cubital index — 89% colonies below V = 1,5%.
For the same values of features the percent of colonies in country population (investigated 389 colonies) equals respectively 70%, 88% and 82%. During the selection work with breeding materials (years of 1962—1970) it has been observed the increase length of tongue, decrease the sum of III and IV tergites of abdomen as well as value of cubital index.
Errata — błędy druku znalezione podczas digitalizacji
- s. 1: „Vesely — 1962″ → Veselý — 1962
- s. 7, podpis ryc. 3: „suma szerokość III i IV tergitu” → suma szerokości III i IV tergitu
- s. 10, tabela: „typ Il” → typ II
- s. 12, podpis ryc. 5: „Similary” → Similarity
- s. 12, podpis ryc. 5: „colonies express in percent” → colonies expressed in percent
- s. 15: „Nie mniej jednak” → Niemniej jednak
- s. 16: „przejawia pewien kierunek” → przejawiają pewien kierunek
- s. 16: „co rocznie” → corocznie
- s. 19, podpis ryc. 6: „tdding” → adding
- s. 19, podpis ryc. 6: „comparision” → comparison
- s. 19, podpis ryc. 6: „cibutal” → cubital
- s. 19, podpis ryc. 6 (2×): „occupated” → occupied
- s. 21, bibliografia: „vcel” → včel
- s. 21, streszczenie rosyjskie: „испитано” → испытано
- s. 21, streszczenie rosyjskie: „семии” → семей
- s. 21, streszczenie rosyjskie: „измерая” → измеряя
- s. 21, streszczenie rosyjskie: „наследийющие” → следующие
- s. 21–22, streszczenie rosyjskie (2×): „терпитов” → тергитов
- s. 21, streszczenie rosyjskie: „кубительный” → кубитальный
- s. 21, streszczenie rosyjskie: „домашную” → домашнюю
- s. 21, streszczenie rosyjskie: „не находиться” → не находятся
- s. 21, streszczenie rosyjskie: „региональных популяции пчел” → региональных популяций пчел
- s. 22, streszczenie rosyjskie: „материяла” → материала
- s. 22, streszczenie rosyjskie: „Еслибы” → Если бы
- s. 22, streszczenie rosyjskie: „этое положение” → это положение
- s. 22, streszczenie rosyjskie: „северно-восточней” → северо-восточной
- s. 22, streszczenie rosyjskie: „найхуже” → наихуже
- s. 22, streszczenie rosyjskie: „— 83%” → — 89%
- s. 22, streszczenie rosyjskie i angielskie (2×): „V = 1,5%” → V = 15,0%
- s. 22, streszczenie rosyjskie: „соотвиетственно” → соответственно
- s. 22, streszczenie rosyjskie: „рысуется” → рисуется
- s. 22, streszczenie rosyjskie: „материяле” → материале
- s. 22, streszczenie rosyjskie: „уменшение” → уменьшение
- s. 22, streszczenie rosyjskie: „кубитальнего” → кубитального
- s. 22, streszczenie angielskie: „93 colonies” → 93% colonies