

CHARAKTERYSTYKA MORFOLOGICZNA PSZCZÓŁ LINII SELEKCJONOWANYCH W POLSCE
tekst: Michał Gromisz, Leonard Cieśla
Pszczelnicze Zeszyty Naukowe, Rok XVII, 1973 — Michał Gromisz, Leonard Cieśla
strona 17PSZCZELNICZE ZESZYTY NAUKOWE ROK XVII GRUDZIEŃ 1973
Michał Gromisz i Leonard Cieśla
Oddział Pszczelnictwa IS
WPROWADZENIE
Do ogólnej oceny materiału zarodowego w hodowli pszczół wchodzą także i cechy morfologiczne. Są one wykorzystywane przede wszystkim do określania standardu morfologicznego pszczoły. Na podstawie badań morfologicznych można najłatwiej sprawdzać przynależność rasową pszczół, a także stopień wyrównania pogłowia pasieki zarodowej (linii).
Od początku lat sześćdziesiątych osiągnięto u nas bardzo wiele w zakresie oceny morfologicznej pszczół. Dokonano wyboru najodpowiedniejszych cech morfologicznych do tego celu oraz opracowano nowe metody oceny i charakteryzowania materiału zarodowego (Bornus 1964, Bornus i Gromisz 1969, Gromisz 1967, 1971, 1972, Gromisz i Bornus 1971, 1972). Obecnie ocenę opiera się na pomiarach 3 cech morfologicznych: szerokości IV tergitu odwłokowego, długości języczka i indeksu kubitalnego.
Co roku są przeprowadzane badania morfologiczne w części krajowych pasiek zarodowych. Wyniki badań Oddział Pszczelnictwa IS przekazuje bezpośrednio do praktyki. Natomiast kompleksowe opracowania wyników, analiza i ocena pracy hodowców są publikowane okresowo, w miarę gromadzenia się materiału (Bornus i Mackiewicz 1966, Bornus, Gromisz i Veliczkov 1967). Obecnie pragniemy przedstawić kolejne opracowanie, przede wszystkim w zakresie charakterystyki morfologicznej pszczół z aktualnie selekcjonowanych linii.
MATERIAŁ I METODA
Materiał do badań zebrano w latach 1967—1971, z 19 pasiek zarodowych na terenie kraju, w ramach oceny morfologicznej selekcjonowanych pszczół. Pasieki oznaczono symbolami od A do S (tab. 1). Ogółem zgroma-
strona 18Tabela 1 Wykaz pasiek objętych badaniami morfologicznymi List of breeding apiaries
| Lp. | Hodowca, województwa / Owner of apiary | Symbol pasieki / Letter noation of apiary | Liczba badanych rojów / Number of investigated colonies | Rok badania / Year of investigation |
|---|---|---|---|---|
| 1 | Swat Stanisław, Koszalin | A | 3 | 1970 |
| 2 | Przybylski Zygmunt, Gdańsk | B | 1 | 1971 |
| 3 | ZZD Siejnik, Białystok | C | 20 | 1970 |
| 4 | Grunt Wacław, Bydgoszcz | D | 7 | 1970 |
| 5 | RRZD Barzkowice, Szczecin | E | 7 | 1971 |
| 6 | RRZD Szepietowo, Białystok | F | 9 | 1971 |
| 7 | RRZD Sielinko, Poznań | G | 7 | 1970 |
| 8 | Hetman Marian, Warszawa | H | 6 | 1970 |
| 9 | Wiatr Jan, Poznań | I | 3 | 1969 |
| 10 | Bortnik Władysław, Zielona Góra | J | 4 | 1969 |
| 11 | Słonecki Jerzy, Wrocław | K | 5 | 1968 |
| 12 | RRZD Końskowola, Lublin | L | 3 | 1971 |
| 13 | Stasiński Aleksander, Łódź | Ł | 4 | 1967 |
| 14 | Kumko Weronika, Wrocław | M | 20 | 1970 |
| 15 | Brandys Alojzy, Opole | N | 3 | 1968 |
| 16 | Gwóźdź A. i Etgens S., Katowice | O | 8 | 1971 |
| 17 | Paluch Jan, Katowice | P | 7 | 1971 |
| 18 | Kubeczek Józef, Katowice | R | 20 | 1971 |
| 19 | Żołna Jan, Rzeszów | S | 12 | 1970 |
dzono próbki pszczół robotnic ze 149 rojów. Laboratoryjnego przygotowania materiału i pomiarów biometrycznych dokonano według metodyki przyjętej w Oddziale Pszczelnictwa IS dla tego rodzaju badań (Bornus, Demianowicz, Gromisz — 1966). Oznaczano szerokość IV tergitu odwłokowego, długość języczka i wartość indeksu kubitalnego u 30 robotnic w każdej próbce pszczół. Następnie obliczano średnie arytmetyczne i wskaźniki zmienności (V) badanych cech dla poszczególnych rojów.
Dla każdej pasieki oznaczono przedziały, w których należy szukać rzeczywistej wartości średniej arytmetycznej dla każdej z 3 cech morfologicznych badanego pokolenia pszczół. Zastosowano wzór:
x̄ − S_x̄ · t0,01 < X < x̄ + S_x̄ · t0,01
gdzie X — symbolizuje prawdziwą średnią arytmetyczną, natomiast x̄ — średnią dla pasieki obliczaną z próby, S_x — średni błąd tej średniej oraz t0,01 — współczynnik ufności t Fischera odczytany z tabeli. Wartości t dobierano przy kalkulacji prawdopodobieństwa omyłki 0,01 (Barbacki 1951).
strona 19Ocenę różnicowania się wartości cech u rojów wewnątrz pasieki (linii) i między pasiekami oparto na wzajemnym porównywaniu ich wskaźników podobieństwa, obliczanych w stosunku do modelu populacji pszczoły krajowej (Gromisz i Bornus 1971, 1972). Wskaźniki podobieństwa dla poszczególnych rojów oznaczono oddzielnie w zakresie każdej z cech, odczytując z tabel odpowiednie wartości (Bornus i Gromisz 1971, 1972). Stopień podobieństwa (odległość) pomiędzy rojami obliczano według wzoru:
Odległość_1−2 = [ Y_t1 − Y_t2 ] + [ Y_j1 — Y_j2 ] + [Y_i1 — Y_i2 ]
A więc odległość roju nr 1 od roju nr 2 równa się sumie różnic ich wskaźników podobieństwa pod względem szerokości IV tergitu (Y_t1 — Y_t2), długości języczka (Y_j1 — Y_j2) i indeksu kubitalnego (Y_i1 — Y_i2). W ten sposób porównywano poszczególne roje w obrębie pasieki zarodowej (linii hodowlanej), otrzymując (n2-n) · 0,5 liczb, charakteryzujących odległości pomiędzy poszczególnymi rojami (n — liczba rojów). Sumę takich odległości podzieloną przez ich liczbę, przyjęto jako przeciętny wskaźnik podobieństwa rojów wewnątrz poszczególnych pasiek. Przeciętny wskaźnik podobieństwa między liniami obliczano w podobny sposób, porównując roje tych linii.
WYNIKI I DYSKUSJA
ŚREDNIE WARTOŚCI CECH DLA LINII PSZCZOŁY KRAJOWEJ
W latach 1967—1971 zbadano pod względem morfologicznym 149 rojów w 19 pasiekach zarodowych bądź kandydujących na zarodowe. Rozpiętość średnich wartości cech dla badanych rojów waha się od 2,23 mm do 2,58 mm w szerokości IV tergitu odwłokowego, od 5,79 mm do 6,68 mm w długości języczka i od 37,9 do 70,4 w wartości indeksu kubitalnego. Krańcowe wartości średnie z pasiek dla tych samych cech są następujące: 2,26 mm i 2,56 mm, 6,01 mm i 6,49 mm oraz 39,0 i 65,7.
Badane roje w poszczególnych pasiekach pochodzą od matek wybranych z większej ich serii. Można zatem traktować je jako próbę reprezentującą kolejne pokolenie matek, wychowywanych na użytek własnej pasieki lub na sprzedaż na przykład punktom reprodukcyjnym. Na podstawie badania takiej próby można określić z pewnym prawdopodobieństwem granice (przedział ufności) w jakich znajdzie się prawdziwa średnia wartość cechy tego pokolenia pszczół. W naszych badaniach przyjęliśmy prawdopodobieństwo 0,99. Przedziały ufności dla średnich wartości (x) szerokości
strona 20IV tergitu odwłokowego (t), długości języczka (j) i indeksu kubitalnego (i) w poszczególnych pasiekach są następujące:
| pasieka | t (w mm) | j (w mm) | i |
|---|---|---|---|
| A | 2,19<X<2,47 | 6,04<X<6,40 | 47,1<X<8[?],2 |
| B | 2,33 | 5,94 | 53,6 |
| C | 2,32<X<2,34 | 6,10<X<6,18 | 60,9<X<67,3 |
| D | 2,32<X<2,36 | 6,18<X<6,25 | 59,9<X<69,0 |
| E | 2,28<X<2,32 | 5,78<X<6,24 | 60,0<X<67,4 |
| F | 2,31<X<2,34 | 6,02<X<6,13 | 57,6<X<63,1 |
| G | 2,33<X<2,36 | 6,05<X<6,26 | 60,1<X<63,1 |
| H | 2,31<X<2,37 | 5,96<X<6,60 | 60,5<X<66,5 |
| I | 2,25<X<2,36 | 5,68<X<7,07 | 24,8<X<77,2 |
| J | 2,26<X<2,51 | 5,87<X<6,36 | 53,5<X<73,5 |
| K | 2,25<X<2,38 | 6,07<X<6,32 | 50,5<X<56,7 |
| L | 2,24<X<2,40 | 5,77<X<6,44 | 44,8<X<75,2 |
| Ł | 2,52<X<2,61 | 6,07<X<6,26 | 49,2<X<71,3 |
| M | 2,36<X<2,39 | 6,20<X<6,30 | 55,3<X<59,5 |
| N | 2,21<X<2,32 | 6,26<X<6,72 | 33,3<X<44,7 |
| O | 2,27<X<2,42 | 6,28<X<6,41 | 50,9<X<58,3 |
| P | 2,27<X<2,32 | 6,24<X<6,54 | 41,8<X<55,4 |
| R | 2,26<X<2,31 | 6,42<X<6,52 | 45,0<X<51,1 |
| S | 2,35<X<2,40 | 6,46<X<6,62 | 53,8<X<58,0 |
Zwraca uwagę duże zróżnicowanie wielkości przedziałów, w których spodziewamy się znaleźć prawdziwą średnią wartość cechy dla całego pokolenia matek. Wielkość takich przedziałów zależy od 1) rozmiarów zmienności cechy wewnątrz pasieki (linii) i od 2) liczby badanych tam rojów. Na tym miejscu pragniemy podkreślić znaczenie warunku drugiego. Zwiększenie w próbie liczby rojów, pozwala dokładniej oznaczać granicę przedziału. Jest to zrozumiałe, bo im więcej badamy rojów, tym wynik jest bliższy średniej wartości, obliczonej na podstawie pomiarów pszczół we wszystkich rojach w pasiece. Zwiększenie próby z 3 do 14 rojów, pozwala na zmniejszenie do połowy przedziału ufności. Dalszy wzrost liczebności próby daje coraz to mniejszą korzyść. Przy interpretowaniu podanych przez nas przedziałów ufności należy zatem pamiętać, że dla niektórych pasiek zostały one obliczone na podstawie badania małej liczby rojów (tab. 1).
ZMIENNOŚĆ CECH WEWNĄTRZ ROJÓW
Wskaźniki zmienności przeważającej części badanych rojów mieszczą się w granicach 1,0—2,5 dla szerokości IV tergitu i dla długości języczka, oraz 9,0—13,0 dla indeksu kubitalnego. Poza tymi granicami znalazła się
strona 21stosunkowo nieliczna grupa rojów. Jest ich — według tej samej kolejności cech — 15,4%, 19,5% i 33,1%. W tej liczbie górną granicę przyjętego przez nas przedziału przekracza 14,7%, 10,8% i 19,6% rojów, pozostałe zaś nie sięgają dolnej jego wartości. Według badania Bornusa, Demianowicza i Gromisza (1966) w populacji pszczół nieselekcjonowanych poza przyjętym przedziałem wartości wskaźników znajduje się następujący odsetek rojów:
szerokość IV tergitu <1,0—2,5< — 39,0% (39,0%) rojów długość języczka <1,0—2,5< — 21,6% (11,8%) rojów indeks kubitalny <9,0—13,0< — 48,3% (41,6%) rojów
W nawiasach podano odsetek rojów przekraczających wartością wskaźnika zmienności górną granicę przedziału. Jest ich więcej niż w zarodowej populacji pszczół. Wyrównanie pogłowia rojów w pasiekach zarodowych jest zatem większe niż w pasiekach użytkowych, ale rozkład wskaźników zmienności dla poszczególnych rojów kształtuje się podobnie.
Wszystkie pasieki niewiele się różnią przeciętnym wskaźnikiem zmienności, obliczonym z sumy wskaźników badanyeh tam rojów. Jednakże wewnętrzne zróżnicowanie w pasiekach jest rozmaite. W niektórych pasiekach rozpiętości pomiędzy krańcowymi wartościami wskaźników zmienności są bardzo duże, w innych natomiast stosunkowo małe. Selekcjonowane roje w poszczególnych pasiekach są zatem albo do siebie zbliżone stopniem wyrównania pogłowia, albo pod tym względem się różnią (tab. 2).
ZMIENNOŚĆ CECH POMIĘDZY ROJAMI WEWNĄTRZ KAŻDEJ LINII
W każdej pasiece poszczególne roje różnią się wartością cech. Różnice mogą być mniejsze lub większe i mówimy wtedy o dużym lub małym wyrównaniu populacji. Stopień wyrównania można przedstawić liczbami, wykorzystując do obliczeń specjalne wzory matemamtyczne. Jeżeli w wyniku obliczeń otrzymamy liczbę bliską lub równą zeru, porównywane dwa roje są bardzo podobne pod względem badanych cech. W miarę zwiększania się różnic we wszystkich określanych cechach lub w niektórych z nich, wskaźnik liczbowy wzrasta. W naszych badaniach obliczaliśmy przeciętny wskaźnik podobieństwa pomiędzy rojami w pasiekach zarodowych.
Największe wyrównanie pomiędzy rojami pod względem trzech cech morfologicznych, charakteryzowała liczba 0,9 (pasieka N), najmniejsze natomiast — 3,3 (pasieka L). Pomiędzy tymi wielkościami mieszczą się wskaźniki dla wszystkich innych pasiek (ryc. 1).
strona 22Tabela 2 Wskaźniki zmienności cech morfologicznych badanych rojów Varation coefficient of morphological features of investigated colonies V_x̄ — przeciętny wskaźnik zmienności w pasiece mean waration coefficient in the apiary V_n, V_m — krańcowe wartości wskaźników zmienności w pasiece extreme value of varation coefficient in the apiary
| Pasieka / Apiary | Szerokość IV tergitu / Width of the IV tergit: V_x̄ | Szerokość IV tergitu / Width of the IV tergit: V_n — V_m | Długość języczka / Length of tongue: V_x̄ | Długość języczka / Length of tongue: V_n — V_m | Indeks kubitalny / Cubital index: V_x̄ | Indeks kubitalny / Cubital index: V_n — V^m |
|---|---|---|---|---|---|---|
| A | 2,0 | 1,6—2,7 | 1,4 | 1,1—1,7 | 11,0 | 10,1—12,8 |
| B | 1,5 | 2,0 | 10,5 | |||
| C | 2,0 | 1,5—2,8 | 1,8 | 1,0—2,7 | 11,1 | 7,9—19,8 |
| D | 1,7 | 1,4—2,1 | 1,1 | 0,8—1,5 | 10,0 | 6,6—12,9 |
| E | 1,7 | 1,3—2,3 | 1,8 | 1,5—2,5 | 9,6 | 7,0—11,7 |
| F | 1,8 | 1,5—2,3 | 1,7 | 1,1—2,5 | 12,7 | 9,7—19,1 |
| G | 1,8 | 1,4—2,2 | 2,3 | 1,7—3,1 | 12,7 | 9,2—16,9 |
| H | 2,4 | 1,9—2,8 | 2,0 | 1,1—3,5 | 11,2 | 9,7—13,4 |
| I | 2,1 | 1,7—2,7 | 2,7 | 2,2—3,4 | 14,9 | 12,7—17,4 |
| J | 2,4 | 2,0—3,0 | 2,5 | 1,6—3,4 | 11,5 | 10,8—13,1 |
| K | 3,0 | 2,5—3,9 | 1,7 | 1,2—2,8 | 15,1 | 12,0—17,8 |
| L | 2,3 | 2,0—2,5 | 2,2 | 1,7—2,8 | 12,8 | 11,5—13,6 |
| Ł | 3,0 | 2,1—5,7 | 1,3 | 1,0—1,7 | 9,9 | 7,4—12,5 |
| M | 1,9 | 1,0—2,6 | 1,7 | 1,2—2,5 | 11,6 | 8,1—15,0 |
| N | 2,7 | 1,6—3,5 | 1,8 | 1,6—2,0 | 17,1 | 16,4—17,8 |
| O | 1,7 | 1,2—2,1 | 1,2 | 0,6—1,8 | 11,5 | 9,1—16,3 |
| P | 1,8 | 1,1—3,0 | 1,8 | 1,2—1,8 | 12,5 | 9,3—18,2 |
| R | 1,7 | 1,0—3,4 | 1,7 | 0,8—3,9 | 12,4 | 8,9—15,9 |
| S | 2,6 | 2,2—2,8 | 2,0 | 1,6—2,6 | 12,3 | 9,2—15,5 |
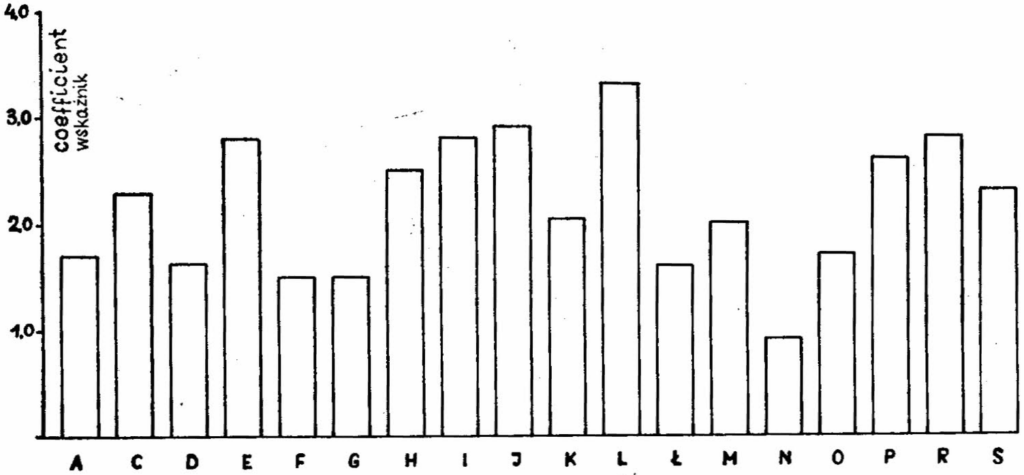
Ryc. 1. Przeciętny wskaźnik podobieństwa rojów wewnątrz pasiek (objaśnienie w tekście) Mean affinity coefficient of colonies in the apiaries
strona 23Tabela 3 Uporządkowanie pasiek według malejącego stopnia ich wzajemnego podobieństwa Arrangement of the apiaries according to decrescent degree of their affinity
| Pasieka / Apiary | Odległość między pasiekami — Interval between apiaries: —1,0 | —2,0 | —3,0 | —4,0 | —5,0 | —6,0 | —7,0 | —8,0 | —9,0 | —10,0 |
|---|---|---|---|---|---|---|---|---|---|---|
| A | DH | GCJFM | LEKO | IB | PSŁ | R | — | — | N | — |
| B | — | F | KEG | CMJOAD | LHP | SR | Ł | — | N | — |
| C | G | DAFHJ | MKLE | BOI | ŁSP | — | R | — | N | — |
| D | AGH | CJFM | LEKO | IB | SŁP | R | — | — | N | — |
| E | N | FG | CDJABH | MKL | O | IŁS | P | R | — | — |
| F | G | CDEJBAHK | ML | OI | PSŁ | R | — | — | N | — |
| G | FDC | AHJMEK | LBO | I | SŁP | R | — | N | — | — |
| H | DA | GCF | MJLEKO | IS | PBŁ | R | — | N | — | — |
| I | — | POL | RSKM | GDHAFNBC | J | E | Ł | — | — | — |
| J | — | GDCFA | MHE | KŁLBO | I | SP | — | R | — | N |
| K | — | MOGF | LIBPDACH | JRSE | — | ŁN | — | — | — | |
| L | — | OMI | DKGHASPC | RJE | B | NŁ | — | — | — | — |
| Ł | — | — | — | JM | GDCAFH | OKEL | BI | SP | — | RN |
| M | — | GODKAL | HJCFI | SBEPŁ | R | — | — | N | — | — |
| N | E | — | RP | I | S | OLK | — | MGH | DAFBC | JŁ |
| O | — | LMIK | SPDGRHA | FCBJ | E | NŁ | — | — | — | — |
| P | — | IR | OKLSN | M | ADGHFBC | J | E | Ł | — | — |
| R | — | P | NISO | LK | M | HGDAFB | C | JE | — | Ł |
| S | — | — | OILRP | MKH | DGANFC | JBE | — | Ł | — | — |
ZMIENNOŚĆ CECH PSZCZÓŁ POMIĘDZY PASIEKAMI
Podobnie jak wewnątrz pasieki możemy porównywać roje i pomiędzy poszczególnymi pasiekami i obliczać przeciętne wskaźniki podobieństwa. Otrzymane w ten sposób liczby określają stopień podobieństwa wzajemnego populacji pszczół tych pasiek. Inaczej mówiąc, są one miarą różnic pomiędzy liniami pszczół selekcjonowanych przez hodowców.
Przy porównywaniu poszczególnych pasiek otrzymujemy przeciętne wartości wskaźników podobieństwa od 1,1 (między pasiekami E i N) do 12,6 (między pasiekami Ł i N). Najwięcej mieści się ich w przedziale od 2,0 do 5,0, bo 60%, poniżej 2,0 — niecałe 5%, a powyżej 7,0 — 11% (tab. 3). Przeważająca większość wskaźników (około 75%) przekracza wartość maksymalną wskaźnika podobieństwa wewnątrz linii (pasieka L, wskaźnik — 3,3).
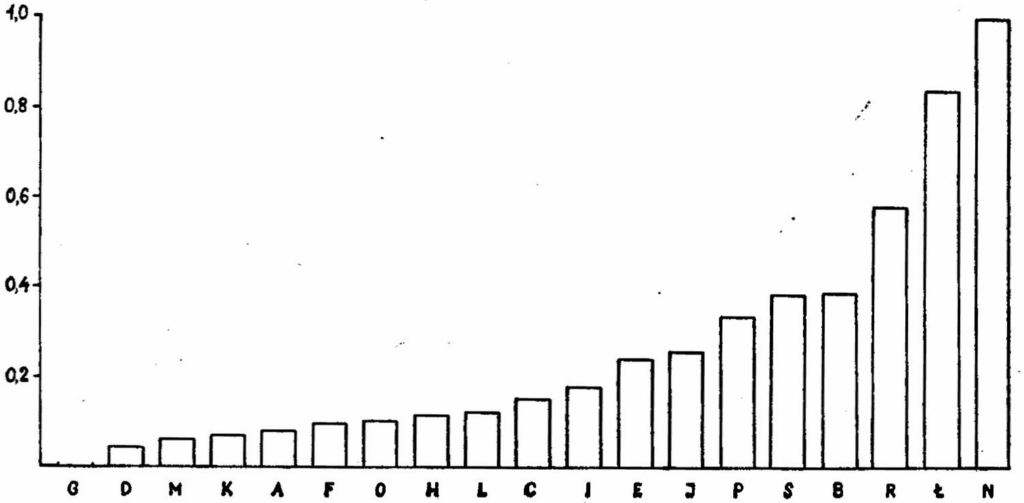
Ryc. 2. Uporządkowanie linii według stopnia ich podobieństwa do populacji pszczoły selekcjonowanej w Polsce (objaśnienie w tekście)
Arrangement of honey bee lines according to their affinity to the population breeding in Poland
O odrębności linii możemy mówić dopiero wtedy, kiedy wielkość różnicy w stosunku do innych linii przekracza poziom jej wewnętrznego zróżnicowania. Nasze przeciętne wskaźniki podobieństwa sygnalizują istnienie dostatecznie wielkich różnic pomiędzy niektórymi liniami, aby można było je udowodnić statystycznie. Dowód taki przeprowadziliśmy.
Na 153 możliwych kombinacji w porównywaniu po dwie pasieki (pasiekę B wyłączono z porównania), w 83 (54%) przypadkach stwierdzono istotność różnicy pod względem przynajmniej jednej cechy (P = 0,01). Trzema cechami różni się istotnie pasieka C od pasieki M, N, P, R, S a także: D od N, R, E od S, F od R, G od N, R, S, Ł od N i M od R; natomiast dwoma cechami: C od D, D od M, O, P. S, E od M, N, O, P, R, F
strona 25od M. N. P, S, G od M, O, P, H od R, J od R, Ł od O, R, S, M od N. P. N od S, R od S, i jedną cechą: C od D, E, K, Ł, D od E, F, K, Ł, E od G, K, Ł, F od K, Ł, H od K, Ł, M, N, O, P, S, I od Ł, M, J od Ł, N, S, K od Ł, N, R, S, L od Ł, N, S, M, P, M od S, O, R, O od R, S, P od S, G od K, Ł.
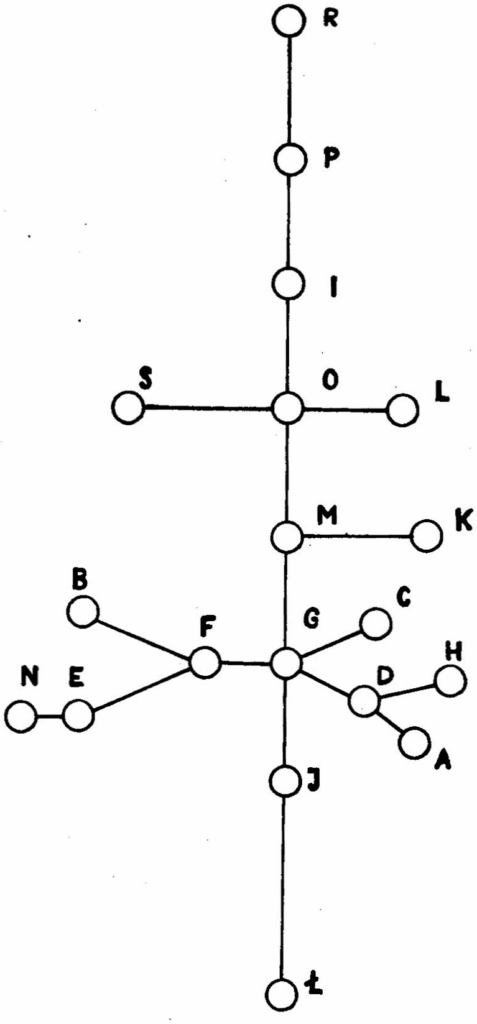
Ryc. 3. Dendryt linii pszczół selekcjonowanych w Polsce (objaśnienie w tekście)
Dendryt of honey bee lines breeding in Poland
Niektóre z linii odróżniają się dość znacznie od pozostałych (pasieki N i M), natomiast między innymi różnice są mniejsze (pasieki A, D, F, H, G). Można określić podobieństwo każdej z linii do całej populacji pszczół w polskich pasiekach zarodowych. Jako miarę tego przyjęliśmy sumy wskaźników podobieństwa rojów danej linii do rojów pozostałych linii. Otrzymaliśmy wartości od 66,2 dla pasieki G do 132,9 dla pasieki N. Populacja pszczół pasieki G jest zatem najbliższa pod względem morfologicznym
strona 26do wszystkich linii pszczół selekcjonowanych w kraju. Inaczej: linia G zajmuje środkową pozycję, od której oddalają się mniej lub więcej pozostałe linie. Charakteryzuje ona najlepiej typ morfologiczny pszczoły polskich pasiek zarodowych. Natomiast linia w pasiece N jest najbardziej odległa od tego środka. Na rycinie 2 uporządkowano wszystkie linie według ich stopnia odrębności, przyjmując skalę od 0 (dla pasieki G) do 1,0 (dla pasieki N).
Środkowa pozycja pasieki G uwidacznia się także i w innym uporządkowaniu, które przedstawia dendryt na rycinie 3. Połączono na nim te linie pszczół, które są do siebie najbardziej podobne pod względem morfologicznym. Na przykład pszczoły linii E są najbardziej podobne do pszczół linii N, a te dwie linie łączą się z pozostałymi przez linię F. Należy jednak pamiętać, że liczbowa odległość linii N od linii F nie równa się sumie odcinków NE i EF. Na dendrycie są tylko przedstawione odległości pomiędzy dwoma bezpośrednio sąsiadującymi liniami. Miejsce danej linii w dendrycie informuje jednak o stopniu jej podobieństwa do innych linii. Na przykład linia J jest bliższa podobieństwem morfologicznym do linii C, D, F, niż do linii R, K, I. W rzeczywistości odległość linii J wynosi: od linii C — 2,6, od D — 2,5 i od F — 2,7, a od linii R — 8,2, od K — 4,4 i od I — 5,8.
WNIOSKI
Pomiędzy pasiekami zarodowymi w kraju występuje dość duże zróżnicowanie wartości cech morfologicznych pszczół robotnic. Dla każdej linii można opracować standard morfologiczny pszczoły pozwalający na odróżnienie jej od większości innych linii. W celu opracowania standardu morfologicznego i sprawdzenia go należy:
- przeprowadzić badania morfologiczne przynajmniej 20—30 rojów w każdej linii,
- do badań wybierać roje w pasiece losowo,
- określić zmienność cech robotnic między pokoleniami selekcjonowanych matek.
LITERATURA
Barbacki S. (1951) — Doświadczenia kombinowane. Warszawa, PWRiL
Bornus L. (1964) — Jednolity system hodowli zarodowej pszczół. Warszawa. PZP i CSO
Bornus L., Demianowicz A., Gromisz M. (1966) — Morfometryczne badania krajowej pszczoły miodnej Apis mellifica L. Pszczeln. Zesz. Nauk., 10 (1—4) : 1—46
Bornus L. i Gromisz M. (1969) — Matematyczne modele populacji pszczół różnych ras. Pszczeln. Zesz. Nauk., 13 (1—3) : 73—83
strona 27Bornus L., Gromisz M. i Veliczkov V. (1967) — Ocena linii zarodowych pszczół w Polsce metodą taksonomii wrocławskiej. Pszczeln. Zesz. Nauk., 11 (1—2) : 51—60
Bornus L. i Mackiewicz D. (1966) — Morfologiczna ocena linii zarodowych pszczoły krajowej na podstawie pięcioletnich badań. Pszczeln. Zesz. Nauk., 10 (1—4) : 57—72
Gromisz M. (1967) — Przydatność niektórych cech morfologicznych w systematyce wewnątrz gatunku Apis mellifica L. Pszczeln. Zesz. Nauk., 11 (1—3) : 37—50
Gromisz M. (1971) — Tergity odwłokowe jako wskaźnik wielkości ciała pszczoły. Pszczeln. Zesz. Nauk., 15 (1—2) : 15—27
Gromisz M. (1972) — Ocena morfologiczna pszczół z pasiek zarodowych. Pszczeln. Zesz. Nauk., 16 : 1—22
Gromisz M. i Bornus L. (1971) — Morfologiczno-matematyczne modele populacji pszczoły krajowej. Pszczeln. Zesz. Nauk., 15 (1—2 : 1—14
Gromisz M. i Bornus L. (1972) — Zmienność szerokości IV tergitu odwłokowego u pszczoły krajowej. Pszczeln. Zesz. Nauk., 16 : 23—29
МОРФОЛОГИЧЕСКАЯ ХАРАКТЕРИСТИКА ПЧЕЛ СЕЛЕКЦИОНИРУЕМЫХ В ПОЛЬШЕ
М. Громиш и Л. Циесьля
Резюме
В 1967—1971 гг. делались морфологические исследования 149 пчелосемей из 19 племенных пасек. Разность средних значений признаков для пасек равнялась: ширина IV брюшного тергита от 2,26 мм до 2,56 мм. длина хоботка от 6,1 мм до 6,49 мм, кубитальный индекс от 39,0 до 65,7.
Между отдельными пасеками (линиями пчел) выступает довольно большая дифференциация значений морфологических признаков. Для каждой линии можно выработать морфологический стандарт.
MORPHOLOGICAL CHARACTERISTIC OF HONEY BEE LINES BREEDING IN POLAND
Michał Gromisz and Leonard Cieśla
Summary
In the years of 1967—1971 bees from 149 colonies, in the 19 breeding apiaries were morphologicaly investigated. The range of means value of the morphological features were as follows: the width of the IV tergit of abdomen — from 2,26 mm to 2,56 mm, the length of tongue — from 6,01 mm to 6,49 mm, value of cubital index — from 39,0 to 65,7. There are big differentiation in the value of morphological features between some of apiaries (breeding lines). It is possible to find morphologicaly standard for each breeding line.
Errata — błędy druku znalezione podczas digitalizacji
- s. 18, tab. 1: „Letter noation” → Letter notation
- s. 21: „badanyeh” → badanych
- s. 21: „matemamtyczne” → matematyczne
- s. 22, tab. 2: „Varation coefficient” → Variation coefficient
- s. 22, tab. 2: „mean waration coefficient” → mean variation coefficient
- s. 22, tab. 2: „extreme value of varation coefficient” → extreme value of variation coefficient
- s. 25, ryc. 3: „Dendryt of honey bee lines” → Dendrite of honey bee lines
- s. 27, Резюме: „от 6,1 мм” → от 6,01 мм
- s. 27, Summary: „morphologicaly investigated” → morphologically investigated
- s. 27, Summary: „morphologicaly standard” → morphological standard