

BORY JAKO BAZA POŻYTKOWA PSZCZÓŁ
tekst: Kazimiera Szklanowska
Pszczelnicze Zeszyty Naukowe, Rok XVII, 1973 — Kazimiera Szklanowska
strona 51PSZCZELNICZE ZESZYTY NAUKOWE ROK XVII GRUDZIEŃ 1973
Kazimiera Szklanowska
Instytut Przyrodniczych Podstaw Produkcji Roślinnej Akademia Rolnicza w Lublinie
WPROWADZENIE
Kwitnienie głównych roślin miododajnych w borach przypada na miesiąc maj oraz czerwiec i zbiega się z okresem największego zapotrzebowania pszczół na nektar i pyłek kwiatowy. Od zapasu pierzgi w ulu w tej porze roku uzależnione jest tempo rozwoju rodzin pszczelich, a pośrednio późniejsze zbiory miodu i plony owoców roślin zapylanych przez ten gatunek owadów. W okolicach gdzie przeważają lasy iglaste, podstawowym źródłem wiosennego wziątku nektarowego są rośliny runa borowego.
Celem pracy było wytypowanie najważniejszych roślin pożytkowych w borach, zbadanie ich nektarowania w różnych środowiskach oraz oszacowanie wydajności miodowej całych zbiorowisk leśnych. Problem ten jest bardzo aktualny z uwagi na praktykowanie wędrówek pasiek na tereny lesiste.
Dotychczasowe doniesienia o nektarowaniu gatunków roślin nie uwzględniały opisu typów zbiorowisk roślinnych, a często nawet właściwości ekologicznych siedliska. Niniejsze opracowanie jest pierwszą próbą rozwiązania tych zagadnień na tle zespołów borowych.
Niektóre rośliny pożytkowe obszarów leśnych w Związku Radzieckim opisali: Andrejew (1926), Talijew (1927), Głuchow (1950), Kartaszowa (1952) i Błagowieszczenskij (1955). Autorzy ci nie badali nektarowania roślin, ich wartość miododajną określali na podstawie obserwacji intensywności oblotu przez pszczoły lub na podstawie dziennych zmian ciężaru uli kontrolnych w okresie kwitnienia danego gatunku.
Ilość nektaru wydzielaną przez rośliny w środowisku leśnym badał dotychczas tylko Kulijew (1952). Stwierdził on, że z 1 ha obszarów
- Praca ta stanowi część rozprawy habilitacyjnej Autorki.
leśnych Azerbajdżańskiej SSR, w ciągu całego sezonu wegetacyjnego, pszczoły mogą zebrać przeciętnie 42,7 kg nektaru.
Las jako źródło pożytku pszczelego w Czechosłowacji opracował Haragsim (1970). Główną część pracy autor poświęcił spadziowaniu drzew. Rośliny miododajne natomiast, które mogą być źródłem nektaru i pyłku w środowisku leśnym, zestawił w tabelach, uwżględniając jedynie ich okresy kwitnienia.
W Polsce rośliny miododajne po raz pierwszy opisał Szalkiewicz (1925). Z gatunków leśnych zasługujących na uwagę wymienił wrzos zwyczajny, kruszynę pospolitą, borówkę czarną i borówkę brusznicę.
Pierwsze opracowanie botaniczne roślin nektarodajnych i pyłkodajnych ogłosiła Demianowiczowa (1953). Autorka zwróciła uwagę między innymi na najważniejsze typy lasu. Podobnie jednak jak i w późniejszej publikacji Lipińskiego (1958) wydajność miodowa roślin podana została w oparciu o dane z literatury ZSRR.
Dopiero w pracy wydanej ze współpracownikami Demianowiczowa (1960) ustaliła metodę badań nad nektarowaniem i określiła wydajność miodową 33 gatunków roślin w warunkach Polski. Te wstępne doświadczenia nie objęły wówczas pożytkowych roślin leśnych, nie ma o nich także danych w spisie zamieszczonym przez Ostrowską i Żukowskiego (1967). Więcej uwagi nektarowaniu roślin w środowisku leśnym poświęciła Szklanowska (1966, 1968a, 1972a, 1972b).
TEREN I METODA BADAŃ
Badaniami objęto 5 roślinnych zbiorowisk leśnych czyli borów, zwanych przez fitosocjologów również zespołami lub asocjacjami borowymi:
I. bór bagienny — zespół Vaccinio uliginosi-Pinetum Kleist. 1929
II. bór mieszany sosnowo-dębowy — zespół Pino-Quercetum Kozł. 1925
III. bór sosnowy świeży — zespół Peucedano-Pinetum typicum Mat. 1962
IV. bór sosnowy suchy — zespół Peucedano-Pinetum cladonietosum, wariant z Vaccinium vitis-idaea
V. bór jodłowy — zespół Abietetum polonicum (Dziub. 1928) Br.-Bl. et Vlieg 1939.
Zespoły te pod względem systematyki ekologicznej należą do klasy Vaccinio-Piceetea Br.-Bl. 1930 rzędu Vaccinio-Picetalia Br.-Bl. 1939 i związku Dicrano-Pinion Libb. 1933 (zespoły I, II, III, IV) oraz związku Vaccinio-Piceion Br.-1938 (zespół V).
Bór mieszany sosnowo-dębowy należy do leśnictwa Wilkołaz (nadl. Kraśnik) i położony jest w zachodniej części Wyżyny Lubelskiej, w regionie Wzniesienia Urzędowskiego. Pozostałe bory wchodzą w skład kompleksu
strona 53leśnego nadl. Zwierzyniec w południowej części Pasa Wyżyn, w regionie Roztocza Środkowego (Chałubińska i Wilgat 1959).
Obie krainy fizjograficzne podobnie jak całe województwo lubelskie są pod wpływem klimatu kontynentalnego. Na Roztoczu wiosna i jesień są krótkie, lato i zima zaczynają się wcześnie i trwają na ogół długo. Duże kontrasty termiczne występują pomiędzy porą letnią i zimową, a znaczne wahania temperatury między dniem i nocą szczególnie jaskrawo uwidaczniają się wiosną. Późne lato (VIII—IX) i jesień (X—XI) charakteryzują dni słoneczne i ciepłe. Wyżyna Lubelska wyróżnia się natomiast wyjątkowo późno występującymi przymrozkami wiosennymi i niezwykle wczesnym pojawianiem się przygruntowych przymrozków jesiennych. Z tego też względu okres wolny od mrozu jest tu najkrótszy w całym województwie. Średnie miesięczne temperatury obu krain są bardzo podobne. Najcieplejszym miesiącem jest lipiec, a najzimniejszym styczeń. Średnie dobowe temperatury powietrza poniżej 0°C trwają około 3 miesięcy. W związku z wyższym położeniem Roztocza (350—390 m n. p. m.) opady atmosferyczne są tu większe niż w innych regionach województwa. Obszar Wyżyny Lubelskiej charakteryzuje się z kolei częstszymi burzami ze względu na przebiegający szlak gradowy.
Badania prowadzono w latach 1969—1971. W wytypowanych zbiorowiskach borowych wykonano zdjęcia fitosocjologiczne metodą Braun-Blanqueta (1951). Zespoły roślinne wyróżniono na podstawie grup gatunków charakterystycznych (Matuszkiewicz 1967). Badania florystyczne i glebowo-ekologiczne wykonano w celu stwierdzenia, czy płaty powierzchni doświadczalnej są reprezentatywne i czy różnią się pod względem florystyczno-ekologicznym od zbiorowisk leśnych opracowanych na Roztoczu przez Izdebskiego (1959, 1962, 1963). Wyniki analiz glebowych (tab. 2 ) wykonano według ogólnie przyjętych metod:
a) skład mechaniczny gleby metodą Casagrande’a w modyfikacji Pruszyńskiego.
b) procentową zawartość substancji organicznych w glebie metodą nadmanganianową (Matuszkiewicz 1950),
c) odczyn gleby — pH czynne i wymienne metodą elektrometryczną
d) ilość P2O5 i K2O według Egnera w modyfikacji Riehma.
W poszczególnych zespołach, na jednolitych płatach powierzchni o wielkości 100 m2, losowo obrano 20 mniejszych kwadratów, (1×1 m) na których rokrocznie liczono pędy i kwiaty badanych roślin oraz pobierano nektar do analiz. Niezależnie od ustalenia średniej liczby badanych roślin na powierzchni 100 m2, w każdym zespole określano dodatkowo ich występowanie na losowo obranych 30 powierzchniach kolistych o średnicy 36,7 cm, co odpowiada 0,1 m2. Na podstawie uzyskanych wyników obliczono frekwencję roślin w danym zespole, dzięki czemu uniknięto w dużej mierze subiektywności szacowania.
strona 54Badaniami objęto 15 gatunków roślin miododajnych o kwiatach wydzielających nektar, dostępny pszczołom i w takich ilościach, że można go było pobrać pipetami typu Jabłońskiego (Demianowiczowa i inni 1960).
Rokrocznie w okresie pełni kwitnienia poszczególnych gatunków pobierano po 30 prób nektaru dziennie przez okres 6 dni, zawsze w godzinach popołudniowych. Jedną próbę stanowił nektar z 10, 30 lub 50 kwiatów, zależnie od ilości wydzielanego przez nie nektaru. Procentową zawartość suchej masy nektaru, która według Beutler (1940) odpowiada procentowej zawartości cukrów, oznaczono refraktometrem Abbe’go. Wartość cukrową — termin wprowadzony przez wyż. wym. autorkę, odpowiadający ilości cukrów wytworzonych przez 10 kwiatów w ciągu doby, obliczono z ilości nektaru i procentowej zawartości cukrów. Na podstawie uzyskanych wyników określono wydajność cukrową i miodową poszczególnych gatunków roślin z 1 ha nie zredukowanej powierzchni badanych borów, stosując powszechnie znany wzór Gubina (1948). Przy obliczaniu wydajności miodowej przyjęto, że dojrzały miód zawiera 80% cukrów i 20% wody.
Na podstawie 3-letnich obserwacji fenologicznych, przedstawiono graficznie przebieg kwitnienia roślin miododajnych w poszczególnych zespołach (ryc. 6). Warunki pogody w okresach wegetacyjnych scharakteryzowano na podstawie obserwacji własnych oraz ze średnich miesięcznych i rocznych temperatur powietrza i opadów miejscowości najbliżej leżących terenu badań (tab. 1). Średnie wieloletnie temperatury powietrza zaczerpnięto z pracy Gumińskiego (1950), a średnie wieloletnie sumy opadów z atlasu Wiszniewskiego (1953).
Zebrany materiał opracowano statystycznie przy pomocy analizy wariancji, przyjmując dwie zasady klasyfikacji jako podstawy zmienności — według lat badań i według zespołów roślinnych. W obrębie każdego roku spostrzeżenia traktowano jako niezależne replikacje. Dało to możność wyodrębnienia interakcji między latami a zespołami. W ten sposób został pominięty problem ewentualnej autokorelacji między spostrzeżeniami, co zdaje się mieć uzasadnienie przy dłuższej zmienności między dniami. Ocenę istotności różnic pomiędzy średnimi oparto na kryterium testu „t” Studenta. W badaniach przyjęto jeden poziom wiarygodności a1 = 0,05. Powyższe postępowanie stosowano dla gatunków roślin, które występowały w więcej niż jednym zespole.
WYNIKI
PRZEBIEG POGODY W OKRESIE BADAŃ
Na terenie nadl. Zwierzyniec, gdzie prowadzono badania, średnia wieloletnia suma opadów wynosi 598 mm i różni się dodatnio o 47 mm od przeciętnej sumy opadów obszarów leśnych Wilkołaza w nad. Kraśnik
strona 55Tabela 1 Średnie miesięczne i roczne temperatury powietrza i opady dla okolic Wilkołaza (W) i Zwierzyńca (Z) w latach 1969—1971 Mean monthly and yearly temperatures of air and rainfalls in Wilkołaz (W) and Zwierzyniec (Z) district in the years 1969—1971
| Czynniki pogody / Factors of weather | Rok / Year | Environs | Miesiące — Months: I | II | III | IV | V | VI | VII | VIII | IX | X | XI | XII | Σ | x̄ I—XII |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Temperatura wzgl. powietrza w°C (średnie miesięczne) | 1969 | W | —7,2 | —5,0 | —2,8 | 6,5 | 14,8 | 16,4 | 18,1 | 16,8 | 13,4 | 8,1 | 5,2 | —8,6 | — | 6,3 |
| 1969 | Z | —8,1 | —5,1 | —2,9 | 6,2 | 14,4 | 15,9 | 17,4 | 16,2 | 12,8 | 7,4 | 5,8 | —8,2 | 5,9 | ||
| 1970 | W | —5,7 | —5,4 | 0,8 | 7,2 | 12,0 | 16,7 | 17,1 | 16,9 | 11,6 | 6,7 | 4,2 | 0,2 | — | 6,8 | |
| 1970 | Z | —5,3 | —5,5 | 0,5 | 7,7 | 11,9 | 16,0 | 17,1 | 16,4 | 11,6 | 6,5 | 4,3 | 0,5 | 6,8 | ||
| Air temperature in °C (average of monthley) | 1971 | W | —3,6 | —1,2 | —1,2 | 7,2 | 14,4 | 15,7 | 17,9 | 18,5 | 10,7 | 7,4 | 1,5 | 2,0 | — | 7,4 |
| 1971 | Z | —4,1 | —1,2 | 0,8 | 7,3 | 14,7 | 15,5 | 17,3 | 18,0 | 10,7 | 7,7 | 2,0 | 2,0 | 7,5 | ||
| Średnie wieloletnie (40-year average) | W | —3,5 | —2,6 | 1,4 | 7,4 | 13,6 | 16,5 | 18,4 | 17,0 | 13,0 | 7,6 | 2,0 | —1,9 | — | 7,4 | |
| Z | —4,5 | —3,5 | 1,1 | 7,2 | 13,4 | 16,1 | 17,8 | 17,2 | 13,2 | 7,5 | 2,0 | —1,6 | 7,2 | |||
| Opad w mm (sumy miesięczne) | 1969 | W | 10,6 | 15,7 | 25,1 | 20,5 | 35,8 | 56,2 | 61,1 | 78,5 | 10,4 | 16,2 | 41,1 | 20,5 | 392 | — |
| 1969 | Z | 17,0 | 14,0 | 25,0 | 23,0 | 50,0 | 92,0 | 70,0 | 67,0 | 5,0 | 25,0 | 28,0 | 21,0 | 437 | ||
| 1970 | W | 40,1 | 55,9 | 40,9 | 92,4 | 88,4 | 27,5 | 97,8 | 89,1 | 72,6 | 52,3 | 60,9 | 42,3 | 760 | — | |
| Rainfall in mm (sums of monthley) | 1970 | Z | 37,0 | 24,0 | 36,0 | 63,0 | 130,0 | 48,0 | 145,0 | 42,0 | 71,0 | 33,0 | 49,0 | 41,0 | 719 | |
| 1971 | W | 12,3 | 25,9 | 15,9 | 36,9 | 48,4 | 61,4 | 20,6 | 15,1 | 36,9 | 34,8 | 19,5 | 31,1 | 359 | — | |
| 1971 | Z | 12,0 | 23,0 | 19,0 | 31,0 | 44,0 | 143,0 | 40,0 | 31,0 | 36,0 | 23,0 | 25,0 | 30,0 | 457 | ||
| Średnie wieloletnie (40-year average) | W | 29 | 24 | 30 | 41 | 45 | 70 | 91 | 68 | 46 | 38 | 34 | 35 | 551 | — | |
| Z | 37 | 32 | 38 | 36 | 54 | 58 | 78 | 76 | 59 | 45 | 44 | 41 | 598 |
(551 mm). W obu okolicach leśnych zaznacza się przewaga opadów letnich nad zimowymi, a jesiennych nad wiosennymi. Zarówno na jednym jak i na drugim obszarze najwięcej deszczu spada w lipcu.
Okresy wegetacyjne lat 1969—1971 znacznie różniły się między sobą pod względem ilości opadów i przebiegu temperatury powietrza (tab. 1). Niewielkie różnice natomiast wystąpiły w warunkach pogody na badanych obszarach leśnych. Średnie miesięczne temperatury powietrza kształtowały się podobnie i w obu nadleśnictwach wykazywały ten sam kierunek zmian.
Rok 1969 w stosunku do dwóch następnych lat był najchłodniejszy i charakteryzował się małymi opadami, które nie osiągały normy zarówno na terenie Wilkołaza, jak i Zwierzyńca. Po zimie prawie bezśnieżnej i długo utrzymujących się niskich temperaturach, kwietniowe opady deszczu ze śniegiem i śniegu wraz z przygruntowymi przymrozkami sięgającymi —6°C, stały się bardzo niebezpieczne zwłaszcza dla borówki czarnej i wrzosu. Krzewinki borówki dłuższy czas przykryte zlodowaciałą warstwą śniegu wyginęły w borze mieszanym całymi płatami. Ocieplenie wiosenne nastąpiło dopiero pod koniec kwietnia i przez I i II dekadę maja utrzymywały się wyjątkowo wysokie temperatury, dochodzące do 30°C. Czerwiec był także na ogół ciepły, słoneczny z nieregularnymi ulewami i burzowymi opadami deszczu.
Rok 1970 był wybitnie bogaty w opady śnieżne i deszczowe i w obu miejscowościach ich sumy znacznie przekraczały średnią wieloletnią. Wiosna w tym roku opóźniła się o około 3 tygodnie. Cały maj był chłodny i również deszczowy, dopiero pod koniec I dekady czerwca nastąpiło ocieplenie, które utrzymało się już do końca miesiąca. Na terenie obu nadleśnictw sumy opadów tylko w miesiącu czerwcu osiągnęły 50% średniej wieloletniej, a w pozostałych miesiącach przekroczyły normę o 100 do 150%.
Rok 1971 był suchy, upalny, najcieplejszy z trzech kolejnych lat. W pierwszej połowie kwietnia pogoda sprzyjała wegetacji roślin, natomiast częste przygruntowe przymrozki w drugiej połowie miesiąca spowodowały zwolnienie tempa wzrostu i rozwoju roślin. W maju przebieg pogody był bardzo zmienny. Pierwsze dni były nadal chłodne, bezdeszczowe z silnymi przymrozkami, a od połowy maja zalegały nad całym krajem suche masy powietrza. Dopiero w połowie czerwca wystąpiły ulewne deszcze, które spowodowały znaczne ochłodzenie. W pozostałych miesiącach tego roku obserwowano ponowny niedobór opadów na obu badanych obszarach leśnych.
strona 57CHARAKTERYSTYKA GEOBOTANICZNA BADANYCH ZESPOŁÓW LEŚNYCH ZE SZCZEGÓLNYM UWZGLĘDNIENIEM ROŚLIN MIODODAJNYCH
I. Vaccinio uliginosi-Pinetum Kleist. 1929 — bór bagienny (ryc. 1) leży około 1 km na SW od leśniczówki Kruglik, nadl. Zwierzyniec na Roztoczu Środkowym. Teren jest prawie równinny, obniżony. Siedlisko oligotroficzne o silnym zakwaszeniu oraz małej ilości fosforu i potasu w glebie
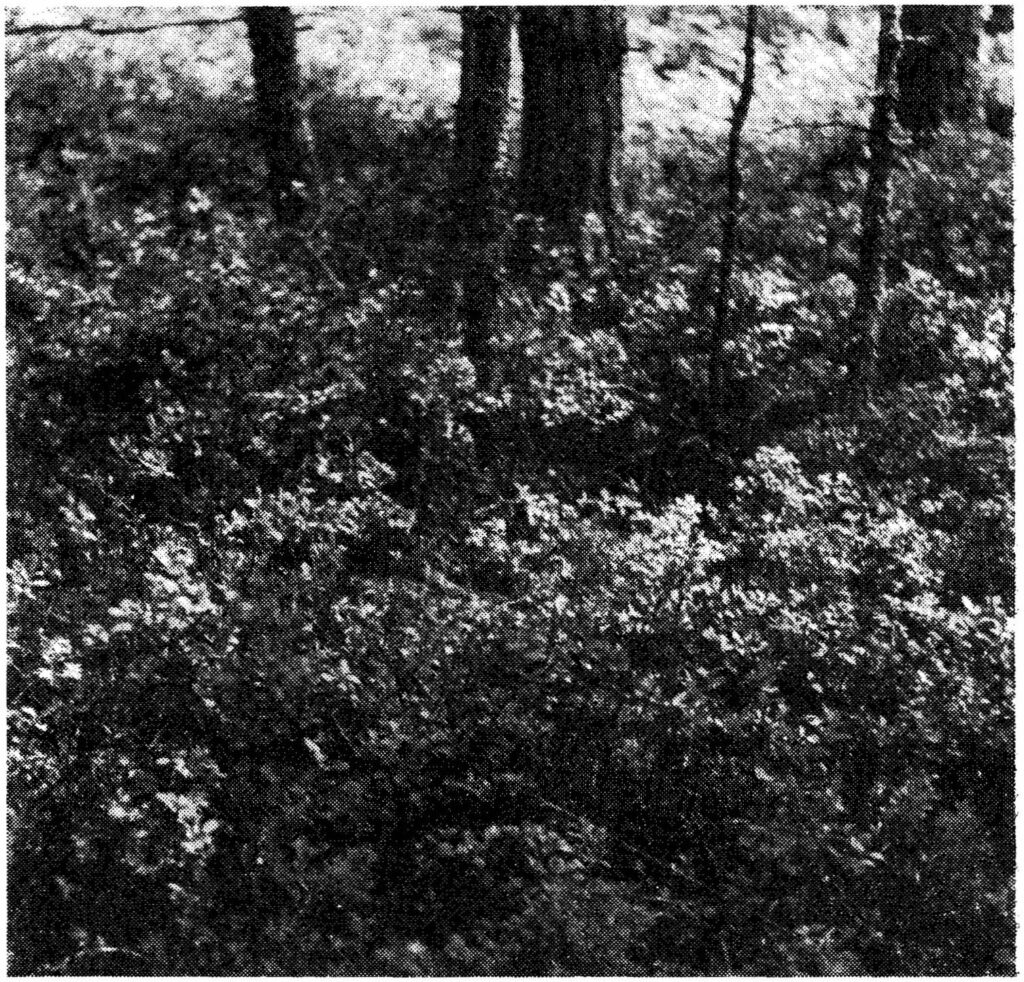
(tab. 2). Poziom wody gruntowej zalega płytko i ulega okresowej oscylacji pionowej. Nadmiar wody stojącej w glebie i tworzenie się rudawca hamuje rozwój systemu korzeniowego drzew. Widny ale mało dorodny drzewostan sosnowy nie przekracza 18 m wysokości.
Warstwę podszycia do 3 m wysokości tworzą Pinus silvestris z nieliczną domieszką Picea excelsa i Frangula alnus. Krzewy Frangula alnus w typowych fragmentach boru bagiennego niekiedy zupełnie nie wystę-
strona 58Tabela 2 Niektóre własności fizyczne i chemiczne gleb w badanych borach Some physical and chemical properties on the soil in the forests
| Zespół leśny / Forest associations | Głębokość poziomu w cm / Depth of horizon in cm | Grupy mech. gleby / Mechanical groups of the soil | Części ziemiste w mm / Earth parts in mm: 1—0,1 | 0,1—0,05 | 0,05—0,02 | 0,02—0,006 | 0,006—0,002 | 0,002 | pH czynne / pH in H2O | pH wymienne / pH in KCL | K2O w mg/100 g gleby / K2O in mg/100 g of soil | P2O5 w mg/100 g gleby / P2O5 in mg/100 g of soil | Zawartość humusu w % / Content of humus in % |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| I. | 15—20 | c | 71 | 18 | 5 | 2 | 2 | 2 | 4,1 | 3,2 | 0,9 | 2,5 | 5,6 |
| 20—25 | d | 77 | 15 | 4 | 2 | 1 | 1 | 4,3 | 3,5 | 0,2 | 0,6 | · | |
| 25—35 | d | 75 | 15 | 5 | 3 | 1 | 1 | 4,5 | 3,8 | 0,1 | 0,9 | · | |
| 70—80 | d | 88 | 5 | 2 | 4 | 0 | 1 | 4,6 | 4,1 | 1,1 | 1,1 | · | |
| II. | 5—10 | a | 5 | 19 | 36 | 27 | 7 | 8 | 5,2 | 4,3 | 6,1 | 11,2 | 2,4 |
| 20—25 | a | 7 | 10 | 46 | 22 | 5 | 10 | 4,9 | 4,0 | 2,8 | 6,5 | · | |
| 55—65 | b | 6 | 18 | 60 | 3 | 2 | 11 | 5,4 | 4,5 | 3,1 | 11,4 | · | |
| III. | 10—15 | c | 90 | 2 | 2 | 3 | 1 | 2 | 3,9 | 2,9 | 0,2 | 0,6 | 2,8 |
| 20—25 | d | 95 | 1 | 1 | 1 | 1 | 1 | 4,1 | 3,3 | 0,4 | 0,9 | · | |
| 30—40 | d | 92 | 4 | 1 | 1 | 1 | 1 | 4,9 | 4,4 | 0,1 | 0,5 | · | |
| 60—70 | d | 96 | 3 | 0 | 1 | 0 | 0 | 6,0 | 5,2 | 0,1 | 0,3 | · | |
| IV. | 5—10 | e | 82 | 5 | 2 | 1 | 2 | 8 | 4,3 | 3,2 | 0,5 | 1,6 | 1,8 |
| 20—30 | d | 93 | 4 | 1 | 0 | 1 | 1 | 4,3 | 3,5 | 0,8 | 0,9 | · | |
| 30—40 | d | 94 | 4 | 0 | 1 | 0 | 1 | 5,1 | 4,5 | 0,2 | 2,2 | · | |
| 60—70 | d | 95 | 4 | 0 | 1 | 0 | 0 | 6,0 | 5,2 | 0,1 | 0,6 | · | |
| V. | 4—10 | c | 89 | 4 | 1 | 4 | 0 | 2 | 4,2 | 3,3 | 2,7 | 0,2 | 1,4 |
| 15—20 | d | 93 | 4 | 0 | 1 | 1 | 1 | 4,4 | 3,4 | 0,2 | 0,3 | · | |
| 25—35 | d | 92 | 4 | 1 | 1 | 0 | 2 | 5,6 | 4,6 | 0,1 | 12,4 | · | |
| 60—70 | d | 92 | 5 | 1 | 1 | 0 | 1 | 5,9 | 5,0 | 0,1 | 1,4 | · |
a — utwór pyłowy ilasty (silt loam) b — utwór pyłowy zwykły (vary-fine sandy soil) c — piasek słabo gliniasty (coarse sandy soil) d — piasek luźny (loose sandy soil) e — piasek gliniasty lekki (medium sand)
strona 59pują. Najwięcej rośnie ich na zrębach i przy drogach leśnych. Gatunek ten należy potraktować jako sporadyczny dla niektórych partii tego zespołu. Mimo to w ogólnej wydajności miodowej boru bagiennego uwzględniono obecność Frangula alnus, ponieważ krzewy jej rokrocznie długo i obficie kwitły
W warstwie runa przeważają krzewinki borowe z rodziny Ericaceae. Największy porcentowy udział stanowi Vaccinium myrtillus. Gatunek ten w zespole boru bagiennego tworzy jagodziska typu kępowego, o słabym zwarciu. Krzewinki osiągają tu 40 cm wysokości, a na 100 m2 powierzchni spotyka się ponad 13 000 pędów nadziemnych. Rokrocznie wytwarzają one stosunkowo dużo pąków kwiatowych, ale liczba rozwiniętych kwiatów bywa później znacznie mniejsza i bardzo zmienna (tab. 3).
Tabela 3 Frekwencja gatunków roślin miododajnych, ich wysokość oraz średnia liczba wytwarzanych kwiatów w badanych zespołach leśnych w latach 1969—1971 Frequency of the honey plants, their heigt and average number of flowers in the years 1969—1971
| Zespół leśny / Forest associations | Gatunek / Species | Frekwencja w % / Frequency in % | Liczba roślin/100m2 / № of plants/100 m2 | Min. i max. wysokość roślin w m / Min. and max. hight of plants in m | Liczba kwiatów na 1 m2 / № of flowers per 1 m2 thousand: 1969 | 1970 | 1971 | Liczba kwiatów z ha (w mil. szt.) / № of flowers from 1 ha in mil. |
|---|---|---|---|---|---|---|---|---|
| I. | Vaccinium myrtillus | 97 | 13 400 | 0,2—0,4 | 938 | 2412 | 462 | 12,707 |
| Vaccinium vitis-idaea | 93 | 7 000 | 0,1—0,2 | 356 | 840 | 485 | 5,603 | |
| Vaccinium uliginosum | 67 | 3 200 | 0,2—0,8 | 398 | 524 | 376 | 4,327 | |
| Ledum palustre | 67 | 2 200 | 0,3—1,1 | 6164 | 9688 | 8142 | 79,980 | |
| Melampyrum pratense | 40 | 1 300 | 0,1—0,4 | 156 | 221 | 234 | 2,037 | |
| Calluna vulgaris | 13 | 300 | 0,2—0,3 | 375 | 758 | 544 | 5,590 | |
| Andromeda polifolia | 10 | 200 | 0,1—0,3 | 16 | 9 | 15 | 0,133 | |
| Frangula alnus | 10 | 8 | 0,5—2,0 | 900 | 1114 | 1340 | 11,180 | |
| II. | Vaccinium myrtillus | 100 | 14 500 | 0,1—0,3 | 170 | 1202 | 362 | 5,780 |
| Melampyrum pratense | 40 | 1 700 | 0,1—0,2 | 272 | 398 | 426 | 3,653 | |
| Viola silvestris | 27 | 800 | 0,1—0,2 | 36 | 45 | 64 | 0,483 | |
| Frangula alnus | 50 | 597 | 1,0—2,5 | 1566 | 1126 | 1662 | 14,513 | |
| Rubus sp. | 27 | 400 | 0,5—1,5 | 128 | 299 | 142 | 1,897 | |
| Pulmonaria obscura | 10 | 400 | 0,1—0,3 | 75 | 68 | 80 | 0,743 |
c. d. tab 3
| Zespół leśny / Forest associations | Gatunek / Species | Frekwencja w % / Fr quency in % | Liczba roślin/100m2 / № of plants/100 m2 | Min. i max. wysokość roślin w m / Min. and max. hight of plants in m | Liczba kwiatów na 1 m2 / № of flowers per 1 m2 thousand: 1969 | 1970 | 1971 | Liczba kwiatów z ha (w mil. szt.) / № of flowers from 1 ha in mil. |
|---|---|---|---|---|---|---|---|---|
| Fragaria vesca | 7 | 100 | 0,1—0,3 | 3 | 12 | 8 | 0,076 | |
| Cytisus nigricans | 6 | 40 | 0,3—0,8 | 198 | 217 | 306 | 2,403 | |
| Sorbus aucuparia | 1 | 6 | 3,0—5,0 | 2680 | 3366 | 2940 | 29,953 | |
| III. | Vaccinium myrtillus | 97 | 22 800 | 0,15—0,4 | 694 | 1483 | 984 | 10,536 |
| Vaccinium vitis-idaea | 40 | 2 700 | 0,1 —0,2 | 243 | 486 | 351 | 3,600 | |
| Melampyrum pratense | 40 | 2 200 | 0,15—0,3 | 218 | 289 | 326 | 2,777 | |
| Sorbus aucuparia | 0 | 2 | 0,5 —3,0 | 998 | 1540 | 1050 | 11,960 | |
| IV. | Vaccinium vitis-idaea | 97 | 18 600 | 0,05—0,2 | 1302 | 2418 | 1488 | 17,360 |
| Vaccinium myrtillus | 33 | 4 300 | 0,1 —0,2 | 129 | 344 | 215 | 2,293 | |
| Calluna vulgaris | 23 | 2 800 | 0,1 —0,3 | 4200 | 6215 | 5142 | 51,856 | |
| Melampyrum pratense | 3 | 200 | 0,15—0,3 | 80 | 66 | 72 | 0,727 | |
| V. | Vaccinium myrtillus | 83 | 8 000 | 0,05—0,2 | 210 | 428 | 164 | 2,673 |
| Galeobdolon luteum | 6 | 600 | 0,1 —0,2 | 372 | 736 | 576 | 5,613 | |
| Viola silvestris | 3 | 300 | 0,05—0,1 | 12 | 10 | 16 | 0,127 | |
| Sorbus aucuparia | 0 | 4 | 2,5 —3,5 | 1342 | 1860 | 1496 | 15,660 |
Vaccinium vitis-idaea w siedlisku boru bagiennego rośnie równomiernie i licznie — około 7 000 pędów na 100 m2 powierzchni. Ogólna suma kwiatów przypadająca na 1 m2 waha się tu od 356 do 840, przy czym liczba kwiatów w kwiatostanie jest bardzo różna — od 8 do 30.
Gatunkiem z rodzaju Vaccinium najbardziej charakterystycznym dla boru bagiennego jest Vaccinium uliginosum. Krzewinki jej występują niezbyt gęsto, ale wytwarzają mnóstwo rozgałęzień bocznych. Skąpe w kwiaty grona, w przeliczeniu na badaną jednostkę powierzchni, w sumie dają dość duże liczby (tab. 3).
Ledum palustre — gatunek charakterystyczny dla torfowiska wysokiego jednak w danym zespole jest również częsty. Poszczególne krzewinki
strona 61różnią się znacznie wysokością (od 30 do 110 cm) oraz liczbą pędów i kwiatostanów. Kwiatów natomiast w każdym kwiatostanie jest rokrocznie najczęściej 150 szt.
Melampyrum pratense w borówczyskach boru bagiennego stanowi znaczny udział. Na 100 m2 występuje około 1300 roślin o wysokości od 10 do 40 cm. Każda z nich wytwarza około 20 kwiatów.
Calluna vulgaris — większe skupiska tworzy jedynie na miejscach suchszych i odsłoniętych. W głębi boru bagiennego rośnie mniej okazów. Krzewinki dorastają zaledwie do 30 cm wysokości i w środowisku tym wytwarzają stosunkowo mało pędów kwiatowych, jednak zawsze o licznych kwiatach (ryc. 7).
Andromeda polifolia na badanej powierzchni jest gatunkiem bardzo rzadkim o pędach ubogich w kwiaty. W jednym kwiatostanie na przestrzeni 3 lat było najczęściej od 4 do 10 kwiatów.
Mchy osiągają w borze bagiennym 90% pokrycia. Wśród nich przeważa Entodon schreberi i Diciranum undulatum. W miejscach wilgotnych rośnie ponadto Sphagnum acutifolium i S. medium, Polytrichum commune oraz Hylocomium splendens.
II. Pino-Quercetum Kozł. 1925 — bór mieszany sosnowo-dębowy (ryc. 2), zajmuje znaczną część kompleksu leśnego należącego do leśnictwa Wilkołaz nadl. Kraśnik. Jest to obszar równinny o ekspozycji NWW, związany z glebą brunatną, wytworzoną z utworu pyłowego (lessu). Badania odkrywki glebowej (tab. 2) wykazały w poziomie próchnicznym i wymycia bardzo silne zakwaszenie, które maleje w miarę zbliżania się do skały macierzystej. Siedlisko to jest dość suche i słabo mezotroficzne pomimo, że stwierdzono tu we wszystkich warstwach gleby znaczne ilości potasu i fosforu. Przy niezbyt korzystnych warunkach humifikacji powstała cienka warstwa butwiny. Mineralizacja próchnicy przebiega powoli.
W widnym i mało dorodnym młodniku dębowym z domieszką Pinus silvestris, Populus tremula i Betula verrucosa warstwa krzewów jest dość dobrze wykształcona. Oprócz odnawiających się naturalnie młodych egzemplarzy drzew oraz nieznacznego udziału Sorbus aucuparia i rodzaju Rubus, głównym gatunkiem miododajnym w podszyciu jest Frangula alnus (tab. 3). Krzewy jej od 1 do 2,5 m wysokości wytwarzają rokrocznie od 170 do 11 850 kwiatów. Z rodzaju Rubus rośnie tu głównie Rubus saxatilis, R. hirtus i R. suberectus. Pierwszego gatunku nie objęto badaniami, ponieważ kwiaty jego prawie nie wydzielają nektaru. Pozostałych przedstawicieli potraktowano jako jeden gatutnek zbiorowy — Rubus sp. Pędy jeżyn na badanej powierzchni nie występują zbyt licznie. Większe pokrycie tworzą one wzdłuż dróg leśnych i na skrajach boru. Pod zwartym drzewostanem nie tylko rośnie ich mniej, ale również słabiej kwitną. Sorbus aucuparia mimo, że w warstwie krzewów stanowi mały udział, to jednak obfite kwiaty w jego baldachogronach dają w sumie wysokie
strona 62średnie (tab. 3). Także Cytisus nigricans chociaż w głębi boru pojawia się sporadycznie, jednak w miejscach widnych, na zrębach i brzegach lasu wytwarza na powierzchni 1 m2 około 300 kwiatów.
W runie boru mieszanego spotyka się różne rośliny miododajne. Wśród nich największy udział stanowi Vaccinium myrtillus. Wysokość jej krzewinek zależy tu od tego, czy rosną one w rozproszeniu, czy też tworzą
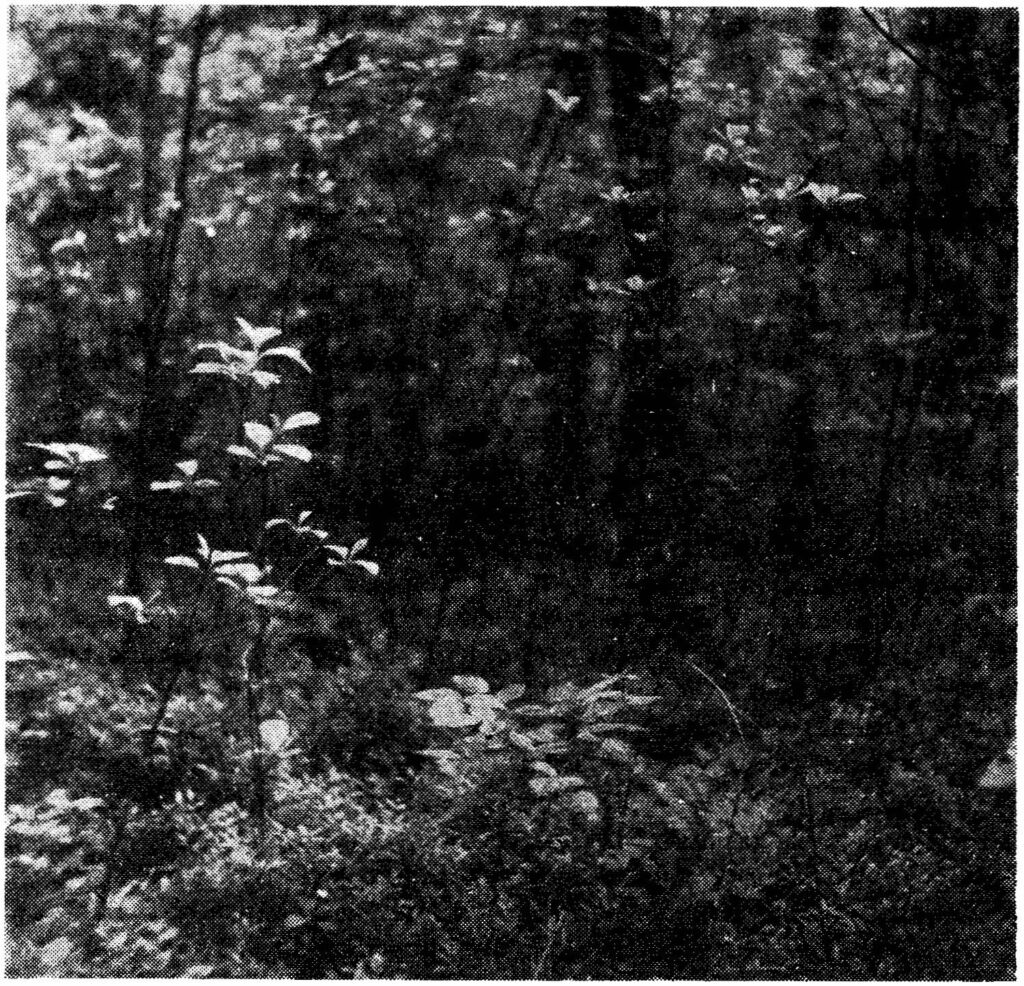
zwarte kępy. Liczba kwiatów na pędach jest w tym siedlisku stosunkowo mała i bardzo zmienna. Najmniej kwiatów wytworzyły krzewinki w borze mieszanym w 1969 roku. Przyczyną były między innymi silne wiosenne przymrozki, które spowodowały wymarznięcie nie tylko pąków kwiatowych, ale miejscami nawet całych pędów. W pierwszym roku badań w wielu rejonach kraju zbiory owoców Vaccinium myrtillus zupełnie zawiodły.
strona 63Udział procentowy Melampyrum pratense w warstwie runa zależy w dużej mierze od typu borówczyska. Tam gdzie krzewinki Vaccinium myrtillus tworzą większe kępy, również Melampyrum pratense występuje liczniej. Jedna roślina wytwarza tu od 8 do 38 kwiatów.
Rodzaj Viola jest głównie reprezentowany przez Viola silvestris. Gatunek ten rośnie jednak bardzo nierównomiernie i stosunkowo nielicznie. Liczba kwiatów na pojedynczych okazach wynosi zaledwie od 3 do 5. Drugi gatunek z tego rodzaju — Viola riviniana pominięto w badaniach, ze względu na jego sporadyczny udział w runie tego boru.
Pulmonaria obscura nie jest gatunkiem charakterystycznym dla zbiorowiska borowego, dlatego jej udział w tym zespole jest bardzo niewielki, a pokrycie nierównomierne. Stąd też nie odgrywa ona poważniejszej roli pożytkowej w borze mieszanym sosnowo-dębowym. Warstwa mszysta jest słabo wykształcona, a wśród przedstawicieli przeważa Polytrichum formosum. Pod względem fitosocjologicznym zbiorowisko to odpowiada podzespołowi Pino-Quercetum serratuletosum.
III. Peucedano-Pinetum typicum Mat. 1962 — bór sosnowy świeży (ryc. 3) jest fragmentem rezerwatu Bukowa Góra na Roztoczu Środkowym. Znajduje się on w odległości 300 m od osady Zwierzyniec. Zajmuje szerokie obniżenie równinne pomiędzy ustalonymi i zalesionymi wydmami o glebie bielicowej, wytworzonej z piasku luźnego. Bardzo silne zakwaszenie występujące w górnych poziomach gleby maleje z głębokością odkrywki. W poszczególnych warstwach gleby analiza wykazała niewielkie ilości przyswajalnego potasu i fosforu oraz stwierdzono obecność grubej warstwy butwiny. Siedlisko oligotroficzne sprzyja wyłącznie gatunkom borowym. Widny drzewostan nie przekracza 30 m wysokości i tworzy go głównie Pinus silvestris. Abies alba i Picea excelsa, które stanowią domieszkę, nie osiągają górnego pułapu i wykształcają niższą warstwę drzew, nie przekraczającą 20 m.
W podroście sięgającym 5 m wysokości o małym zwarciu przeważa Pinus silvestris i Picea excelsa, mniejszy udział stanowi Quercus robur, Fagus silvatica i Abies alba, a sporadycznie spotyka się tu krzewy Sorbus aucuparia. Gatunek ten często sadzi się w czystych drzewostanach sosnowych i świerkowych w celu ich ochrony przed szkodnikami. W borze świeżym pochodził on właśnie ze sztucznych nasadzeń.
W równomiernie zwartym runie 90% udziału stanowi Vaccinium myrtillus. Jej krzewinki do 40 cm wysokości tworzą zwarte łany obficie kwitnące. W ciągu 3 lat zanotowano od 694 do 1483 kwiatów na 1 m2. Ten typ jagodzisk zalicza się do II kategorii baz czernicowych w Polsce.
Zimozielone krzewinki Vaccinium vitis-idaea w runie boru świeżego osiągają wysokość 20 cm i rosną w małych kępach lub pojedynczo. Mimo niewielkiego udziału w pokryciu, gatunek ten wytwarza na 1 m2 od 243 do 486 kwiatów.
strona 64Melampyrum pratense jako stała domieszka w borówczyskach wyjątkowo licznie rośnie i obficie kwitnie w tym zespole (tab. 3).
Poza pojedynczymi siewkami i podrostem Fagus silvatica nie stwierdzono w runie żadnych gatunków grądowych. W dobrze wykształconej warstwie mchów przeważają Entodon schreberi i Hylocomium splendens.
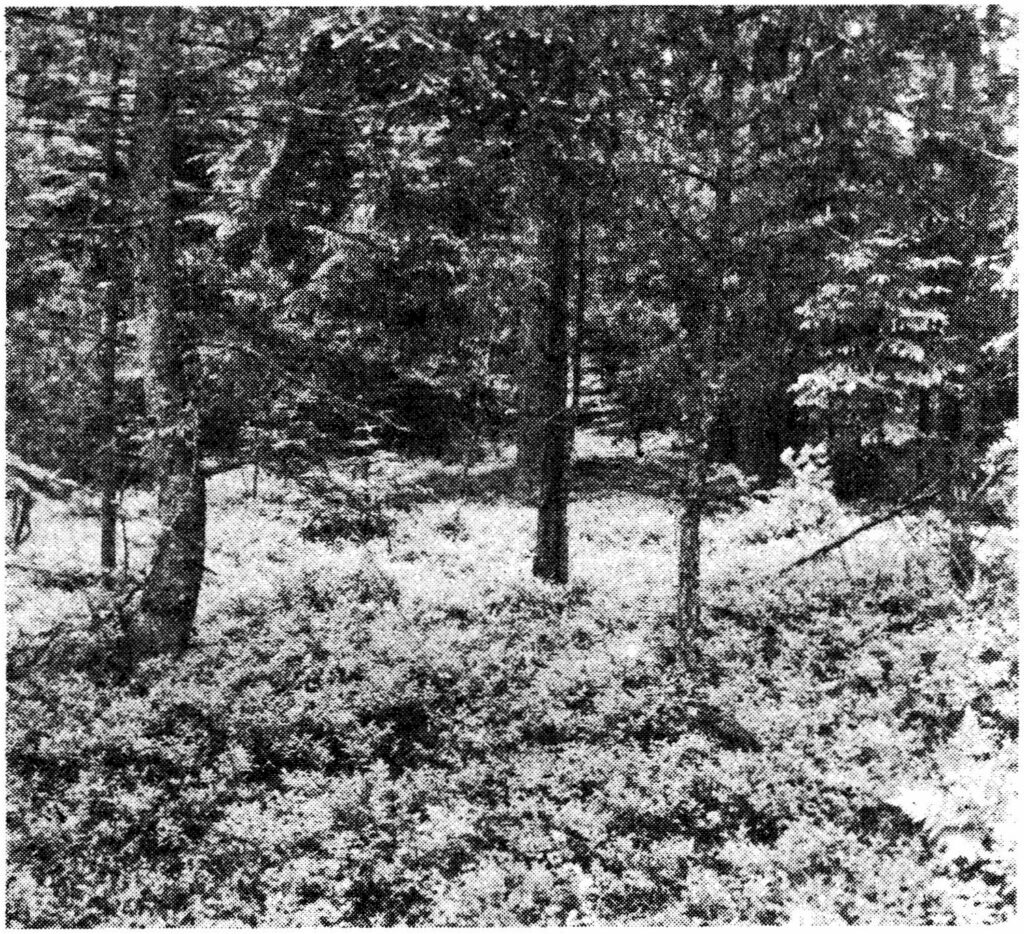
IV. Peucedano-Pinetum cladonietosum Mat. 1962 — bór sosnowy suchy, odmiana z Vaccinium vitis-idaea (ryc. 4) występuje w północnej części rezerwatu Bukowa Góra, w odległości 150 m od osady Zwierzyniec. Porasta on dolną i środkową część zbocza wysokiej do 12 m wydmy o nachyleniu 6°, ekspozycji E. Gleba silnie zbielicowana, wytworzona jest z piasku luźnego pochodzenia wydmowego. Sucha i kwaśna gleba nie sprzyja procesowi mineralizacji próchnicy. Siedlisko oligotroficzne, czego odbiciem jest mała ilość potasu i fosforu (tab. 2) oraz wyłączny udział gatunków borowych.
strona 65W widnym lesie sosnowym rozwinął się dobrze podrost. Tworzą go głównie młode egzemplarze Pinus silvestris i pojedynczo rosnące: Picea excelsa, Abies alba, Sorbus aucuparia, Betula verrucosa i Fagus silvatica.
W stosunkowo ubogim i kępiasto wykształconym runie przeważa Vaccinium vitis-idaea (tab. 3). Ze względu na duże płaty powierzchni pokryte przez ten gatunek, badany fragment leśny jest pewną odmianą boru suchego. Vaccinium vitis-idaea miejscami tworzy zwarte łany i na powierzchni
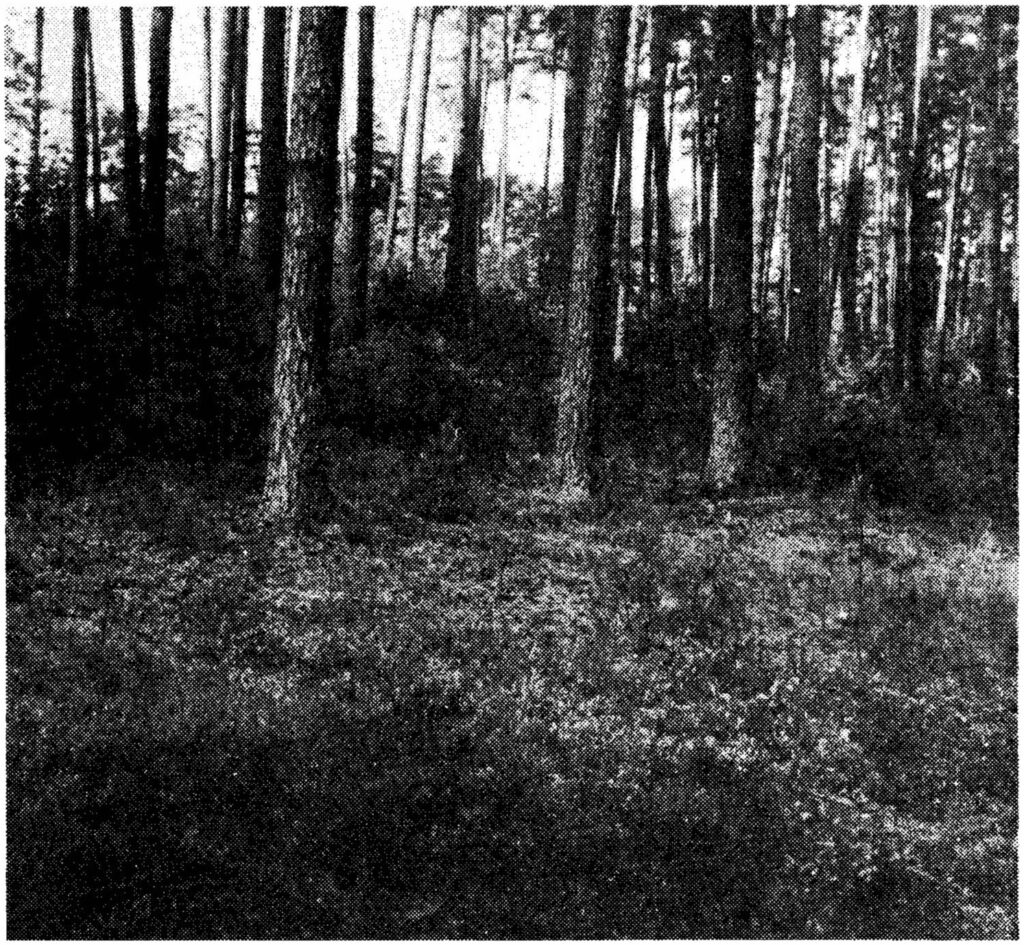
1 m2 wytwarza około 200 pędów nadziemnych. W zespole tym wysokość krzewinek waha się od 5 do 20 cm i rokrocznie charakteryzują się one dużą liczbą kwiatów.
Drugie miejsce pod względem pokrycia przypada Vaccinium myrtillus. Pędy jej są tu bardzo drobne i dorastają zaledwie do 20 cm wysokości. Kwitną one słabo i rosną w rozproszeniu lub tworzą jagodziska typu drobnokępowego.
Melampyrum pratense z uwagi na bardzo słabo wykształcone borówczyska
strona 66czernicowe występuje w borze suchym bardzo nielicznie. Również krzewinki Calluna vulgaris nie tworzą tu dużego zwarcia i są stosunkowo niskie (tab. 3).
Na dość suchym podłożu i przy dużym dostępie światła do dna lasu rozwinęła się dobrze warstwa mchów, złożona przede wszystkim z Leucobryum glaucum, Entodon schreberi i Dicranum scoparium.
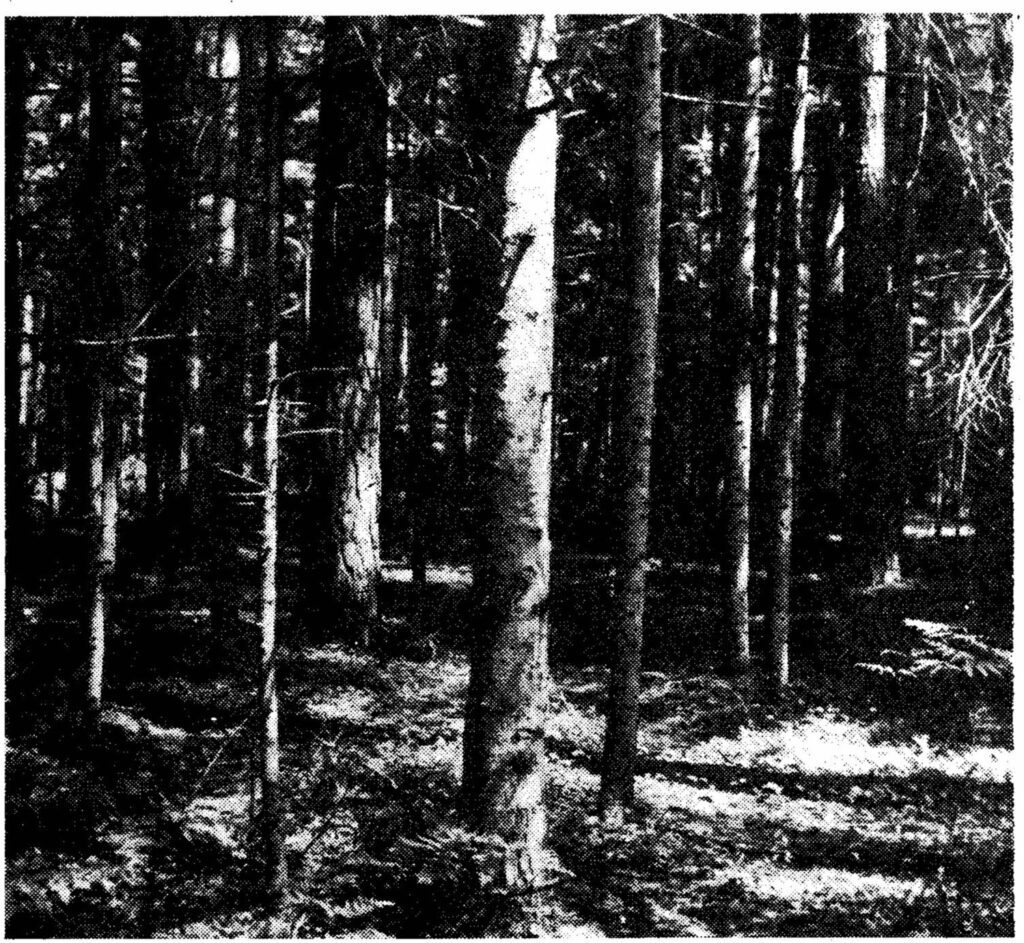
V. Abietetum polonicum Dziub. 1928 — bór jodłowy (ryc. 5) leży w odległości 400 m na S od osady Zwierzyniec i zajmuje dolną część zbocza Bukowej Góry, o ekspozycji NE. Bór ten rośnie na glebie bielicowej, wytworzonej z piasku luźnego. Najsilniejsze zakwaszenie stwierdzono w warstwach górnych gleby. Zawartość przyswajalnego potasu i fosforu jest w zasadzie niewielka (tab. 3). Siedlisko umiarkowanie wilgotne, słabo mezotroficzne. Glebę użyźniają składniki pokarmowe, zwalniane w dość szybko przebiegającej tu mineralizacji próchnicy, co sprzyja wegetacji pojedynczych roślin grądowych.
strona 67Najwyższą warstwę drzew tworzy w 70% Abies alba, sięgająca 42 m wysokości. Dolny pułap obejmuje drzewa od 18 do 25 m wysokości są to: Pinus silvestris, Fagus silvatica i Picea excelsa. Cały drzewostan wykazuje zwarcie 0,8 i powoduje dość duże zacienienie dna lasu, a przeciskające się przez korony drzew promienie słoneczne prawie całkowicie pochłania warstwa krzewów.
W podszyciu do 5 m wysokości przeważają głównie gatunki iglaste. Z liściastych w niewielkiej ilości występuje Fagus silvatica i Sorbus aucuparia.
W silnie ocienionych partiach boru runo nie wykształca się wcale. Spotyka się tu pojedynczo rośliny grądowe, z których najczęstszym przedstawicielem jest Galeobdolon luteum. Ze względu na licznie wytwarzane kwiaty i nektar dostępny dla pszczół, gatunek ten może mieć znaczenie w ogólnej wydajności miodowej całego zbiorowiska. Viola silvestris jest drugim gatunkiem rośliny, który występuje w borze tym sporadycznie. Przewagę mają jednak rośliny borowe, z których stale ale bardzo nierównomiernie rośnie Vaccinium myrtillus. Tworzy ona drobne kępy o słabym stopniu zwarcia. Kwiaty na poszczególnych pędach są nieliczne i bardzo drobne.
Duże ocienienie i wilgotność podłoża sprzyja rozwojowi warstwy mszystej.
PRZEBIEG KWITNIENIA ROŚLIN MIODODAJNYCH W BADANYCH ZESPOŁACH LEŚNYCH
We wszystkich zespołach borowych kwitnienie głównych roślin miododajnych przypadało na maj i czerwiec. Rozkład okresów kwitnienia poszczególnych gatunków miał nieco inny charakter w zależności od warunków środowiska (ryc. 6).
Stosunkowo najkrócej i prawie równocześnie kwitły rośliny nektarodajne w borze jodłowym (Abietetum polonicum). Cały pożytek trwał tu przeciętnie jeden miesiąc — głównie maj. Wczesne zakwitanie i szybkie prżekwitanie roślin było w tym zespole uzależnione od ilości światła docierającego przez wysoki i zwarty drzewostan do dna lasu. Rośliny runa kwitły zanim rozwinęły się liście buka, który stanowił domieszkę zarówno w warstwie drzew jak i krzewów.
W badanym borze suchym (Peucedano-Pinetum cladonietosum) okres pożytkowy był najbardziej rozciągnięty w porównaniu do innych asocjacji. Rozpoczynał się on pod koniec kwietnia, a kończył w połowie września. W sumie przez cztery miesiące rośliny w tym zespole były dla pszczół źródłem nektaru.
Kwitnienie roślin miododajnych w borze sosnowym świeżym (Peucedano-Pinetum typicum) trwało przeciętnie trzy miesiące. Zazębianie się
strona 68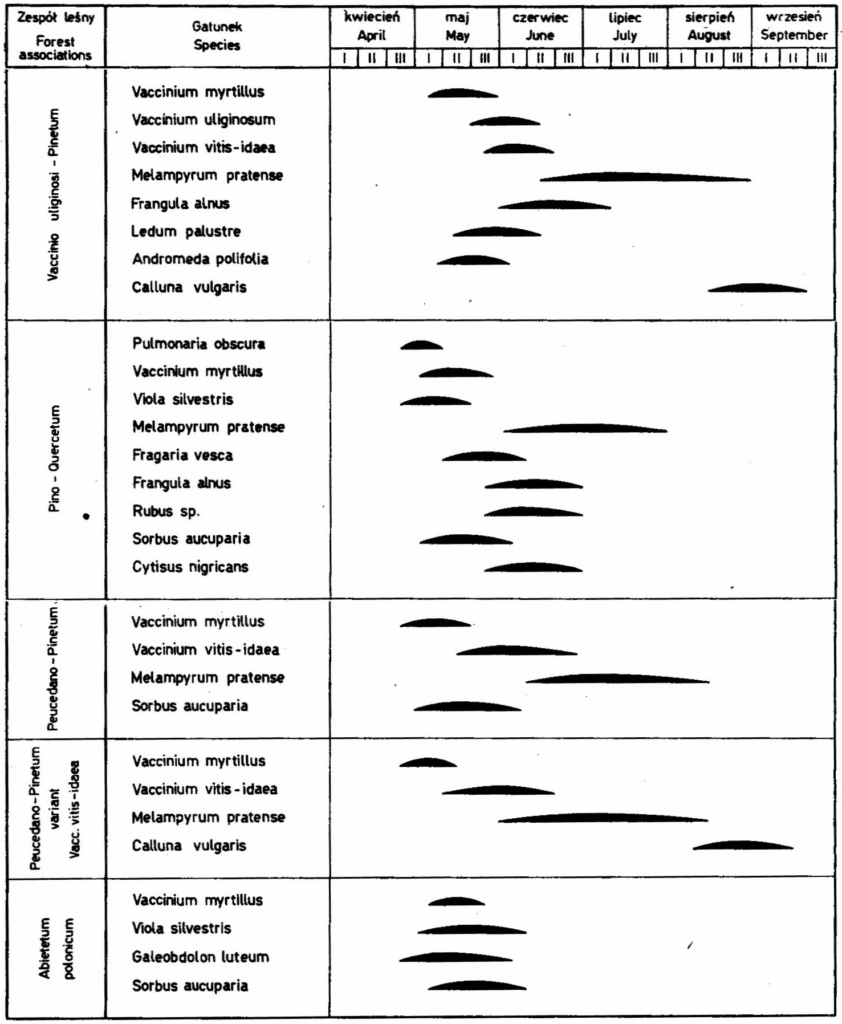
okresów kwitnienia Vaccinium myrtillus, V. sitis-idaea i Melampyrum pratense przebiegało bardzo podobnie jak w borze suchym. Jedynie w maju pożytek pszczeli był wzbogacony przez nektarowanie kwiatów Sorbus aucuparia, a skrócony z powodu nieobecności w runie Calluna vulgaris.
Najbardziej różnorodny pożytek nektarowy i podobnie rozłożone okresy kwitnienia roślin jak w borze świeżym występowały w borze mieszanym (Pino-Quercetum) i bagiennym (Vaccinio uliginosi-Pinetum). Przeciętnie w obu zespołach od 10 maja do 15 czerwca kwitło 6—7 gatunków. O tej porze roku jedne z nich były w fazie zakwitania, inne w pełni kwitnienia lub już przekwitania. Dzięki temu prawie przez cały maj i czerwiec pszczoły miały zapewnioną dobrą i niezawodną bazę nektarową. W borze bagiennym jeszcze pod koniec lata (15.VIII—20.IX) kwitły krzewinki Calluna vulgaris, które dostarczały cennego w tym okresie dla pszczół nektaru. W borze mieszanym sosnowo-dębowym kwitnienie roślin nektarodajnych rozpoczynało się dużo wcześniej niż w borze bagiennym i kończyło się przeciętnie 30 czerwca. Wprawdzie w lipcu kwitło tu jeszcze obficie dość dużo okazów Melampyrum pratense, ale kwiaty jego były już mniej atrakcyjne dla pszczół.
Z roślin miododajnych jedynie Vaccinium myrtillus wystąpiła we wszystkich badanych zespołach. Przebieg kwitnienia tego gatunku w zależności od siedliska leśnego nieco się różnił. Na ogół najwcześniej borówka czarna zakwitała w borze świeżym i suchym, kilka dni później w borze sosnowo-dębowym, a najpóźniej w borze bagiennym i jodłowym. Okres kwitnienia Vaccinium myrtillus był natomiast najkrótszy w borze suchym i jodłowym (20 dni), najdłuższy w borze sosnowo-dębowym (26 dni), zaś w borze bagiennym i świeżym trwał przeciętnie 25 dni.
Poza Vaccinium myrtillus najliczniejszy udział w badanych zespołach stanowił zielony półpasożyt Melampyrum pratense. Nie wystąpił on jedynie w borze jodłowym. W przebiegu kwitnienia tego gatunku można również zaobserwować nieznaczne różnice w terminach i długości poszczególnych faz kwitnienia w zależności od rodzaju siedliska i typu borówczysk. Melampyrum pratense kwitł przeciętnie dwa miesiące, na co miała wpływ duża liczba pędów bocznych z licznymi stopniowo otwierającymi się pąkami.
Obserwując przebieg kwitnienia Vaccinium vitis-idaea na tle trzech różnych zespołów można wyraźnie stwierdzić różnice nie tylko w terminach jej zakwitania i przekwitania ale w długości całego okresu kwitnienia. W borze bagiennym borówka brusznica zakwitała bardzo późno i kwitła zaledwie 25 dni, zaś w borze świeżym i suchym kwitnienie jej trwało od 43 do 45 dni. W przypadku przebiegu kwitnienia Frangula alnus, Calluna vulgaris i Sorbus aucuparia w różnych siedliskach leśnych zaznaczyły się jedynie 2—3-dniowe wahania w długościach poszczególnych faz kwitnienia.
Procentowy udział pędów tego samego gatunku roślin w runie różnych
strona 70zespołów borowych, a zwłaszcza wytwarzana liczba kwiatów była uzależniona od warunków ekologicznych danego siedliska (ryc. 7). Najmniej kwiatów w stosunku do liczby pędów rosnących na 1 m2 powierzchni stwierdzono u Vaccinium myrtillus w borze sosnowym suchym i jodłowym. W borze bagiennym, sosnowym mieszanym i świeżym natomiast stosunek procentowy udziału pędów i kwiatów tego gatunku był najbardziej podobny. W przypadku Vaccinium vitis-idaea w borze sosnowym suchym wystąpiło ciekawe zjawisko. Mimo sprzyjających warunków ekologicznych zaznaczyła się bardzo duża różnica między udziałem pędów i kwiatów na określonej powierzchni w tym zespole. Największe różnice
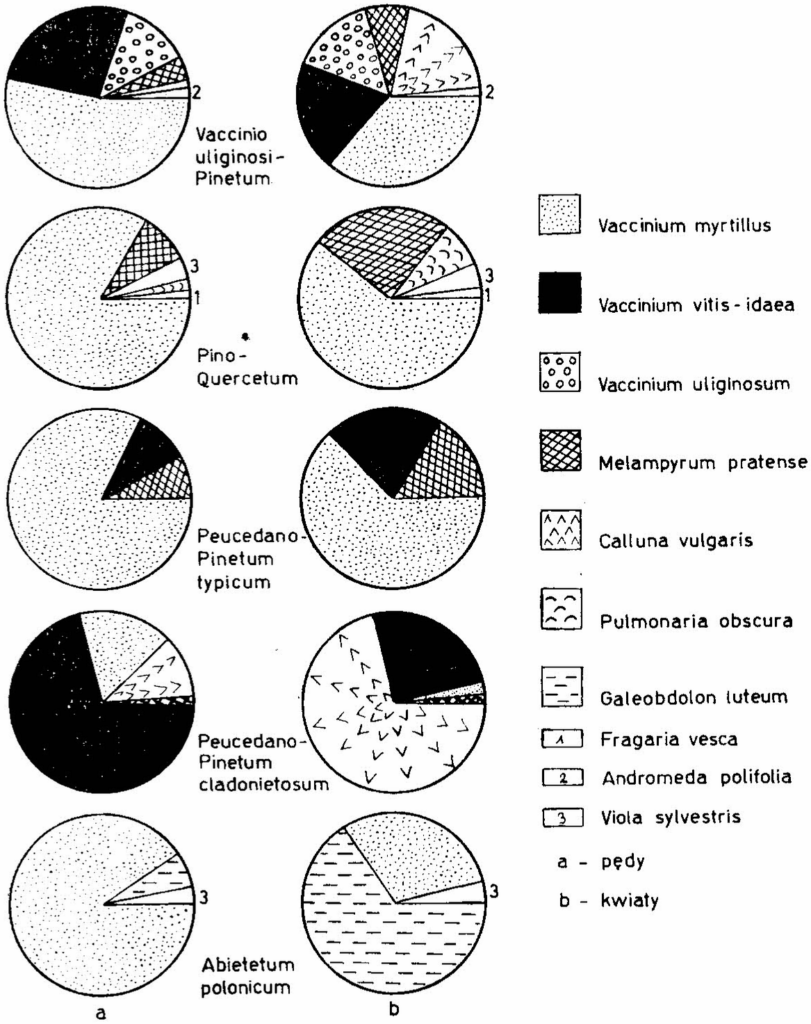
w stosunku procentowym pędów do kwiatów zaznaczyły się u Calluna vulgaris i Galeobdolon luteum. Fakt ten u obu tych gatunków wiąże się jednak nie z wpływem czynników edaficznych lecz z cechą genetyczną tych roślin.
NEKTAROWANIE ROŚLIN MIODODAJNYCH W BADANYCH ZESPOŁACH LEŚNYCH
Dane ogólne. W tabeli 4 zestawiono wyniki badań nad nektarowaniem roślin nieżależnie od wpływu warunków siedliska ani zmiennej pogody w ciągu 3 sezonów wegetacyjnych. Stąd też granica rozpiętości między wartością najmniejszą i największą danego gatunku rośliny jest bardzo duża. Należy dodać, że każda z tych skrajnych wielkości jest przeciętną z 30 prób pobranych jednego najlepszego lub najsłabszego dnia w ciągu 3 lat i pochodzi co najmniej z 300 lub 1500 kwiatów. Na średnią ogólną danego gatunku rośliny składają się natomiast wszystkie wyniki uzyskane w czasie badań z 11—54 tys. kwiatów.
Ze wszystkich roślin miododajnych objętych badaniami, najobficiej wydzielały nektar kwiaty Vaccinium myrtillus — średnio 46 mg z 10 kwiatów na dobę i Rubus sp. — 43 mg. Najsłabiej nektarowały kwiaty Calluna vulgaris, Fragaria vesca i Vaccinium vitis-idaea — poniżej 5 mg z 10 kwiatów na dobę. Nieco lepiej, bo ponad 5 mg nektaru (z 10 kwiatów na dobę) stwierdzono u Ledum palustre i Sorbus aucuparia. Większość badanych roślin wytwarzała od 15 do 30 mg nektaru z 10 kwiatów w ciągu 24 godzin.
Rośliny o kwiatach z odkrytymi nektarnikami i wydzielającymi małe ilości nektaru jak Calluna vulgaris, Fragaria vesca, Ledum palustre, Vaccinium vitis-idaea charakteryzowały się wysoką koncentracją cukrów w nektarze (około 45%). Rośliny o tkance miodnikowej odkrytej, ale obficie wydzielającej nektar np.: Vaccinium myrtillus i Rubus sp. wykazywały niższą procentową zawartość cukrów w nektarze od 20 do 30% (tab. 4).
Najwięcej cukrów (ponad 10 mg z 10 kwiatów na dobę) wydzielały kwiaty Cytisus nigricans i gatunki z rodzaju Rubus. Od 7 do 10 mg cukrów z 10 kwiatów na dobę wydzielały: Galeobdolon luteum, Frangula alnus, Melampyrum pratense i Vaccinium myrtillus, a od 5 do 7 mg: Andromeda polifolia i Pulmonaria obscura. Pozostałe gatunki można sklasyfikować jeszcze na dwie mniejsze grupy: o wartości cukrowej od 2 do 5 mg — Ledum palustre, Vaccinium uliginosum i Viola silvestris oraz od 1 do 2 mg — Calluna vulgaris, Fragaria vesca, Sorbus aucuparia i Vaccinium vitis-idaea (tab. 4).
Wpływ zespołu leśnego na nektarowanie roślin. Spośród badanych 15 gatunków roślin 7 z nich występowało więcej niż w jednym zespole leśnym, wobec czego możliwe było określenie wpływu różnych siedlisk borowych na ich nektarowanie (tab. 5). Okazało się, że kwiaty Calluna vulgaris, Frangula alnus, Sorbus aucuparia i Viola silvestris wydzielały na ogół po-
strona 72Tabela 4 Nektarowanie roślin miododajnych w środowisku leśnym w latach 1969—1971 Nectar secretion of the honey plants in the forest-environment in years 1969—1971
| Gatunek / Species | Ilość mg nektaru z 10 kw. wydzielona w ciągu doby / Quantity of nectar from 10 flowers per day, in mg: min.—max. | x̄ | % cukrów w nektarze / Percentage of sugers in nectar: min.—max. | x̄ | Ilość mg cukrów z 10 kw. wydzielona w ciągu doby / Quantitv of suger from 10 flowers per day, in mg: min.—max. | x̄ |
|---|---|---|---|---|---|---|
| Andromeda polifolia | 14—46 | 25,1 | 11—39 | 28,3 | 3,2—12,8 | 6,87 |
| Calluna vulgaris | 2— 6 | 3,7 | 31—59 | 47,2 | 0,9— 2,8 | 1,72 |
| Cytisus nigricans | 19—42 | 31,8 | 30—59 | 36,3 | 7,9—13,0 | 11,07 |
| Fragaria vesca | 2— 7 | 3,5 | 18—56 | 45,5 | 1,0— 2,3 | 1,43 |
| Frangula alnus | 6—39 | 18,0 | 22—62 | 44,5 | 3,7—12,0 | 7,63 |
| Galeobdolon luteum | 11—46 | 24,6 | 25—38 | 33,2 | 5,3—13,2 | 8,07 |
| Ledum palustre | 4— 5 | 4,8 | 19—62 | 44,2 | 1,5— 3,2 | 2,10 |
| Melampyrum pratense | 9—29 | 17,9 | 30—59 | 45,0 | 4,9—11,3 | 7,78 |
| Pulmonaria obscura | 10—31 | 20,8 | 25—41 | 32,3 | 3,4— 9,8 | 6,63 |
| Rubus sp. | 18—83 | 43,1 | 12—63 | 31,1 | 6,5—16,1 | 11,87 |
| Sorbus aucuparia | 1—11 | 4,6 | 15—35 | 24,6 | 0,4— 1,8 | 1,07 |
| Vaccinium myrtillus | 18—96 | 46,7 | 13—38 | 20,9 | 5,4—15,0 | 9,45 |
| Vaccinium uliginosum | 9—22 | 15,4 | 13—42 | 23,0 | 2,5— 4,4 | 3,33 |
| Vaccinium-vitis-idaea | 0— 8 | 3,5 | 21—80 | 46,6 | 0,7— 2,6 | 1,42 |
| Viola silvestris | 3—48 | 14,3 | 15—39 | 23,1 | 0,9— 7,3 | 2,92 |
dobne ilości nektaru niezależnie od rodzaju środowiska leśnego. Kwiaty natomiast Melampyrum pratense, Vaccinium myrtillus i V. vitis-idaea wytwarzały istotnie więcej nektaru w borze bagiennym (Vaccinio uliginosi – Pinetum) niż w pozostałych zespołach leśnych. Kwiaty Viola silvestris nieco więcej nektaru wydzielały w borze mieszanym (Pino-Quercetum) niż w jodłowym (Abietetum polonicum) ale nie w każdym roku (interakcja istotna). Należy również zwrócić uwagę, że niezależnie od cech morfologicznych kwiatu, rodzaju i zlokalizowania tkanki wydzielniczej wszystkie badane gatunki roślin charakteryzowały się zawsze większą ilością nektaru w kwiatach w środowisku boru bagiennego. Zjawisko to jest zupełnie zrozumiałe ze względu na specyficzne stosunki wodne w glebie oraz zawsze utrzymującą się wysoką wilgotność względną powietrza.
Wszystkie gatunki roślin wydzielały nektar o najniższej koncentracji w borze bagiennym. W przypadku Melampyrum pratense, Vaccinium myrtillus oraz V. vitis-idaea różnice zostały udowodnione statystycznie (tab. 5). Przykład ten potwierdza ogólnie obserwowane zjawisko korelacji ujemnej między ilością wydzielanego przez rośliny nektaru, a zawartością w nim cukrów. Najwyższą procentową zawartość cukrów osiągał na ogół nektar
strona 73Tabela 5 Nektarowanie roślin miododajnych w zależności od zespołu leśnego (średnie z lat 1969—1971) Secretion of nectar cf honey plants, in different forest association (average from the years of 1969—1971)
| Gatunek / Spcies | Zespół leśny / Forest association: I. | II. | III. | IV. | V. | Przedział ufności / Confidence interval risk of error 0,05 |
|---|---|---|---|---|---|---|
| Ilość nektaru z 10 kwiatów w mg na dobę / Quantity of the nectar from 10 flowers per day, in mg | ||||||
| Calluna vulgaris | 4,0 | — | — | 3,4 | — | 0,77 |
| Frangula alnus | 18,9 | 17,5 | — | — | — | 4,33 |
| Melampyrum pratense | 22,0 | 17,0 | 16,0 | 16,6 | — | 3,36 |
| Sorbus aucuparia | — | 4,3 | 5,0 | — | 4,6 | 1,74 |
| Vaccinium myrtillus | 65,0 | 35,7 | 45,8 | 46,0 | 41,0 | 12,53 |
| Vaccinium vitis-idaea | 4,3 | — | 3,3 | 2,8 | — | 1,06 |
| Viola silvestris | — | 15,9 | — | — | 12,7 | 5,27 |
| Procentowa zawartość cukrów w nektarze / Percentage of sugars in nectar | ||||||
| Calluna vulgaris | 46,30 | — | — | 48,03 | — | 3,45 |
| Frangula alnus | 41,92 | 47,05 | — | — | — | 6,83 |
| Melampyrum pratense | 39,51 | 47,12 | 45,67 | 47,83 | — | 6,74 |
| Sorbus aucuparia | — | 24,95 | 24,00 | — | 24,70 | 4,18 |
| Vaccinium myrtillus | 17,18 | 24,09 | 21,93 | 22,97 | 22,03 | 4,00 |
| Vaccinium vitis-idaea | 39,24 | — | 43,23 | 57,17 | — | 5,94 |
| Viola silvestris | — | 23,33 | — | — | 22,77 | 2,80 |
| Ilość cukrów z 10 kwiatów w mg na dobę / Quantity of sugar from 10 flowers per day, in mg | ||||||
| Calluna vulgaris | 1,82 | — | — | 1,61 | — | 0,31 |
| Frangula alnus | 7,41 | 7,86 | — | — | — | 1,23 |
| Melampyrum pratense | 8,44 | 7,81 | 7,06 | 7,80 | — | 0,97 |
| Sorbus aucuparia | — | 1,01 | 1,14 | — | 1,08 | 0,27 |
| Vaccinium myrtillus | 10,88 | 8,13 | 9,52 | 10,03 | 8,67 | 1,84 |
| Vaccinium vitis-idaea | 1,60 | — | 1,34 | 1,33 | — | 0,33 |
| Viola silvestris | — | 3,12 | — | — | 2,72 | 0,74 |
roślin w borze sosnowym suchym, co szczególnie wyraźnie zaznaczyło się w przypadku Vaccinium vitis-idaea. Na procentową zawartość cukrów w nektarze roślin w bardzo dużym stopniu wpływała wilgotność powietrza, a pośrednio także wilgotność gleby, która jest różna w poszczególnych zespołach leśnych. Największa była ona niewątpliwie w borze bagiennym i sosnowym świeżym, a najmniejsza w borze sosnowym suchym. Dużą rolę w tworzeniu specyficznego mikroklimatu w badanych zespołach leśnych
strona 74odgrywało runo. Tam gdzie wysokie i silnie rozgałęzione krzewinki Vaccinium myrtillus tworzyły zwarte łany, w dolnych partiach runa dłużej utrzymywała się wyższa wilgotność powietrza — zwłaszcza na wysokości pędów Vaccinium vitis-idaea. W borze sosnowym suchym natomiast, gdzie w runie borówka brusznica przeważała, były duże fragmenty piaszczystego dna lasu pozbawione nawet warstwy mszystej. Warunki nie tylko wilgotności powietrza, ale przede wszystkim gleby były w zespole tym dużo gorsze niż w borze świeżym, czy też w bagiennym.
Całokształt czynników klimatyczno-glebowych w danym zespole leśnym wpływał istotnie również na ilość cukrów zawartą w nektarze 10 kwiatów badanych roślin. Różnice pomiędzy zespołami wystąpiły w przypadku tej cechy jednak mniej wyraźnie niż w ilości nektaru i procentowej zawartości w nim cukrów (tab. 5). Jedynie wartość cukrowa Melampyrum pratense była istotnie wyższa w borze bagiennym w stosunku do boru suchego. W przypadku Vaccinium myrtillus była ona w borze bagiennym istotnie wyższa od uzyskanej w borze mieszanym i jodłowym, ale bardzo zbliżona do otrzymanej w borze sosnowym suchym i świeżym. Brak różnic w wartości cukrowej tego gatunku między skrajnie odmiennymi siedliskami, borem bagiennym i sosnowym suchym zasługuje na uwagę. Zjawisko to tłumaczy jednak fakt, że kwiaty Vaccinium myrtillus zawierały wprawdzie mniej nektaru w borze suchym, ale wykazywał on zawsze wyższą koncentrację cukrów.
Nektarowanie roślin w poszczególnych latach badań. Istotne różnice między latami w ilości wydzielanego nektaru stwierdzono u Andromeda polifolia, Calluna vulgaris, Galeobdolon luteum, Melampyrum pratense, Vaccinium myrtillus, V. vitis-idaea, V. uliginosum oraz Viola silvestris (tab. 6). Pozostałe gatunki nie wykazywały większego zróżnicowania w ciągu 3 lat badań. Interesujące, że układ warunków meteorologiczno-glebowych danego roku różnie wpływał na ilość wydzielanego nektaru przez kwiaty badanych roślin. Na przykład 11 gatunków wykazało albo minimalne albo maksymalne wydzielanie nektaru w suchym 1971 roku w stosunku do dwu lat poprzednich. Różnice natomiast w ilości wydzielanego nektaru przez kwiaty roślin tego samego gatunku w latach 1969 i 1970 nie były duże i nie dało się ich udowodnić statystycznie.
Czynniki pogody w kolejnych latach badań nie miały istotnego wpływu na koncentrację cukrów w nektarze 7 gatunków roślin (Andromeda polifolia, Fragaria vesca, Frangula alnus, Galeobdolon luteum, Melampyrum pratense, Rubus sp. i Viola silvestris) — tab. 6. Różnice istotne natomiast pod względem tej cechy wystąpiły między latami w nektarze Calluna vulgaris, Cytisus nigricans, Ledum palustre, Pulmonaria obscura, Sorbus aucuparia oraz u wszystkich gatunków z rodzaju Vaccinium. Najwyższą koncentrację cukrów w nektarze wykazały rośliny w suchym roku 1971. Wyjątek stanowiły tylko 3 gatunki (Frangula alnus, Pulmonaria obscura i Viola silvestris), których procent cukrów w nektarze był nieco niższy.
strona 75Tabela 6 Nektarowanie roślin miododajnych w zależności od roku badań (średnie z lat 1969—1971) Nectar secretion of honey plants in different years (average from the years of 1969—1971)
| Gatunek / Species | Ilość nektaru z 10 kwiatów w mg/dobę / Quantity of the nectar from 10 flowers per day, in mg — rok badań / year: 1969 | 1970 | 1971 | przedział ufności / confidence interval risk of error 0,05 | Procentowa zawartość cukrów w nektarze / Percentage of sugars in nectar — rok badań / year: 1969 | 1970 | 1971 | przedział ufności / confidence interval risk of error 0,05 | Ilość cukrów z 10 kwiatów w mg/dobę / Quantity of sugar from 10 flowers per day, in mg — rok badań / year: 1969 | 1970 | 1971 | przedział ufności / confidence interval risk of error 0,05 |
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Andromeda polifolia | 24,0 | 19,4 | 31,8 | 4,08 | 28,4 | 24,8 | 31,6 | 10,87 | 6,57 | 4,45 | 9,49 | 2,47 |
| Calluna vulgaris | 3,6 | 4,7 | 2,9 | 1,14 | 43,4 | 45,9 | 52,2 | 5,10 | 1,53 | 2,13 | 1,48 | 0,46 |
| Cytisus nigricans | 36,2 | 31,4 | 27,8 | 9,53 | 31,6 | 31,4 | 45,8 | 9,71 | 11,38 | 9,74 | 12,07 | 1,82 |
| Fragaria vesca | 3,6 | 4,0 | 2,8 | 1,75 | 52,8 | 36,4 | 47,2 | 20,48 | 1,83 | 1,29 | 1,18 | 0,39 |
| Frangula alnus | 17,6 | 15,0 | 21,5 | 6,40 | 47,6 | 43,0 | 42,8 | 10,09 | 8,12 | 5,92 | 8,85 | 1,82 |
| Galeobdolon luteum | 31,7 | 24,0 | 18,0 | 1249 | 32,5 | 33,8 | 34,8 | 4,84 | 10,01 | 8,03 | 6,17 | 3,52 |
| Ledum palustre | 4,6 | 4,8 | 5,0 | 0,56 | 30,1 | 47,9 | 54,5 | 14,59 | 1,35 | 2,29 | 2,71 | 0,62 |
| Melampyrum pratense | 18,0 | 19,4 | 16,3 | 2,64 | 44,9 | 43,8 | 46,4 | 5,30 | 7,75 | 8,19 | 7,39 | 0,76 |
| Pulmonaria obscura | 25,2 | 18,3 | 18,9 | 8,92 | 36,2 | 31,7 | 28,9 | 5,64 | 8,93 | 5,76 | 5,24 | 1,88 |
| Rubus sp. | 48,5 | 48,2 | 39,6 | 26,19 | 28,2 | 30,8 | 34,4 | 18,72 | 11,00 | 12,17 | 12,44 | 3,14 |
| Sorbus aucuparia | 4,2 | 4,8 | 4,8 | 1,74 | 22,5 | 23,8 | 27,3 | 4,18 | 0,91 | 1,04 | 1,28 | 0,27 |
| Vaccinium myrtillus | 51,0 | 48,6 | 40,6 | 8,29 | 19,4 | 19,7 | 23,5 | 2,65 | 10,23 | 9,15 | 8,96 | 1,22 |
| Vaccinium uliginosum | 18,2 | 17,0 | 11,0 | 4,08 | 15,5 | 18,4 | 37,8 | 3,61 | 2,79 | 3,05 | 4,13 | 0,46 |
| Vaccinium vitis-idaea | 4,8 | 3,2 | 2,4 | 1,06 | 37,5 | 45,5 | 56,6 | 5,98 | 1,70 | 1,40 | 1,17 | 0,33 |
| Viola silvestris | 12,0 | 11,0 | 19,7 | 7,80 | 23,4 | 24,5 | 21,2 | 4,14 | 2,52 | 2,58 | 3,65 | 1,10 |
Brak istotnej różnicy pod względem tej cechy w przypadku większości badanych roślin pozwala uznać ten rok za wyjątkowo sprzyjający dla utrzymywania się wysokiej koncentracji cukrów. W latach 1969 i 1970 czynniki pogody wpływały na ogół bardzo podobnie na tę cechę nektaru. Najniższa koncentracja cukrów w nektarze Ledum palustre, Vaccinium uliginosum i V. vitis-idaea w pierwszym roku badań wiązała się przede wszystkim z obfitymi opadami deszczu w okresie ich kwitnienia.
Poza gatunkami należącymi do rodzaju Rubus pozostałe rośliny miododajne wykazały istotne różnice w ilości cukrów wydzielanych przez nektarniki 10 kwiatów na dobę w kolejnych latach badań (tab. 6). Jedne gatunki roślin różniły się pod względem tej cechy między pierwszym a drugim rokiem badań oraz pierwszym a trzecim, inne między drugim a trzecim. Na przykład nektar Fragaria vesca, Galeobdolon luteum, Pulmonaria obscura, Vaccinium myrtillus i V. vitis-idaea zawierał maksymalną ilość cukrów w 1969 roku, a minimalną w 1971 roku. Odwrotne zjawisko wystąpiło w przypadku Andromeda polifolia, Ledum palustre, Sorbus aucuparia, Vaccinium uliginosum i Viola silvestris, których wartość cukrowa była najniższa w 1969 roku, a najwyższa w 1971. Pośrednie ilości cukrów w nektarze 11 gatunków roślin stwierdzono w 1970 roku. Wyjątkowo tylko Calluna vulgaris i Melampyrum pratense osiągnęły najwyższe wartości tej cechy, a najniższe natomiast Cytisus nigricans i Frangula alnus. Na wartość cukrową w 1971 roku decydujący wpływ miał układ czynników pogody zwłaszcza dla gatunków roślin kwitnących w maju i czerwcu. Panowały wówczas dłuższe okresy ulewnych deszczów lub wysokie temperatury i susza.
Wydajność miodowa roślin w różnych zespołach borowych. Ze względu na to, że wydajność miodowa roślin różniła się w okresie 3 lat badań, kolejność gatunków w tabeli 7 ustalono na podstawie sumy średnich z tych lat, poczynając od wartości najwyższej.
Z badanych zespołów leśnych najlepszy pod względem ilości pożytku okazał się bór bagienny (Vaccinio uliginosi-Pinetum). Ogólna jego wydajność miodowa wynosiła od 140 do 277 kg/ha. Należy zaznaczyć, że w 1970 roku była ona prawie dwukrotnie wyższa niż w roku 1969 i w ogóle najwyższa w stosunku do wydajności miodowej pozostałych badanych zespołów leśnych. W borze bagiennym głównie 5 gatunków decydowało o jego wysokiej wydajności miodowej: Vaccinium myrtillus, Ledum palustre, Frangula alnus, Melampyrum pratense i Vaccinium uliginosum. W 1970 roku większość roślin nektarodajnych w tym zespole osiągnęła najwyższą wydajność miodową, a Vaccinium myrtillus wyjątkowo wysoką nie tylko w stosunku do innych zespołów i lat, ale w ogóle spośród badanych gatunków roślin. Odwrotne zjawisko wystąpiło w 1971 roku, kiedy to wydajność miodowa tego gatunku była prawie 6-krotnie niższa w borze bagiennym niż w 1970 roku.
Drugie miejsce jako dobra baza nektarowa dla pszczół zajął bór mie-
strona 77Tabela 7 Wydajność miodowa badanych roślin w różnych zespołach leśnych w latach 1969—1971 Honey yield of the investigated plants in different forest association in the years 1969—1971
| Zespół leśny / Forest association | Gatunek / Species | Śr. wydajność w kg/ha / Average honey in kg/ha | Wydajność miodowa w kg/ha / Honey yield in kg/ha: 1699 | 1970 | 1971 | Przedział ufności / Confidence interval risk of error 0,05 |
|---|---|---|---|---|---|---|
| I. | Vaccinium myrtillus | 74,21 | 57,02 | 140,87 | 24,75 | 15,37 |
| Ledum palustre | 65,77 | 31,19 | 83,22 | 82,89 | 19,41 | |
| Frangula alnus | 30,47 | 33,18 | 19,96 | 38,27 | 20,55 | |
| Melampyrum pratense | 9,67 | 7,23 | 11,64 | 10,14 | 2,85 | |
| Vaccinium uliginosum | 6,98 | 5,55 | 8,00 | 7,38 | 1,05 | |
| Calluna vulgaris | 4,27 | 2,60 | 8,15 | 3,41 | 13,02 | |
| Vaccinium vitis-idaea | 3,99 | 3,39 | 5,27 | 2,86 | 2,97 | |
| Andromeda polifolia | 0,48 | 0,53 | 0,20 | 0,71 | 0,19 | |
| Ogółem | 196,28 | 140,69 | 277,76 | 170,41 | ||
| II. | Frangula alnus | 56,52 | 43,95 | 41,80 | 83,81 | 20,55 |
| Vaccinium myrtillus | 22,08 | 8,26 | 43,80 | 14,19 | 15,37 | |
| Melampyrum pratense | 14,29 | 10,33 | 15,85 | 16,69 | 2,85 | |
| Cytisus nigricans | 12,67 | 11,82 | 10,03 | 16,17 | 1,99 | |
| Rubus sp. | 11,95 | 7,92 | 19,10 | 8,83 | 3,59 | |
| Sorbus aucuparia | 5,85 | 4,34 | 5,49 | 7,73 | 6,16 | |
| Pulmonaria obscura | 1,85 | 2,51 | 1,47 | 1,57 | 0,54 | |
| Viola silvestris | 0,71 | 0,31 | 0,45 | 1,38 | 0,41 | |
| Fragaria vesca | 0,05 | 0,03 | 0,08 | 0,05 | 0,01 | |
| Ogółem | 125,99 | 89,47 | 138,07 | 150,42 | ||
| III. | Vaccinium myrtillus | 50,97 | 41,48 | 68,82 | 42,62 | 15,37 |
| Sorbus aucuparia | 14,41 | 9,64 | 15,14 | 18,45 | 6,16 | |
| Melampyrum pratense | 9,08 | 8,37 | 9,89 | 8,89 | 2,85 | |
| Vaccinium vitis-idaea | 2,32 | 1,60 | 3,31 | 2,06 | 2,97 | |
| Ogółem | 76,78 | 61,09 | 97,16 | 72,11 | ||
| IV. | Calluna vulgaris | 36,96 | 27,16 | 49,21 | 34,52 | 13,02 |
| Vaccinium myrtillus | 11,81 | 7,53 | 18,53 | 9,37 | 15,37 | |
| Vaccinium vitis-idaea | 10,80 | 12,26 | 14,75 | 5,40 | 2,97 | |
| Melampyrum pratense | 2,88 | 3,29 | 2,71 | 2,64 | 2,88 | |
| Ogółem | 62,46 | 50,24 | 85,20 | 51,93 | ||
| V. | Galeobdolon luteum | 19,24 | 16,29 | 25,87 | 15,56 | 8,17 |
| Vaccinium myrtillus | 12,19 | 11,39 | 17,56 | 7,62 | 15,37 | |
| Sorbus aucuparia | 5,05 | 3,93 | 6,48 | 4,75 | 6,16 | |
| Viola silvestris | 0,18 | 0,21 | 0,16 | 0,18 | 0,41 | |
| Ogółem | 36,66 | 31,82 | 50,07 | 28,11 |
szany sosnowo-dębowy (Pino-Quercetum). Jego wydajność miodowa w poszczególnych latach przewyższała pozostałe trzy zespoły i kształtowała się w granicach od 89 do 150 kg/ha. Z roślin miododajnych w borze sosnowo-dębowym najbardziej cennym i niezawodnym gatunkiem okazała się Frangula alnus. Jej wydajność miodowa w ciągu 3 lat wahała się od 41 do 84 kg/ha i wobec tego przewyższała ona prawie 6-krotnie wydajność miodową Vaccinium myrtillus w tym zespole w latach 1969 i 1971. Działo się tak dlatego, że wiosna 1969 roku była szczególnie niesprzyjająca wegetacji Vaccinium myrtillus. Przygruntowe przymrozki i gołoledź, jaka miała miejsce tego roku w kwietniu, była przyczyną nie tylko przemarznięcia pąków kwiatowych, ale całkowitego wyginięcia krzewinek na dużych fragmentach powierzchni leśnej, zwłaszcza w okolicach Wilkołaza. Przebieg pogody 1971 roku był również niezbyt sprzyjający kwitnieniu i nektarowaniu Vaccinium myrtillus. Nic więc dziwnego, że wydajność miodowa tego gatunku była bardzo niska w pierwszym i trzecim roku badań, natomiast w 1970 roku była równa wydajności Frangula alnus. Z innych roślin nektarodajnych w borze sosnowo-dębowym poważną rolę w jego ogólnej wydajności miodowej odegrały Melampyrum pratense, Cytisus nigricans oraz zbiorowo rodzaj Rubus. Każdy z wyżej wymienionych gatunków roślin w zależności od roku badań dostarczał przeciętnie od 8 do 19 kg surowca miodowego z 1 ha nie zredukowanej powierzchni tego zespołu.
Bór sosnowy świeży (Peucedano-Pinetum typicum) był siedliskiem najbardziej sprzyjającym dla nektarowania Vaccinium myrtillus. Jej wydajność miodowa niezbyt wysoka tu w stosunku do innych zespołów i mimo zmiennej pogody w 1969 i 1971 roku była bardzo wyrównana (41,5 i 42,6 kg/ha). W wydajności miodowej Vaccinium myrtillus nie wystąpiły w tym zespole tak duże różnice między latami jak w borze bagiennym, mieszanym czy też sosnowym suchym. Zatem, ten sam gatunek rośliny w zależności od typu zbiorowiska może różnie reagować na czynniki pogody w danym roku. Należy sądzić, że są takie lata, w których pogoda wybitnie sprzyja nektarowaniu pewnych gatunków roślin w określonych zespołach ze względu na ich specyficzne warunki siedliska. Powyższe przypuszczenie w pełni potwierdza udowodniona interakcja (gatunek × lata) w przypadku Melampyrum pratense, Vaccinium myrtillus i V. vitis-idaea, a w pewnej mierze także Sorbus aucuparia. Porównując wydajność miodową badanych roślin w borze sosnowym świeżym z wydajnością tych samych gatunków w innych zbiorowiskach borowych można łatwo dostrzec zależność pomiędzy typem siedliska a nektarowaniem występujących tam roślin. Ponadto ogólna wydajność miodowa uzyskana w tym zespole w ciągu 3 lat, różnych pod względem pogody, nie była wprawdzie zbyt wysoka, ale jej wahania kształtowały się w stosunkowo małych granicach od 61 do 97 kg/ha.
W borze sosnowym suchym (Peucedano-Pinetum cladonietosum) gatunkiem dominującym była Vaccinium vitis-idaea, a jednak o wydajności
strona 79miodowej tego zespołu zadecydował udział Calluna vulgaris oraz nielicznie występujące krzewinki Vaccinium myrtillus. Fakt, że najniższa wydajność miodowa (5,40 kg/ha) jaką Vaccinium vitis-idaea osiągnęła w tym zespole w 1970 roku, była równocześnie najwyższą w stosunku do innych typów boru, świadczy o wybitnie sprzyjających warunkach edaficznych dla tego gatunku. Ogólna wydajność miodowa boru suchego kształtowała się w kolejnych latach od 50 do 85 kg/ha, była więc niższa od poprzednio omówionych zbiorowisk leśnych.
Bór jodłowy (Abietetum polonicum) jako baza nektarowa dla pszczół jest najmniej atrakcyjny. Wprawdzie wydajność miodowa Vaccinium myrtillus w borze tym była bardzo zbliżona do uzyskanej w borze sosnowym suchym, to jednak ogólna wartość pożytkowa całego zespołu okazała się niższa od 28 do 50 kg/ha surowca miodowego. Galeobdolon luteum, który w zespole tym był gatunkiem wyjątkowo występującym, wykazał jednak najwyższą wartość jako roślina miododajna ze względu na obfite kwitnienie pojedynczych okazów oraz dobre nektarowanie.
DYSKUSJA
W literaturze brak jest danych, z którymi można by porównać wydajność miodową roślin leśnych czy też całych zbiorowisk. Ocena natomiast zespołów roślinnych pod względem pożytku tylko na podstawie ilości nektaru jak to uczynił Kulijew (1952) nie jest miarodajna, ze względu na ogromne wahania w koncentracji cukrów, jakie zachodzą pod wpływem różnych czynników środowiska i pogody. Wobec tego w pracy tej nie podano wydajności nektaru z 1 ha powierzchni danego boru ale jego wydajność miodową. Uwzględniono również w odróżnieniu od pracy Kulijewa badania fitosocjologiczne i ekologiczno-glebowe zespołów leśnych. Analizując nektarowanie tego samego gatunku rośliny na tle różnych właściwości ekologicznych siedliska uchwycono korelację pomiędzy typami lasów a ich wydajnością miodową. Charakterystyka więc wartości pożytkowej roślin dla potrzeb pszczelarstwa bez uwzględnienia typu zbiorowiska roślinnego jest niekiedy mało prawdopodobna, szczególnie w przypadku dużych i zróżnicowanych pod względem siedliskowym obszarów. Stąd też podawana przez Demianowiczową (1953), Lipińskiego (1958) oraz Ostrowską i Żukowskiego (1967) wydajność miodowa w oparciu o dane ZSRR jest często nieporównywalna z wynikami uzyskanymi w warunkach Polski. Należy jednak zaznaczyć, że niektóre wyniki są bardzo zbliżone do danych radzieckich. Dotyczy to wydajności miodowej Frangula alnus otrzymanej w warunkach naszego kraju, która w Polsce w borze bagiennym w 1969 i 1971 roku była prawie taka sama jak w ZSRR (Głuchow 1950). W borze mieszanym sosnowo-dębowym była ona już dużo wyższa niż w Związku Radzieckim. Wydajność miodowa natomiast Calluna vulgaris określona
strona 80przez Głuchowa okazała się w Polsce w borze suchym prawie 10-krotnie niższa, a zupełnie nieporównywalna z wydajnością w borze bagiennym. Główną przyczyną tego był mały udział Calluna vulgaris w runie obu badanych zespołów leśnych. Cytowana również przez Ostrowską i Żukowskiego (1967) wydajność miodowa — 18,0 kg/ha dla Sorbus aucuparia, jako wynik otrzymany w ZSRR, jest identyczna tylko w jednym roku 1971, w borze świeżym.
Z pięciu zespołów borowych jedynie bór jodłowy (Abietetum polonicum) okazał się najmniej wartościową bazą nektarową dla pszczół. Wybrano go jednak do badań celowo, aby stwierdzić czy można liczyć na pożytek nektarowy w przypadku, gdy zawiedzie spadziowanie jodły i czy warto jest wywozić pasieki pod koniec kwietnia, jeszcze przed rozpoczęciem pożytku spadziowego.
Stałym gatunkiem miododajnym, który wystąpił we wszystkich typach boru jest Vaccinium myrtillus. Jej udział w runie najczęściej decydował o wartości pożytkowej całego zespołu leśnego. Wydajność miodowa Vaccinium myrtillus od 24 do 140 kg/ha uzyskana w borze bagiennym jest najbardziej zbliżona do określonej wcześniej (od 30 do 130 kg/ha) w borze sosnowym wilgotnym (Szklanowska 1968a, b).
Łączna wydajność miodowa gatunków z rodzaju Rubus obliczona dla zespołu Pino-Quercetum w latach 1969—1971 w pełni potwierdza występowanie zjawiska przemiennego kwitnienia, na które już uprzednio zwrócono uwagę (Szklanowska 1972b). W pewnym stopniu duże wahania w wydajności miodowej Ledum palustre, Galeobdolon luteum i gatunków z rodzaju Vaccinium można również tłumaczyć zmienną liczbą kwiatów w poszczególnych latach.
Badane fragmenty borów nie wykazują różnic florystyczno-ekologicznych ze zbiorowiskami tego typu opracowanymi na Roztoczu przez Izdebskiego (1959, 1962, 1963). Wobec tego potwierdza to słuszność wyboru badanych zespołów leśnych jako najbardziej typowych wśród borów województwa lubelskiego.
PODSUMOWANIE WYNIKÓW I WNIOSKI
- Największa liczba gatunków miododajnych występowała w borze mieszanym (Pino-Quercetum) i w bagiennym (Vaccinio uliginosi-Pinetum). Każdy z trzech pozostałych zespołów leśnych charaketryzował się zaledwie czterema gatunkami nektarodajnymi.
- Vaccinium myrtillus wchodziła w skład runa wszystkich zbiorowisk borowych i poza borem sosnowym suchym (Peucedano-Pinetum cladonietosum) była zawsze gatunkiem dominującym.
- Kwitnienie roślin miododajnych w borach na Lubelszczyźnie przypada na miesiąc maj i czerwiec. Główny pożytek trwa przeciętnie od 10.V
do 20.VI i w tym czasie zazębiają się okresy kwitnienia wszystkich nektarodajnych gatunków borowych. W przypadku dużego udziału w runie Calluna vulgaris drugi pożytek (późnego lata) rozpoczyna się około 10.VIII i przedłuża do 30.IX.
- Wpływ czynników meteorologicznych na proces nektarowania roślin uzależniony był od specyficznych warunków siedliska i najbardziej zaznaczył się w suchym i upalnym 1971 roku w borze bagiennym (Vaccinio uliginosi-Pinetum) i w borze sosnowym suchym (Peucedano-Pinetum cladonietosum).
- Największe ilości nektaru niezależnie od typu boru wydzielały zawsze kwiaty Vaccinium myrtillus i gatunki z rodzaju Rubus, zaś najmniejsze Calluna vulgaris, Fragaria vesca, Ledum palustre, Sorbus aucuparia i Vaccinium vitis-idaea.
- Nektar o najwyższej koncentracji cukrów wydzielały zawsze gatunki roślin w borze suchym (Peucedano-Pinetum cladonietosum) i w mieszanym (Pino-Quercetum), natomiast o najniższej w borze bagiennym (Vaccinio uliginosi-Pinetum).
- Istotne różnice w wartości cukrowej w poszczególnych latach badań stwierdzono tylko w nektarze Vaccinium myrtillus, Melampyrum pratense, Cytisus nigricans i Frangula alnus.
- Najlepszy pod względem wydajności miodowej z badanych asocjacji borowych okazał się zespół boru bagiennego (Vaccinio uliginosi-Pinetum) i boru mieszanego (Pino-Quercetum). Znacznie niższą wydajność ale najbardziej zbliżoną wykazały zbiorowiska roślinne boru sosnowego świeżego (Peucedano-Pinetum typicum) i boru suchego (Peucedano-Pinetum cladonietosum). Bór jodłowy (Abietetum polonicum) jako baza nektarowa dla pszczół okazał się najmniej wartościowy. W zbiorowiskach tego typu należy liczyć głównie na pożytek spadziowy.
Składam serdeczne podziękowanie Pani Profesor Doktor Zofii Demianowicz z Akademii Rolniczej w Lublinie za udzielenie mi cennych wskazówek w czasie opracowywania wyników z dziedziny botaniki pszczelarskiej, a Panu Profesorowi Doktorowi Krystynowi Izdebskiemu z Uniwersytetu MCS w Lublinie za ukierunkowanie badań fitosocjologicznych.
LITERATURA
Andrejew W. N.: (1926) — Pylca sobierajemaja pczołami. Charków.
Beutler R., Schöntag A.: (1940) — Über die Nektarabscheidung einiger Nutzpflanzen. Z. f. vergleich. Physiol., 28.
Błagowieszczenskij B. B.: (1955) — Dikorastuszczije miedonosnyje rastienija Uljanowskoj obłasti. Uljanowsk.
strona 82Braun-Blanquet J.: (1951) — Pflanzensoziologie, 2 Aufl. Wien.
Chałubińska A., Wilgat T.: (1959) — Podział fizjograficzny województwa lubelskiego. Przewodnik V Ogólnopolskiego Zjazdu PTG, Lublin.
Demianowicz Z.: (1953) — Rośliny miododajne. PWRiL, Warszawa.
Demianowicz Z. i inni: (1960) — Wydajność miodowa ważniejszych roślin miododajnych w warunkach Polski (cz. I). Pszczeln. Zesz. Nauk. 4 (2) 87—104.
Głuchow M. M.: (1950) — Miedonosnyje rastienija. Moskwa.
Gubin A. F.: (1948) — Pczełowodstwo — praca zbiorowa. Sielchozgiz. Moskwa.
Gumiński R.: (1950) — Ważniejsze elementy klimatu rolniczego Polski południowo-wschodniej (1881—1930). Wiadomości Służby Hydrolog.-Meteorolog., Tom III, zesz. 1. PIHM. Warszawa.
Haragsim O.: (1970) — Spadź i pszczoły. PWRiL Warszawa.
Izdebski K.: (1959) — Badania geobotaniczne w rezerwacie leśnym na Bukowej Górze pod Zwierzyńcem. Ochr. Przyrody. Rocznik XXVI, Kraków.
Izdebski K.: (1962) — Bory na Roztoczu Środkowym. Annales UMCS, Sec. C, vol. XVII, 10 (1962) Lublin.
Izdebski K.: (1963) — Zbiorowiska leśne na Roztoczu Środkowym. Uogólnienie i uzupełnienie. Acta Soc. Bot. vol. XXXII, nr 2.
Kartaszowa N. N.: (1952) — Miedonosnyje i piergonosnyje rastienija Tomskoj obłasti i puti razwitia pczełowodstwa. Trudy Tomskowo Gosudarstwien. Uniwiersitieta im. W. W. Kujbyszewa. Tom 117.
Kulijew A. M.: (1952) — Zadaczi izuczienija miedonosnych i piergonosnych rastienij. Moskwa — Leningrad.
Lipiński M.: (1958) — Pożytki pszczele. PWRiL. Warszawa.
Matuszkiewicz W.: (1950) — Badania fitosocjologiczne nad lasami bukowymi w Sudetach. Ann. UMCS, sec. C. suppl. V. Lublin.
Matuszkiewicz W.: (1967) — Przegląd systematyczny zbiorowisk roślinnych Polski (w:) A. Scamoni: Wstęp do fitosocjologii praktycznej. PWRiL, Warszawa, 175—229.
Motyka J.: (1947) — O celach i metodach badań geobotanicznych. Ann. UMCS, sec. C, suppl. I, Lublin.
Ostrowska W., Żukowski R.: (1967) —Pszczelarstwo na Białostocczyźnie. PWRiL Warszawa.
Szafer W., Kulczyński St., Pawłowski B.: (1953) — Rośliny polskie. PWN Warszawa.
Szalkiewicz K.: (1925) — Podręcznik do poznawania i hodowli roślin miododajnych. Księgarnia Józefa Zawadzkiego. Wilno.
Szklanowska K.: (1966) — Watrość pszczelarska kruszyny. Pszczelarstwo nr 9.
Szklanowska K.: (1968a) — Borówka czernica cenne źródło pożytku nektarowego. Pszczelarstwo nr 4.
Szklanowska K.: (1968b) — Borówka brusznica i borówka bagienna. Pszczelarstwo nr 9.
Szklanowska K.: (1972a) — Pożytki nektarowe runa leśnego pięciu zespołów borowych. Ref. XI. Nauk. Konferencja Pszczelarska. Puławy.
Szklanowska K.: (1972b) — Nektarowanie i wydajność miodowa maliny właściwej (Rubus idaeus L.) oraz jeżyn (Rubus fruticosus L.) w środowisku leśnym. Pszczeln. Zesz. Nauk., Tom XVI.
Talijew W. I.: (1927) — Naucznyje uczenija o miedonosach. Wyd. S, Gosud. — Izdatielstwo (Bibłotieka Prakticzeskowo Pczełowodstwa).
Wiszniewski W.: (1953) — Atlas opadów atmosferycznych w Polsce (1891—1930). Warszawa 1953.
strona 83БОРЫ КАК ПЧЕЛИНАЯ МЕДОНОСНАЯ БАЗА
Казимера Шкляновска
Резюме
Целью работы было определение нектаровыделения важнейших медоносных растений лесного покрова и мелколесья в лесной среде и сравнение их медоносной ценности в пяти самых частых лесных сообществах на Люблинщине: Vaccinio uliginosi-Pinetum, Pino-Quercetum, Peucedano-Pinetum typicum, P.-Pinetum cladonietosum wariant z Vaccinium vitis-idaea i Abietetum polonicum.
Из растительных совокупностей, объятых исследованиями, лишь Pino-Quercetum является частью лесного комплекса на Люблинской возвышенности; четыре остальных являются фрагментами натуральных лесов Центрального Розточа.
Геоботаническая оценка опиралась на фитосоциологических съемках (таб. 2) и почвенно-экологических исследованиях (таб. 3). В отдельных борах были основаны экспериментальные площадки, величиной в 100 м2, разделенные на квадраты 1 × 1 м. В каждой совокупности на избранных по жребию 10 квадратах подсчитывались ежегодно растения и цветы, а с 10 других брался нектар для анализ. В опытах учитывались медоносные растения с цветками, выделяющими нектар, доступный пчелам, и в таких количествах, что можно было брать его пипетками типа Яблонского по методу Демянович (1960).
Из 15 видов медоносных растений, объятых исследованиями, в избранных совокупностях доминировали: Vaccinium myrtillus, V. vitis-idaea и V. uliginosum а также Melampyrum pratense. Меньшую систематическую ценность показали характеристические виды класса Oxcocco-Sphagnetea, Ledum palustre и Andromeda polifolia. Наибольшее количество медоносных видов (от 8 до 9) выступало в совокупности Pino-Quercetum и Vaccinio uliginosi-Pinetum. Каждую из 3 остальных лесных совокупностей характеризовали лишь 4 нектароносных вида (таб. 4). Из медоносных растений, объятых исследованиями, только Vaccinium myrtillus входила в состав лесного покрова всех лесных сообществ и кроме совокупности P.-Pinetum cladonietosum была всегда доминирующим видом.
Цветение нектароносных видов в борах на Люблинщине приходится на месяцы май и июнь. Главный медосбор продолжается тут в среднем с 10 мая по 20 июня. В то время наслаиваются сроки цветения всех лесных медоносных видов. В случае большого участия в лесном покрове Calluna vulgaris второй медосбор (позднего лета) начинается около 10 августа и продолжается по 15 сентября (рис. 6).
В лесной среде наибольшие количества нектара (от 2 до 9 мг с 1 цветка в сутки) выделяли кустики Vaccinium myrtillus и виды рода Rubus; меньшие (от 1,5 до 3 мг) — Andromeda polifolia, Cytisus nigricans, Frangula alnus, Galeodbolon luteum, Melampyrum pratense, Pulmonaria obscura и Vaccinium uliginosum, а наименьшие (меньше 0,5 мг) — Calluna vulgaris, Fragaria vesca, Ledum palustre, Sorbus aucuparia и Vaccinium vitis-idaea (таб. 5). Констатировалось, что на количество выделяемого нектара имело существенное влияние развития погоды в данном году. Притом следует подчеркнуть, что те же самые метеорологические факторы в одних совокупностях влияли положительно на нектаровыделение некоторых видов, а в других же отрицательно в связи со специфическими условиями места произрастания (таб. 6 и 9).
Наивысшим абсолютным содержанием сахаров в нектаре и почти не подвергавшимся колебаниям характеризовались виды ежевики (Rubus sp.), а столь же хорошо выделяющие нектар Vaccinium myrtillus, Cytisus nigricans, Melampyrum pratense
strona 84и Frangula alnus показывали существенные разницы в сахарной ценности между отдельными годами (табл. II).
Из 5 лесных ассоциаций наивысшую медопродуктивность показала совокупность Vaccinio uliginosi-Pinetum (140—270 кг/га) и Pino-Quercetum (89—150 кг/га). Медопродуктивность совокупности Peucedano-Pinetum typicum и P.-Pinetum cladonietosum оказалось намного ниже; в общем в течение 3 лет вращалась в пределах 50—100 кг/га. Совокупность Abietetum polonicum представляла наименьшую ценность как нектарная база для пчел (табл. 12 и 13). В лесистых окрестностях, где в главном выступает этот тип бора, можно рассчитывать прежде всего на падевый медосбор.
FOREST ASSOCIATIONS AS THE HONEY YIELD BASIS FOR BEES
Kazimiera Szklanowska
Summary
The aim of this work was to determine the nectar secretion of some more important honey plants of the herb and shrub layers in a forest environment and to compare their honey productivity in five forest associations most frequenthy encountered in the Lublin district, i.e. Vaccinio uliginosi-Pinetum, Pino-Quercetum, Peucedano-Pinetum typicum, Peucedano-Pinetum cladonietosum variant with Vaccinium vitis-idaea and Abietetum polonicum.
Among the forest associations investigated, only Pino-Quercetum is part of forest areas of the Lublin Highland, the four remaining are fragments of the natural forests of Middle Rostocze.
The geobotanical estimation of the associations investigated was based on phytosociological photoes (Table 2), on the soil investigations and on the ecological research (Table 3). The experimental surfaces were established in the individual forest associations. Each surface of 100 square meters was divided into 1-meter squares. Plants and flowers were counted in each association from 10 squares chosen by lot each year, and nectar was collected from ten others. Honey plants with flowers secreting nectar to which bees had easy access, and in such quantities that it could be easily collected using a pipette of Jabłonski’s type according to Demianowicz’s method were taken into account.
Vaccinium myrtillus, V. vitis-idaea, V. uliginosum and Melampyrum pratense had a dominant share among the 15 species of honey plants which underwent investigation.
The characteristic species of the Oxycoco-Sphagnetea; Ledum palustre and Andromeda polifolia displayed a smaller systematic value. The greatest number of species of honey plants (from 8 to 9) ocurred in the associations Pino-Quercetum and Vaccinio uliginosi-Pinetum. Every of the remaining forest associations was characterised by only four nectar — secreting species (Table 4). Among the plants investigated, Vaccinium myrtillus was the only honey plant which was part of the herb layer of all the forest associations and with the exception of the association Peucedano-Pinetum cladonietosum, it was always the dominant species.
Blooming of nectar — secreting species occurs is forests of the Lublin district in May and June. The main period of nectar flow lasts, on the average, from the 10 of May to the 20 of June. The blooming periods of all nectar — secreting species are interrelated at this time. In the case of a great share of Calluna vulgaris in the
strona 85herb layer, the second period of nectar flow begins about the 10th of August and lasts until the 15th of September (late summer) (Fig. 6).
In the forest association the greatest amounts of nectar (from 2 to 9 mg) from one flower per 24 hours were secreted by Vaccinium myrtillus and the species belonging to Rubus, while the amounts of nectar secreted from Andromeda polifolia, Cytisus nigricans, Frangula alnus, Galeobdolon luteum, Melampyrum pratense, Pulmonaria obscura and Vaccinium uliginosum were smaller (from 1,5 to 3 mg). The smallest amounts of nectar (less than 0,5 mg) were secreted from Calluna vulgaris, Fragaria vesca, Ledum palustre, Sorbus aucuparia i Vaccinium vitis-idaea (Table 5). It was ascertained that the weather in a given year had a significant influence on the amount of nectar secreted. It should be emphasized that the same meteorological factors had a positive influence on the nectar secretion of some species, while it had a negative one on the others because of specific conditions of habitat (Table 6 and 9).
The rasberry species (Rubus sp.) were characterized by the highest absolute sugar — content in the nectar which almost fluctuated, whereas equally well — secreting nectar Vaccinium myrtillus, Cytisus nigricans, Melampyrum pratense and Frangula alnus showed significant differences in the sugar value between the years (Table 11).
Vaccinio uliginosi-Pinetum (140—270 kg/ha) and Pino-Quercetum typicum (89 — 150 kg/ha) showed the hig hest honey yield among the five forest associations. The honey yield of Peucedano-Pinetum typicum and Peucedano-Pinetum cladonietosum was much lower. It generally ran within the limits of 50 to 100 kg/ha. The associotion Abietetum polonicum has the lowest value (Table 12 and 13) as a nectar basis for bees. In the forest regions where mainly this type of forest occurs we may count first of all on the honey dew flow.
Errata — błędy druku znalezione podczas digitalizacji
- s. 52: „uwżględniając” → uwzględniając
- s. 52: „Vaccinio-Picetalia” → Vaccinio-Piceetalia
- s. 52: „Vaccinio-Piceion Br.-1938″ → Vaccinio-Piceion Br.-Bl. 1938
- s. 55, tab. 1: „monthley” → monthly
- s. 57, podpis ryc. 1: „Bór gabienny” → Bór bagienny
- s. 58, tab. 2: „vary-fine sandy soil” → very-fine sandy soil
- s. 59: „porcentowy” → procentowy
- s. 59, tab. 3: „heigt” → height
- s. 59–60, tab. 3: „hight” → height
- s. 60, tab. 3: „Fr quency” → Frequency
- s. 61: „Diciranum undulatum” → Dicranum undulatum
- s. 61: „gatutnek” → gatunek
- s. 66: „(tab. 3)” → (tab. 2)
- s. 67: „prżekwitanie” → przekwitanie
- s. 69: „V. sitis-idaea” → V. vitis-idaea
- s. 71: „nieżależnie” → niezależnie
- s. 72, tab. 4: „Vaccinium-vitis-idaea” → Vaccinium vitis-idaea
- s. 72, tab. 4: „sugers” → sugars
- s. 72, tab. 4: „Quantitv of suger” → Quantity of sugar
- s. 73, tab. 5: „Spcies” → Species
- s. 73, tab. 5: „cf honey plants” → of honey plants
- s. 77, tab. 7: „1699″ → 1969
- s. 77, tab. 7, zespół I, Calluna vulgaris, średnia: „4,27″ → 4,72
- s. 77, tab. 7, zespół III, Melampyrum pratense, 1971: „8,89″ → 8,98
- s. 80: „charaketryzował” → charakteryzował
- s. 82, literatura: „Watrość pszczelarska kruszyny” → Wartość pszczelarska kruszyny
- s. 83, streszczenie: „Oxcocco-Sphagnetea” → Oxycocco-Sphagnetea
- s. 83, streszczenie: „Galeodbolon” → Galeobdolon
- s. 83, streszczenie: „для анализ” → для анализа
- s. 84, summary: „frequenthy” → frequently
- s. 84, summary: „Oxycoco-Sphagnetea” → Oxycocco-Sphagnetea
- s. 84, summary: „ocurred” → occurred
- s. 84, summary: „occurs is forests” → occurs in forests
- s. 85, summary: „aucuparia i Vaccinium” → aucuparia and Vaccinium
- s. 85, summary: „rasberry” → raspberry
- s. 85, summary: „hig hest” → highest
- s. 85, summary: „associotion” → association