

BADANIA CYTOCHEMICZNE NAD JELITEM ŚRODKOWYM PSZCZÓŁ ROBOTNIC ZDROWYCH, ZAKAŻONYCH PASOŻYTEM NOSEMA APIS ZANDER ORAZ ZAKAŻONYCH I PODDANYCH LECZENIU PREPARATEM FUMAGILLIN DCH.
tekst: Aleksandra Hartwig
Pszczelnicze Zeszyty Naukowe, Rok XIV, 1970 — Aleksandra Hartwig
strona 75PSZCZELNICZE ZESZYTY NAUKOWE ROK XIV, NR 1-2-3 GRUDZIEŃ 1970
Aleksandra Hartwig
Zakład Chorób Owadów Użytkowych SGGW
WSTĘP I PRZEGLĄD LITERATURY
Choroba zarodnikowcowa pszczół (nozematoza) jest najczęściej spotykaną chorobą w pasiekach. W ostatnich latach obserwuje się wyraźny wzrost liczby pasiek opanowanych tą chorobą. Przyczyną tego stanu rzeczy jest kupowanie pszczół bez uprzedniego ustalenia stanu ich zdrowia oraz stosowanie wędrownej gospodarki pasiecznej.
W walce z chorobami pszczół zwalczanie choroby zarodnikowcowej stało się zagadnieniem pierwszoplanowym (Kirkor 1962).
Według danych z terenu samego tylko województwa warszawskiego na ogólną liczbę zbadanych w 1966 roku 4904 próbek (1 próbka zawiera 30—60 pszczół pobranych z każdego roju) w 1182 przypadkach stwierdzono chorobę zarodnikowcową, z czego wynika, że zakażenie wynosi około 24% badanych rojów (A. Hartwig, dane niepublikowane).
Choroba zarodnikowcowa wywołana jest przez pierwotniaka Nosema apis Zander (Stefański, 1963). Pasożyt ten rozwija się w nabłonku jelita środkowego pszczoły, natomiast poza organizmem gospodarza występuje jedynie w postaci zarodników. Kiedy zarodniki znajdą się w świetle jelita środkowego pszczoły (Bailey, 1955) opuszczają otoczkę i przyjmują postać amebowatą nazywaną planontem i posiadają wić. Planonty przedostają się do wnętrza komórek nabłonka jelita środkowego, tu drogą podziałów powstają z nich meronty, które dzieląc się w szybkim czasie, wypełniają całą cytoplazmę zaatakowanych komórek. Pogarsza to tak znacznie warunki bytowania pasożytów, że powoduje rozpoczęcie okresu tworzenia zarodników. Z merontów rozwijają się tak zwane sporonty.
Praca ta jest dysertacją doktorską Autorki.
strona 76Te ostatnie dzielą się na sporoblasty a następnie na młode spory, wyróżniające się posiadaniem charakterystycznych wodniczek. Młode spory z czasem przekształcają się w dojrzałe zarodniki (Trappmann, 1926). Rozwój pasożytów uzależniony jest od temperatury. Może on odbywać się w temperaturze od +10°C do +38°C, optymalna temperatura wynosi około 31°C (Połtiew, 1964, Schulz-Langer 1958).
Na skutek działania pasożytów procesy trawienia i przyswajania pobieranego pokarmu są u zakażonej pszczoły znacznie upośledzone. Osłabione i niedożywione pszczoły pobierają coraz większe ilości pożywienia, nie mając jednocześnie możliwości prawidłowego strawienia i przyswojenia go. Dochodzi do przepełnienia jelita środkowego i odbytnicy, a następnie do wystąpienia biegunki. Wydalany kał, zawierający liczne zarodniki oraz niestrawione cukry, jest zlizywany przez inne pszczoły, na skutek czego dochodzi do zakażenia nowych osobników roju. Jak wykazały badania Bailey’a (1959), plastry pozostające przez kilka lat w ulu, szczególnie zabrudzone odchodami chorych pszczół, stanowią stałe źródło zakażenia.
Okres życia zakażonych pszczół jest prawie dwa razy krótszy (Poteikina, 1960) od okresu życia pszczół zdrowych, co naturalnie odbija się na pracy roju. Według Kiriakowej (1949) ilość wydzielonego wosku w rojach chorych na chorobę zarodnikowcową zmniejsza się o około 25%, a zbiór miodu o około 40% w stosunku do produkcji w rojach zdrowych. Również okres wydzielania mleczka pszczelego jest znacznie skrócony (Hassanein, 1951) czego konsekwencją jest półtorakrotne zmniejszenie ilości wyhodowanego czerwiu w chorych rojach w porównaniu z rojami zdrowymi (Poteikina, 1960).
Pyłek kwiatowy stanowi podstawowe pożywienie białkowe pszczół, konieczne do wydzielania przez nie mleczka. Hirschfelder 1964 r. wykazał, że odżywianie pyłkiem kwiatowym pszczół zakażonych nosemą przedłuża okres ich życia. Inni badacze (Steche 1961, Gontarski, D. Mebs 1964) stwierdzili jednak, że tego typu dieta powoduje również szybszy rozwój pasożyta. U pszczół zakażonych nosemą nie tylko okres wydzielania mleczka jest skrócony, ale także jego produkcja jest wręcz szkodliwa dla ogólnego stanu roju. Örosi Päl (1966) zaobserwował bowiem, że zjadanie mleczka przez zakażone pszczoły przyspiesza rozwój zarodników nosemy, co w efekcie prowadzi do zwiększenia stopnia zakażenia.
Walka z chorobą zarodnikowcową w pasiece jest trudna. Nozematoza jest chorobą sezonową, o największym nasileniu objawów w okresie marca i kwietnia (Hanko, 1964). Na przebieg i rozprzestrzenianie choroby mają duży wpływ warunki klimatyczne. Znaczne ilości opadów w poprzednim sezonie pszczelarskim powodują pozostawanie pszczół w ulach, co zwiększa możliwość wzajemnego zakażania i wpływa na nasilenie objawów choroby w roku następnym (Kaeser 1956, Hirschfelder,
strona 771959). Duży wpływ na rozwój choroby ma także liczebność roju, tak zwana siła roju. Jeffree i Allen (1956) stwierdzili szczególnie dużą śmiertelność u pszczół zimujących zarówno w rojach zakażonych bardzo małych, jak i bardzo licznych. W tym ostatnim przypadku spowodowane jest to prawdopodobnie temperaturą panującą wewnątrz zimującego kłębu, która jest wyższa, niż w rojach o średniej liczebności owadów. Z prac cytowanych już uprzednio wiadomo, że podwyższenie temperatury jest czynnikiem sprzyjającym szybszemu rozwojowi pasożytów.
Jedną z metod stosowanych przy nowoczesnej gospodarce pasiecznej, stanowiącą podstawę otrzymania większego dochodu z pasieki, jest przewożenie pszczół na odległe pożytki. Okazało się jednak, że w przypadku rojów chorych ten sposób gospodarki ma znaczny wpływ na rozszerzenie infekcji nie tylko na roje okoliczne, ale także w obrębie tego samego ula. Wykazano, że niepokojenie pszczół przez transporty i częste przeglądy, powodują oddawanie kału wewnątrz ula przez chore pszczoły, co zwiększa możliwość zakażenia znajdujących się tam osobników jeszcze zdrowych (Doull 1962, Bailey 1955).
Od dawna pracowano nad sposobami leczenia pszczół chorych na chorobę zarodnikowcową. Główną trudność stanowiło oczywiście wynalezienie środka odpowiednio wybiórczego, który działając szkodliwie na pasożyty nie miałby ujemnego wpływu na organizm pszczoły. Do zwalczania nozematozy stosowano takie leki, jak na przykład Nosemack, preparat wyprodukowany w 1954 roku przez Gontarskiego i Wagnera. Jest to pochodna kwasu salicylowego, tak zwany mertiolat. Nosemack stosuje się razem z syropem do podkarmiania pszczół w stężeniu 1 : 40 000. Wartość leczniczą preparatu określano jednak różnie: według Blatz’a (1955) jest to dobry środek leczniczy, natomiast Połtiew (1957) uważa, że jest toksyczny dla pszczół. Stosowanie Nosemacku w Polsce nie zdało egzaminu (Niemczuk, 1964). Pszczelarze-praktycy z ZSRR do leczenia zakażonych rojów stosowali z dobrym skutkiem takie środki, jak: urotropina (1 g na litr syropu) Czerepow, 1962, olejki anyżowy i eukaliptusowy (1 g na litr syropu) Połtiew, 1957. W ostatnich latach najszersze zastosowanie przy zwalczaniu choroby zarodnikowcowej znajdują preparaty zawierające antybiotyk Fumagillin. Zaliczany do nich Fumidil B produkcji Aboot (Szwajcaria) i Fumagillin DCH produkcji Chinoin (Węgry).
Antybiotyk Fumagillin został wyizolowany z hodowli grzybka Aspergillus fumigatus przez Handsona i Eble w 1949 roku. Fumagillin jest słabym, nierozpuszczalnym w wodzie kwasem o wzorze sumarycznym C27H34-36O7. W lecznictwie stosuje się rozpuszczalne w wodzie sole Fumagilliny (Szemiakin, 1961).
Wykazano, że antybiotyk ten hamuje rozwój wirusów bakteryjnych, bakteriofagów i ameb. Mills (1955) stwierdził, że antybiotyk działa jedynie w okresie namnażania się faga w komórce, a nie obserwował działania
strona 78tego związku na fagi wolne. Inni badacze, jak Max C. Mc Cowen, Maurice E. Callender i J. F. Lewis (1951) stwierdzili, że Fumagillina hamuje rozwój Entomoeba histolytica in vitro oraz in vivo u doświadczalnie zakażanych szczurów i królików. J. H. Killough, G. B. Magill i R. C. Smith (1952) zastosowali Fumagillinę do leczenie dezynterii u ludzi wywołanej przez Entomoeba histolytica. Po podaniu 50 mg dawki dziennej preparatu u 22 ludzi chorych na amebiazę, stwierdzono pozytywne działanie leku bez ubocznego działania toksycznego.
H. Katznelson i C. A. Jamieson w 1952 roku po raz pierwszy zastosowali Fumagillinę do leczenia choroby zarodnikowcowej u pszczół. Stwierdzili oni, że podawanie pszczołom roztworu sacharozy z dodatkiem zarodników nosemy i Fumagilliny znacznie zmniejszyło procent padłych pszczół w porównaniu z owadami kontrolnymi zakażanymi pasożytami bez jednoczesnego podania antybiotyku.
Preparaty firmowe Fumidil B i Fumagillin DCH według zaleceń producentów należy podawać chorym rojom rozpuszczone już w syropie, w proporcji 1 mg antybiotyku na 50 ml syropu. Przy czym jednorazowo należy podać 0,5 l syropu. W przypadku, gdy zależy na szybkim leczeniu roju, pszczołom należy podawać dwukrotnie, w odstępie 48 godzin zwiększoną porcję leku 0,75 l syropu, o stężeniu antybiotyku 1 mg na 30 ml syropu. Syrop powinno się nie tylko podawać pszczołom w podkarmiaczce, lecz również spryskiwać nim wnętrze ula, jak i ramki wraz z obsiadającymi je pszczołami.
Działanie lecznicze preparatów zostało potwierdzone przez wielu autorów (Bailey, 1953/1955, Kunst 1966, Połtiew 1957, Daniłko 1961, Kulikow 1960/1961, Furgala 1962, Mommers 1957, Gochnauer 1962, Niemczuk 1964). Z naszych badań prowadzonych na terenie województwa warszawskiego wynika, że zarówno preparat Fumidil B jak i Fumagillin DCH posiadają wyraźnie właściwości lecznicze.
Jednakże należy dodać, że nawet przy długotrwałym, 2—3 tygodniowym stosowaniu tych preparatów nie obserwowano całkowitego zlikwidowania infekcji. Zdarzało się, że po okresie 1—2 lat spotykano nawroty choroby (A. Hartwig). Pomimo wieloletniego stosowania antybiotyku Fumagillina mechanizm działania tego leku nie jest dokładnie znany. W dostępnej literaturze nie znaleziono prac zajmujących się bliżej zagadnieniem wpływu podawanego leku na komórki nabłonka jelita środkowego pszczół chorych, jak również wpływu tego leku na komórki pasożyta. Wydało się zatem celowe, prześledzenie obrazów cytofizjologicznych komórek nabłonka jelita środkowego pszczół, ze szczególnym uwzględnieniem wpływu wymienionego leku na te komórki jak i wpływu na komórki pasożyta oraz prześledzenie ewentualnych zmian.
Do obserwacji takich nadają się, szeroko stosowane w badaniach morfologii tkanek owadzich, metody cytochemiczne (Day 1949, Bielańska-Osuchowska 1959/1960; Przełęcka 1962, Boehm 1964)
strona 79i metody autoradiograficzne (Przełęcka i Dutkowski 1965, Przełęcka 1966).
Jako wykładnik aktywności fizjologicznej badanych komórek przyjęto aktywność występujących w nich niektórych enzymów z grupy hydrolaz oraz lokalizację i intensywność syntezy kwasów nukleinowych.
MATERIAŁ I METODY
Obiektem badań były pszczoły robotnice Apis mellifica (L) pobierane w ciągu całego roku z pni wolnych od choroby zarodnikowcowej.
Pszczoły w ilości około 100 sztuk umieszczono we wkładkach do ulików weselnych typu Zandera i przetrzymywano w termostacie o temp. około 30°C. Dla utrzymania odpowiedniej wilgotności do termostatu wstawiono naczynie z wodą.
Utworzono następujące grupy pszczół:
- pszczoły zakażane przez żywienie ich w ciągu 6—12 dni wodnym roztworem sacharozy z dodatkiem zawiesiny zarodników nosemy;
- pszczoły zakażone (po 6 dniach żywienia roztworem wodnym sacharozy z zarodnikami nosemy) żywiono przez okres 6—12 dni wodnym roztworem sacharozy z dodatkiem preparatu Fumagillin DCH produkcji Chinoin Budapeszt;
- pszczoły zdrowe normalnie karmione;
- pszczoły zdrowe żywione przez okres 6 dni wodnym roztworem sacharozy z dodatkiem preparatu Fumagillin DCH.
Zawiesinę zarodników nosemy, służącą do zakażenia, przygotowano przez roztarcie odwłoków chorych pszczół w wodzie wodociągowej (30 odwłoków na 10 ml wody). Otrzymaną zawiesinę sączono przez gazę, następnie przesącz wirowano przez 5 minut przy 3 tys. obrotów na wirówce Typ WE 1. Osad czyszczono przez zmieszanie z wodą i odwirowanie. Czynność tę powtarzano kilkakrotnie, zlewając płyn znad osadu i uzupełniając wodą do poprzedniej objętości. Tak oczyszczony osad składający się w głównej mierze z zarodników nosemy, zawieszono w 50% roztworze sacharozy w stosunku 1 : 10.
Wodny roztwór sacharozy z dodatkiem preparatu Fumagillin DCH przygotowano w następujący sposób: 200 mg preparatu Fumagillin DCH rozpuszczono w niewielkiej ilości wody wodociągowej, przygotowano wodny roztwór sacharozy w stosunku 1 : 1, roztworem sacharozy dopełniono cylinder z preparatem do 100 ml. Tak przygotowany roztwór sacharozy przetrzymywano w lodówce w temperaturze 4°C. Roztworem tym karmiono pszczoły codziennie w ilości 20 ml na ulik.
Z obserwacji Kalinowskiego (1964) wiadomo, że pszczoły zimujące w starych długo czerwionych plastrach i pozbawione pożywienia białkowego wyjadają z komórek plastra pozostałe po czerwiu oprzędy.
strona 80Chcąc tego uniknąć, roztwory cukru podawano pszczołom w kawałku nieczerwionego plastra.
W celu zwiększenia dawek pożywienia, pszczołom umożliwiano oblot w pomieszczeniu zamkniętym. W czasie oblotu pszczoły mogły oczyścić się z kału. Wpływało to korzystnie na przedłużenie życia pszczół, szczególnie u osobników zakażonych, u których występowała biegunka.
Preparowanie jelita: pszczołom obcinano głowy, a następnie dwoma pincetami przytrzymywano owada za tułów i ostatnie segmenty odwłoka. Delikatnie pociągając za koniec odwłoka, wyciągano przewód pokarmowy i izolowano jelito środkowe. W jelitach środkowych pszczół badano za pomocą metod histochemicznych umiejscowienie białek, kwasów nukleinowych i enzymów z grupy hydrolaz.
Doświadczenia autoradiograficzne obejmowały zasadniczo te same grupy pszczół, to znaczy owady zdrowe, chore i leczone preparatem Fumagillin DCH¹. Ponieważ warunki doświadczalne były tu nieco inne, dokładnie będą podane przy opisie stosowanej metodyki autoradiograficznej.
METODY HISTOCHEMICZNE
Jelito środkowe (mesenteron), natychmiast po wypreparowaniu, umieszczono w odpowiednich płynach utrwalających, stosując utrwalacze Carnoy’a, Bouina, Lewitzkiego (1% kwasu chromowego i 10% formaliny w stosunku 1 : 1) lub mieszaninę alkoholu absolutnego i kwasu octowego w stosunku 19 : 1 w temperaturze około 4°C.
W zależności od stosowanych następnie reakcji cytochemicznych preparaty przygotowywano techniką parafinową, po uprzednim zatopieniu utrwalonego materiału w agarze według Boücher (1957). Grubość skrawków wynosiła 5μ. Utrwalano też materiał w mieszaninie Fo-Ca Bakera w temp. 4°C i zatapiano w 25% żelatynie Bakera. Preparaty krojono na mikrotomie mrożeniowym. Grubość skrawków w tym przypadku wynosiła około 15μ.
W badaniach stosowano:
- Metodę błękitu rtęciowo-bromo-fenolową HgPBP według Mazia, Brewer i Alfred, wykazującą ogólnie obecność białek. Metoda ta pozwala na jednoczesne wykazanie obecności zasadowych i kwaśnych białek i nadaje się do uwidocznienia struktur komórkowych.
- Metodę Bracheta, polegającą na barwieniu preparatu mieszaniną zieleni metylowej z pyroniną i wytrawianiu równoległych preparatów rybonukleazą. Przy tej metodzie kwas dezoksyrybonukleinowy DNA — barwi się zielenią metylową, a kwas rybonukleinowy RNA — pyroniną.
¹ Preparat Fumagillin DCH produkcji Chinon Budapeszt jest specyfikiem stosowanym w leczeniu nozematozy pszczół, zawiera w 20 g preparatu 0,5 czystego antybiotyku Fumagilliny.
strona 81W badaniach do wytrawiania stosowano rybonukleazę firmy Reanal Węgry, używając roztworu enzymu w buforze weronalowo-octowym, pH 6,7. W stężeniu 1 mg enzymu na 1 ml buforu. Preparaty inkubowano przez 3 godziny w temperaturze 36°C.
- Metodę Feulgena w celu wykrycia obecności kwasu dezoksyrybonukleinowego DNA. Metoda ta polega na tym, że za pomocą stosowania łagodnej hydrolizy 1 n HCl w cząsteczce dezoksyrybozy uwalnia się grupa aldehydowa, która następnie reaguje z odczynnikiem Schiffa, dając czerwone zabarwienie.
- Metodę Bakera polegającą na barwieniu fosfolipidów kwaśną hemateiną i na kontrolnej ekstrakcji fosfolipidów pirydyną.
- Metody, przy pomocy których wykrywano aktywność enzymów hydrolitycznych:
a. metodę sprzęgania z solami dwu-azowymi według Mentena, Greena i Junga w celu wykazania lokalizacji fosfatazy alkalicznej i fosfatazy kwaśnej. Metoda ta polega na uwidocznieniu aktywności enzymów przez sprzęganie z solami dwu-azowymi reszty alkoholowej substratu, powstałej na skutek hydrolizy substratu przez dany enzym.
W badaniach stosowano dla wykrywania fosfatazy alkalicznej jako substratu α naftylofosforan sodu i sól dwuazową Fast Blue RR w buforze Tris-HCl pH 7,5 dla fosfatazy kwaśnej, jako substratu używano także α naftylofosforanu sodu oraz soli dwuazowej Fast Red RC w buforze octanowym o pH 5,0.
b. metodę indygogenną według Holta dla wykazania aktywności nieswoistych esteraz. Polega ona na utlenieniu powstałego w miejscu reakcji bromoindoksylu do nierozpuszczalnego indygo. Wymienione testy przeprowadzono według postępowania podanego przez Pearse (1960, Krygier 1963).
METODA AUTORADIOGRAFICZNA
Podstawą autoradiografii jest wykazanie obecności radioaktywnych izotopów w skrawkach tkankowych, dzięki ich zdolności redukowania soli srebra na płytkach lub emulsjach fotograficznych.
Lokalizacja radiopierwiastków, szczególnie w małych strukturach komórkowych, jest utrudniona przez to, że każdy atom promieniotwórczy wysyła cząsteczki we wszystkich kierunkach tak, że działają one nie na jeden punkt emulsji tylko na całą jego powierzchnię. Zmniejszenie efektu rozrzutu cząsteczek otrzymuje się przez stosowanie możliwie najcieńszych skrawków z tkanek badanych oraz przez takie postępowanie przy zakładaniu błon fotograficznych, aby zapewnić jak najlepszy ich kontakt ze skrawkami. Przybliżoną lokalizację izotopu na terenie komórki otrzymuje się przez założenie emulsji wprost na skrawek i obserwowanie zaczernień
strona 82na tle obrazu struktury komórkowej, która jest widoczna dzięki przejrzystości emulsji.
W naszych doświadczeniach materiał do badań stanowiły, jak już zaznaczono, pszczoły robotnice, którym podawano znakowane prekursory kwasów nukleinowych: C14 Urydynę (Act. spec. 0,05 mC—0,5 ml prod. CSR) i H3 Tymidynę (Act. spec. 27,8 C/m M prod. CSR).
Grupy doświadczalne:
- Pszczoły zdrowe normalnie żywione.
- Pszczoły zdrowe, żywione w ciągu 60 minut 25% roztworem wodnym glukozy z dodatkiem 20 mg preparatu Fumagillin DCH na 10 ml roztw.
- Pszczoły zarażone w ciągu 6 dni zarodnikami nosemy.
- Pszczoły zarażone w ciągu 8 dni i następnie żywione przez 60 min. roztworem 25% glukozy z dodatkiem 20 mg preparatu Fumagillin DCH.
C14 urydynę i H3 tymidynę podawano pszczołom przez okres 1 godz. w ilości 5 μC w 0,5 ml w 25% roztworu glukozy.
Karmienie pszczół doświadczalnych odbywało się następująco: na szalce Petriego przyklejano niewielki kawałek nieczerwionego plastra pszczelego. W komórkach plastra, zależnie od doświadczenia, podawano roztwór glukozy z preparatem Fumagillin DCH lub z piętnowanym prekursorem kwasów nukleinowych. Do każdego rodzaju preparatu przygotowano oddzielną szalkę z woszczyną, szalkę przykrywano lejkiem Büchnera, otrzymując
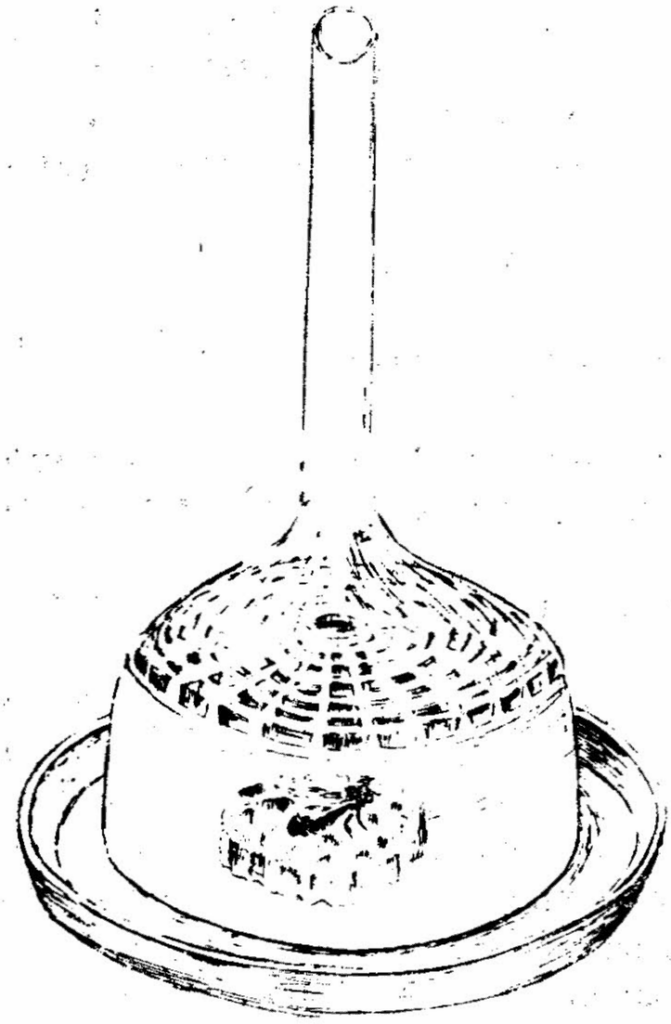
w ten sposób wentylowane kamery do karmienia pszczół. Do poszczególnych doświadczeń brano 5—7 owadów.
W doświadczeniach, w których stosowano dwukrotne karmienie pszczół glukozą z Fumagilliną DCH i glukozą z C14 urydyną lub H3 tymidyną, wypuszczano je na oblot w pokoju.
W czasie karmienia utrzymano temperaturę 20—24°C, używając do tego celu lampy podczerwonej.
Po zakończeniu karmienia pszczoły zabijano, przy czym preparowano jelito środkowe według metody uprzednio podanej. Jelita środkowe utrwalano w mieszaninie Carnoy’a. Preparaty przygotowywano techniką parafinową. Grubość skrawków wynosiła 5 μ. Preparaty pokrywano emulsją Kodak AR 10 techniką filmu zdzieranego według Pelca (Pearse, 1960). Ocenę intensywności wbudowania podanych nukleozydów dokonywano po 2, 3, 4 i 5 tygodniach ekspozycji.
Autoradiogramy wywoływano w roztworze zawierającym 2,2 g metolu, 8,8 g hydrochinonu, 7,2 g bezwodnego siarczanu sodu, 48 g bezwodnego węglanu sodu, 4 g bromku potasu na 1 litr wody i utrwalano kwaśnym utrwalaczem. Wywoływanie i utrwalanie przeprowadzono w temp. 12—14°C.
Po wysuszeniu, niektóre autoradiogramy były podbarwione mieszaniną zieleni metylowej z pyroniną, celem lepszego uwidocznienia struktur komórkowych.
Wszystkie preparaty mikroskopowe fotografowano przy pomocy mikroskopu M-20 firmy Wild.
WYNIKI
Przewód pokarmowy pszczoły Apis mellifica jak wiadomo dzieli się na trzy zasadnicze odcinki:
- jelito przednie (stomodeum) składające się z gardzieli, przełyku, wola miodowego i przedżołądka,
- jelito środkowe (mesenteron) lub żołądek właściwy,
- jelito tylne (proctedeum) składające się z jelita cienkiego i odbytnicy.
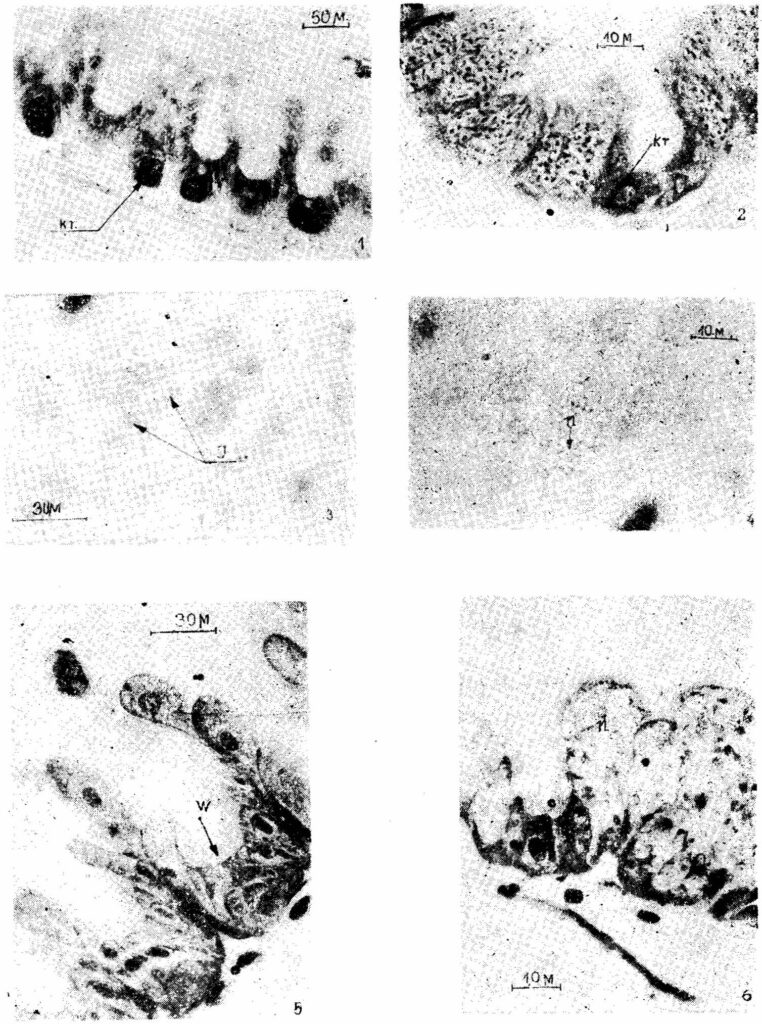
Jelito środkowe pszczoły zdrowej jest barwy brązowej i charakteryzuje się silnie pofałdowaną powierzchnią. Na przekroju ściany jelita widoczna jest warstwa mięśniowa, składająca się z poprzecznych i podłużnych włókien oraz warstwa nabłonkowa zbudowana z różnej wielkości cylindrycznych komórek nabłonka (Tablica 1, ryc. 1, 5).
W warstwie nabłonka można wyróżnić komórki wydzielnicze i regeneracyjne. Komórki regeneracyjne ciasno skupione obok siebie o stosunkowo dużych jądrach tworzą nieregularnie ułożone centra. Pomiędzy centrami regeneracji układają się komórki wydzielnicze, wysokie, zaokrąglo-
strona 84TABLICA 1
[Tablica fotograficzna — mikrofotografie, bez tekstu.]
strona 85Tabl. 1. Fragmenty jelita środkowego pszczoły zdrowej oraz zakażonej nozemą (Carnoy’a parafina) Parts of midgut of healthy and infected bee with Nosema spores (Carney paraff.)
Ryc. 1. Widoczna warstwa komórek wydzielniczych i regeneracyjnych. Cytoplazma komórek wykazuje zabarwienie pyroniną, szczególnie intensywnie w komórkach regeneracyjnych (kr); jądra komórkowe zabarwione zielenią metylową (zieleń metyl. + pyronina).
Ryc. 2. Komórki nabłonka silnie rozepchane przez nagromadzone pasożyty, słaba pyroninofilność komórek nabłonka; komórki nosemy (n) wykazują intensywną pyroninofilność; w niektórych komórkach centr regeneracyjnych (kr) nieopanowanych przez pasożyty występuje nadal intensywne zabarwienie pyroniną (zieleń metylowa + pyronina).
Ryc. 3. Brak pyroninofilności w cytoplazmie komórek nabłonka, spowodowany działaniem rybonukleazy; jądra komórkowe (j) nadal zabarwione zielenią metylową (traw. rybonukleazą, zieleń metyl. + pyronina).
Ryc. 4. Preparat kontrolny poddany działaniu rybonukleazy. Niektóre komórki nosemy (n) wykazują nadal zabarwienie pyroniną, przypuszczalnie na skutek występowania trudno przypuszczalnych osłonek w komórce pasożyta, (traw. rybonukleazą; zieleń met. + pyron.).
Ryc. 5. W jądrach komórkowych widoczne intensywnie zabarwione ziarnistości; od strony światła jelita widoczna delikatnie zabarwiona warstwa (w), szczególnie dobrze widoczna w pobliżu centr regeneracyjnych (r. Mazia).
Ryc. 6. Części wierzchołkowe komórek wydzielniczych wypełnione pasożytami (n) niewykazującymi pozytywnej reakcji na białka; słabe zabarwienie cytoplazmy pomiędzy pasożytami; w komórkach niezaatakowanych nadal pozytywna reakcja (r. Mazia).
strona 86TABLICA 2
[Tablica fotograficzna — mikrofotografie, bez tekstu.]
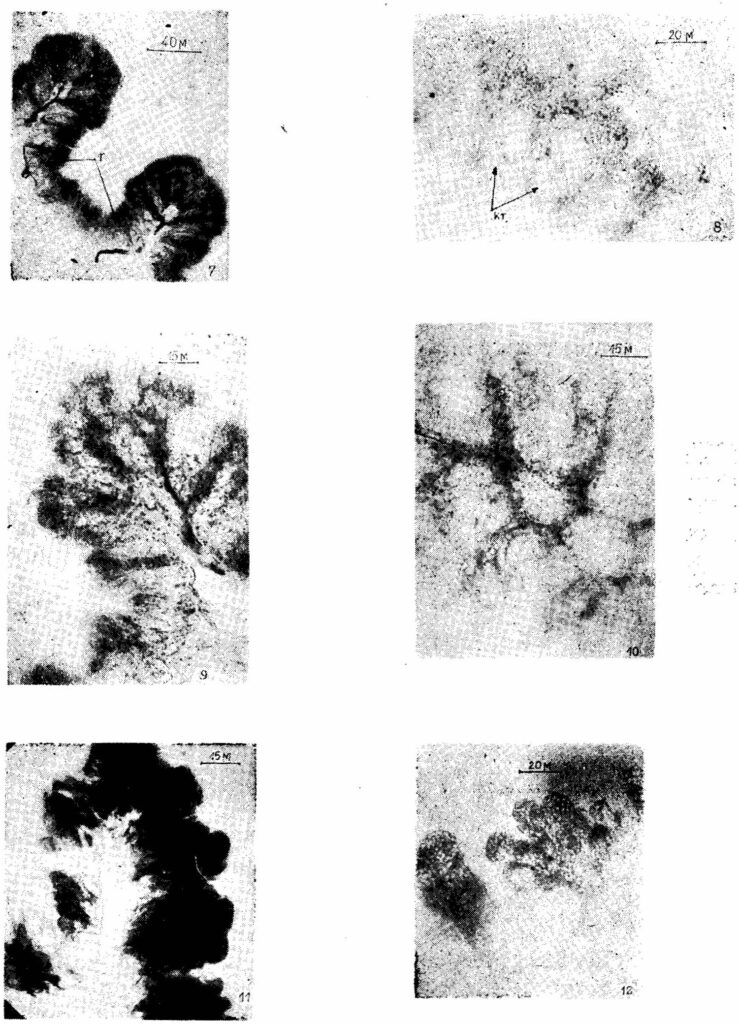
strona 87Tabl. 2. Fragmenty jelita środkowego pszczoły zdrowej (ryc. 7, 9, 11) oraz pszczoły zakażonej nozemą (ryc. 8, 10, 12 — utr. Fo-Ca mroż.). Parts of midgut of healthy bee (ryc. 7, 9, 11) and infected bee with Nosema spores (ryc. 8, 10, 12 — Fo-Ca freez.).
Ryc. 7. Lokalizacja fosfatazy alkalicznej; pozytywna reakcja w całej cytoplazmie komórek wydzielniczych; brak pozytywnej reakcji w cytoplazmie komórek regeneracyjnych i w warstwie mięśniowej; widoczna reakcja na rąbku brzeżnym (r); brak pozytywnej reakcji w jądrach komórkowych (j); (Fo-Ca α, naftylofosforan sodu, Fast Blue RR).
Ryc. 8. Lokalizacja fosfatazy alkalicznej. Słaba pozytywna reakcja w części wierzchołkowej komórek wydzielniczych, brak pozytywnej reakcji w komórkach centr regeneracyjnych (kr).
Ryc. 9. Lokalizacja fosfatazy kwaśnej. Pozytywna reakcja widoczna w całej cytoplazmie komórek nabłonka (Fo-Ca, subst. α naftylofosforan sodu, Fast Red RC).
Ryc. 10. Lokalizacja fosfatazy kwaśnej. Pozytywna reakcja widoczna w części cytoplazmy komórek wydzielniczych i regeneracyjnych wolnych od pasożytów, (α naftylofosforan sodu; Fast Red RC).
Ryc. 11. Lokalizacja esterazy niespecyficznej. Pozytywna reakcja w komórkach wydzielniczych; brak pozytywnej reakcji w komórkach regeneracyjnych i w warstwie mięśniowej; od strony światła jelita widoczny rąbek brzeżny, w niektórych komórkach, na skutek nagromadzenia produktów reakcji enzymatycznej wokół błony jądrowej, dobrze widoczne jądra komórkowe, (5-bromoindoksyl).
Ryc. 12. Lokalizacja esterazy niespecyficznej; znaczne obniżenie reakcji w porównaniu z osobnikami zdrowymi; ryc. 12. porównaj z ryc. 11, (5-bromoinodoksyl).
strona 88TABLICA 3
[Tablica fotograficzna — mikrofotografie, bez tekstu.]
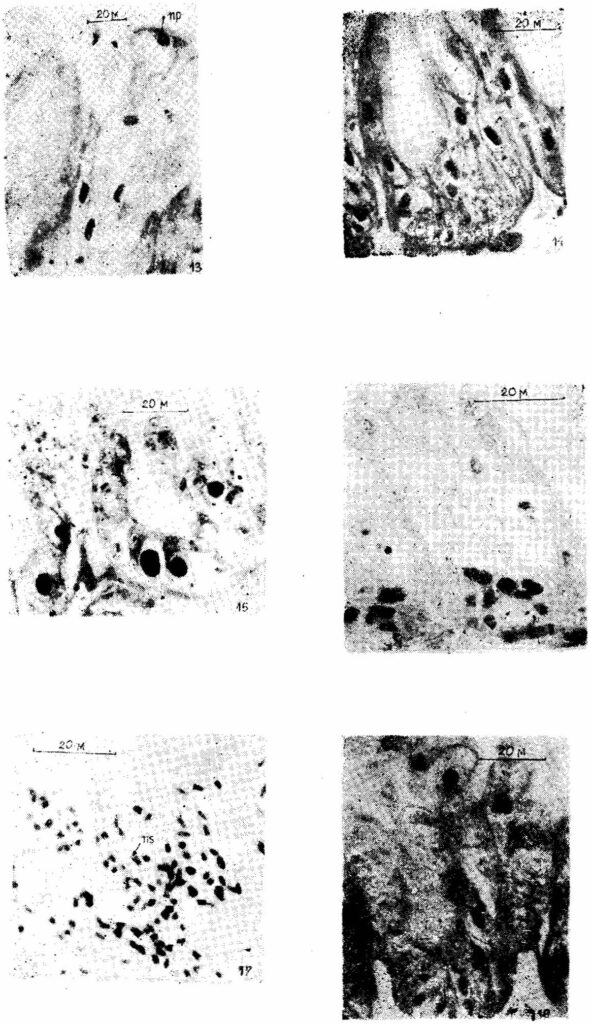
strona 89Tabl. 3. Fragmenty jelita środkowego pszczoły zakażonej nozemą (par.). Parts of midgut of infected bee with Nosema spores (paraff.).
Ryc. 13, 14, 16, 18. Widoczna pozytywna reakcja w komórkach nabłonka wypełnionych pasożytami w różnych stadiach rozwojowych. Ryc. 13. w wierzchołkowej części komórki wydzielniczej widoczne wcześniejsze stadium rozwojowe pasożyta planont (np) o dobrze widocznych dwu jądrach komórkowych. Ryc. 14, w komórce położonej na skraju centra regeneracyjnego widoczne liczne pasożyty w stadium merontów. Ryc. 16, 18. w komórkach widoczne liczne pasożyty w stadium sporoblastów i spor (r. Feulgena).
Ryc. 15, 17. W komórkach nabłonka widoczne intensywnie zabarwione pasożyty (kwaśna hemateina Baker). Ryc. 15. nadal widoczne zabarwione pasożyty pomimo stosowania extrakcji pirydyną na skutek zbyt małej powierzchni nie można ocenić, czy zabarwieniu uległy te same fragmenty komórek pasożyta (utr. Bouin, extrak. pirydyna). Ryc. 17. widoczne pasożyty w stadium młodych spor (ns) o charakterystycznych wodniczkach (utr. Lewitzky).
strona 90TABLICA 4
[Tablica fotograficzna — mikrofotografie, bez tekstu.]
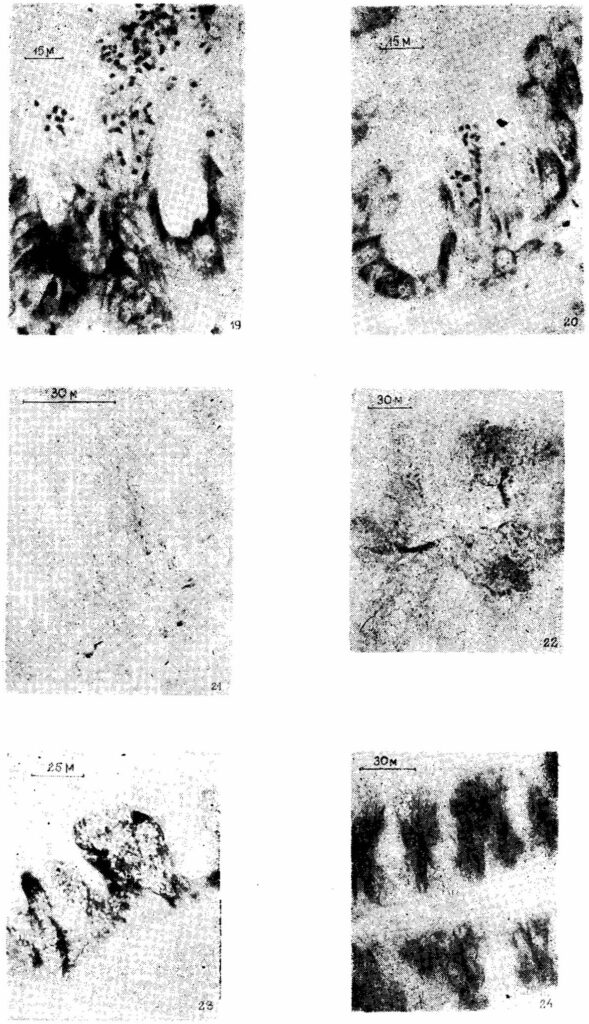
strona 91Tabl. 4. Fragmenty jelita środkowego pszczoły zakażonej, żywionej syropem z dodatkiem Fumagilliny DCH przez okres 6 dni (ryc. 19, 21, 23) i przez 12 dni (ryc. 20, 22, 24). Parts of midgut of infected bee feeded sugar sirup with Fumagillin during 6 days (ryc. 19, 21, 23) and during 12 days (ryc. 20, 22, 24).
Ryc. 19. Wierzchołkowe części komórek wydzielniczych wypełnione licznymi pasożytami intensywnie zabarwionymi pyroniną (zieleń metylowa + pyronina utr. Carnoya parafin).
Ryc. 20. Cytoplazma komórek nabłonka wykazuje podobną pyroninofilność jak u osobników zdrowych, porównaj ryc. 20 z ryc. 1; w wierzchołkowej części niektórych komórek wydzielniczych widoczne zarodniki nosemy zabarwione pyroniną (zieleń metyl. + pyronina, utr. Carnoya parafin).
Ryc. 21. Lokalizacja fosfatazy alkalicznej. Pozytywna reakcja jedynie w części cytoplazmy wolnej od pasożytów, części wierzchołkowe komórek wypełnione zarodnikami nosemy, w komórkach pasożyta brak pozytywnej reakcji (substrat α naftylofosforan sodu i Fast Blue RR; Fo-Ca mroż.).
Ryc. 22. Lokalizacja fosfatazy kwaśnej. Pozytywna reakcja w całej cytoplazmie komórek nabłonka, podobnie jak u osobników zdrowych, porównaj ryc. 22 z ryc. 9 (subst. α naftylofosforan sodu i Fast Red RC; Fo-Ca mroż.).
Ryc. 23. Lokalizacja esterazy niespecyficznej. Pozytywna reakcja jedynie w części cytoplazmy komórek wolnej od pasożytów; w porównaniu z osobnikami nieleczonymi widoczny pewien wzrost aktywności; porównaj ryc. 23 z ryc. 12 (5-bromoindoksyl; Fo-Ca mroż.).
Ryc. 24. Lokalizacja esterazy niespecyficznej; intensywne zabarwienie cytoplazmy komórek wydzieniczych podobnie jak u osobników zdrowych, porównaj ryc. 24 z ryc. 11; w cytoplazmie niektórych komórek o obniżonej aktywności esterazy widoczne zarodniki nosemy; brak pozytywnej reakcji w warstwie mięśniowej (m) i w komórkach centr regeneracyjnych (kr.) (5-bromoinodoksyl Fo-Ca mroż.).
strona 92TABLICA 5
[Tablica fotograficzna — mikrofotografie, bez tekstu.]
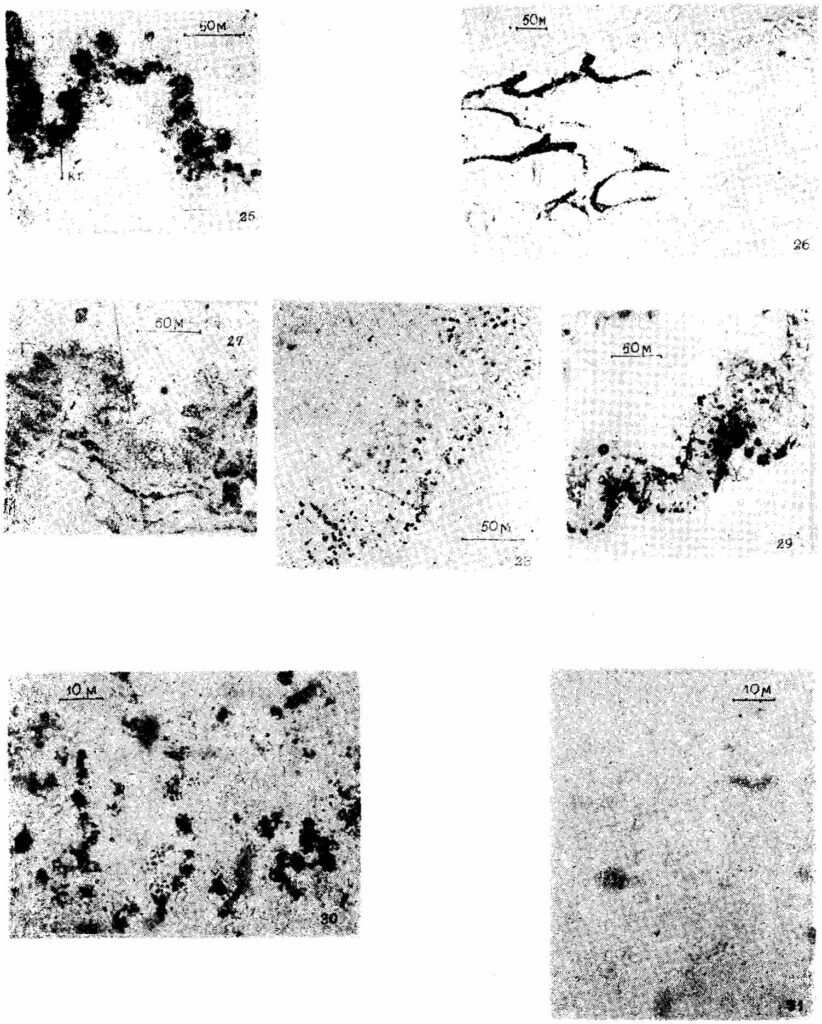
strona 93Tabl. 5. Autoradiogramy fragmentów jelita środkowego pszczoły, której podawano C14 — urydynę (ryc. 25, 27, 29) i H3 — tymidynę (ryc. 26, 28, 30, 31). Czas ekspozycji autoradiogramów 3 tygodnie. Auto-radiogramms of midgut parts of bee, which added C14 — uridin (ryc. 25, 27, 29) and H3 — thymidin (ryc. 26, 28, 30, 31). Time of radiogramms exposition three weeks.
Ryc. 25. Intensywne wbudowanie podawanego nukleozydu w centra regeneracji (cr).
Ryc. 26. Fragment jelita cienkiego pszczoły zdrowej; widoczne fałdy jelitowe (fj) oraz obecność podawanego nukleozydu w świetle jelita.
Ryc. 27. Fragment jelita środkowego pszczoły zakażonej nosemą; wbudowanie równomiernie rozproszone; centra regeneracji nie wyróżniają się.
Ryc. 29. Fragment jelita środkowego pszczoły karmionej przez 60 minut przed podaniem C14 — urydyny, roztworem glukozy z dodatkiem preparatu Fumagillin DCH; intensywne wbudowanie w centra regeneracyjne (cr) i jądro komórkowe (j).
Ryc. 28, 30. Fragmenty jelita środkowego pszczoły zakażonej nosemą; widoczne wbudowanie podawanego nukleozydu w niektóre komórki pasożyta. Ryc. 30 to samo przy większym powiększneiu.
Ryc. 31. Autoradiogram fragmentu jelita środkowego pszczoły zakażonej nosemą, którą na 60 min. przed podaniem H3 — tymidyny żywiono roztworem glukozy z dodatkiem preparatu Fumagillin DCH; zupełny brak wbudowania piętnowanego nukleozydu.
strona 94ne w części wierzchołkowej, nieregularnie wydłużone w kierunku światła jelita. Często w rozszerzonej części komórek widoczne jest jądro. Jelito środkowe pszczół zakażonych nosemą jest rozdęte, perłowobiałej barwy, o mniej wyraźnym pofałdowaniu. Warstwa nabłonka jest powiększona. Komórki wydzielnicze są wypełnione licznymi pasożytami będącymi w różnych stadiach rozwoju. Liczba ich w poszczególnych komórkach jest różna. W komórkach silnie opanowanych przez nosemę jest ich tak wiele, że wypełniają prawie całą cytoplazmę i przysłaniają jądro. Komórki wydzielnicze zaatakowane przez pasożyty nie ulegają w swej części podstawowej charakterystycznemu zwężeniu i wydłużeniu (Tablica 1, ryc. 2). Opanowane przez pasożyty, komórki regeneracyjne są podobnie jak komórki wydzielnicze, znacznie powiększone i wypełnione pasożytami. Badając lokalizację kwasów nukleinowych metodą Bracheta — w przypadku pszczół zdrowych otrzymano intensywne zabarwienie pyroniną cytoplazmy komórek nabłonka (Tablica 1, ryc. 1). W preparatach kontrolnych, poddanych przed barwieniem pyroniną działaniu rybonukleazy, zabarwienia nie zaobserwowano (Tablica 1, ryc. 3). Pozwala to przypuszczać, że zabarwienie występujące uprzednio było spowodowane obecnością kwasu rybonukleinowego. Jądra komórkowe zabarwione zielenią metylową zawierają ponadto w nukleoplazmie drobne intensywne pyroninofilne ziarenka. Intensywne zabarwienie jąder komórek nabłonka uzyskano również, stosując reakcję Feulgena.
Występowanie kwasów nukleinowych w komórkach nabłonka zaatakowanych przez pasożyty badanych metodą Bracheta, wykazało wyraźne osłabienie pyroninofilności cytoplazmy komórek zakażonych (Tablica 1, ryc. 2). Natomiast intensywne zabarwienie pyroniną wykazała cytoplazma komórek pasożyta. W preparatach kontrolnych poddawanych działaniu rybonukleazy zabarwienie cytoplazmy komórek nabłonka nie występowało, natomiast nadal obserwowano intensywne zabarwienie komórek pasożyta (Tablica 1, ryc. 4). Prawdopodobnie spowodowane jest to obecnością słabo przepuszczalnych otoczek komórkowych, utrudniających przenikanie enzymów do wnętrza komórki.
Przy stosowanej metodzie Feulgena zaobserwowano intensywne zabarwienie zarówno jąder komórek nabłonka, jak i jąder komórkowych pasożyta — daje to możliwość częściowego prześledzenia stadiów rozwojowych nosemy (Tablica 3). Najwcześniejsze stadium pasożyta, jakie udało się zaobserwować, to stadium planonta, zlokalizowane w wierzchołkowej części komórki wydzielniczej (Tablica 3, ryc. 13). Następnie na obrazach komórek, które sądząc po ilości pasożyta zostały wcześniej zaatakowane, są widoczne nieliczne pojedyncze posażyty w stadium merontów, a nawet można zauważyć stadia sporoblasta i młodych spor (Tablica 3, ryc. 15, 16, 17, 18).
Przy badaniach prowadzonych metodą Bakera, celem stwierdzenia występowania fosfolipidów, komórki nosemy wykazały intensywne zabarwienie
strona 95po reakcji z kwaśną hemateiną. Na niektórych preparatach można zaobserwować występowanie charakterystycznych wodniczek w części biegunowej młodych spor (Tablica 3, ryc. 17). W preparatach kontrolnych poddanych ekstrakcji pirydynowej nadal otrzymano zabarwienie komórek nosemy kwaśną hemateiną. Nie pozwala to na ustalenie czy zabarwienie otrzymane poprzednio było spowodowane obecnością fosfolipidów, czy też na skutek ekstrakcji pirydynowej uległy zabarwieniu odmaskowane białka zasadowe (Tablica 3, ryc. 15).
Obecność białek wykrywano metodą rtęciowo-bromofenolową. Zaobserwowano równomierne niebieskie zabarwienie w całej cytoplazmie komórek nabłonka. Natomiast w jądrach komórkowych występowały drobne, intensywnie zabarwione ziarenka, świadczące o nagromadzeniu substancji białkowych. Od strony światła jelita komórki nabłonka pokrywa jednorodna warstwa wykazująca obecność białek, szczególnie dobrze widoczna w pobliżu centrów regeneracyjnych (Tablica 1, ryc. 5). W komórkach opanowanych przez pasożyty obserwowano znaczne różnice w porównaniu z komórkami wolnymi od pasożytów. Niebieskie zabarwienie, wskazujące na obecność białek, widoczne jest jedynie w wolnej od pasożytów części cytoplazmy zakażonych komórek. W nukleoplazmie występują podobnie jak u owadów zdrowych drobne intensywnie wybarwione ziarenka. Wybarwiona na obecność białek warstwa, pokrywająca komórki nabłonka od strony światła jelita, jest znacznie zmniejszona w porównaniu z obserwowaną warstwą u owadów zdrowych (Tablica 1, ryc. 6).
W badaniach mających na celu wykazanie aktywności fosfatazy alkalicznej, w komórkach nabłonka jelita środkowego otrzymano nagromadzenie strątów, świadczących o aktywności enzymu w częściach: wierzchołkowej i podstawowej komórek wydzielniczych. Szczególnie intensywne nagromadzenie strątów obserwowano w komórkach położonych w pobliżu zastawki odźwiernikowej. W komórkach centrów regeneracyjnych i w jądrach komórek nabłonka nie stwierdzono aktywności fosfatazy alkalicznej (Tablica 2, ryc. 6).
Badając aktywność fosfatazy kwaśnej, obserwowano barwne strąty świadczące o jej aktywności równomiernie rozproszonej w całej cytoplazmie, zarówno w komórkach regeneracyjnych, jak i wydzielniczych (Tablica 2, ryc. 9).
Dużą aktywność w wydzielniczych komórkach nabłonka wykazały nieswoiste esterazy hydrolizujące octan 5 bromo-indoksylu. Drobne ziarenka indyga, które są ostatecznym produktem reakcji, występują rozproszone w całej cytoplazmie, nadając jej ciemnogranatowe zabarwienie (Tablica 2, ryc. 11). Nie obserwowano pozytywnej reakcji w jądrach komórkowych, spotykano natomiast obrazy świadczące o obecności enzymu po zewnętrznej stronie błony jądrowej.
W komórkach centrów regeneracyjnych i w warstwie mięśniowej jelita nie stwierdzono aktywności niespecyficznej esterazy.
strona 96Aktywność badanych enzymów w komórkach nabłonka, opanowanych przez nosemę, jest wyraźnie obniżona w porównaniu z aktywnością tego enzymu w komórkach nabłonka wolnych od pasożytów. Produkty reakcji enzymatycznych są widoczne jedynie w części cytoplazmy, wolnej od pasożytów. Komórki centrów regeneracyjnych, podobnie jak u osobników zdrowych, nie wykazują aktywności fosfatazy alkalicznej (Tablica 2, ryc. 8). W komórkach nabłonka, opanowanych przez nosemę, fosfataza kwaśna jest zlokalizowana w części podstawowej komórek wydzielniczych i w komórkach regeneracyjnych. Wierzchołkowe części komórek wypełnione pasożytami nie ujawniają aktywności enzymu (Tablica 2, ryc. 10). Komórki nosemy nie wykazują aktywności fosfatazy kwaśnej.
Esterazy niespecyficzne rozkładające octan 5 bromo-indoksylu wykazują w komórkach zaatakowanych przez pasożyty znaczne obniżenie aktywności (Tablica 2, ryc. 12).
Jelito środkowe pszczoły chorej leczonej przez 6 dni Fumagilliną nie różni się wyglądem od jelita środkowego pszczoły chorej, jest powiększone, o mniej wyraźnym pofałdowaniu w porównaniu ze zdrową, barwy perłowo-białej.
W badaniach mikroskopowych można było jednak stwierdzić, że występowanie pasożytów w komórkach nabłonka uległo przesunięciu w kierunku światła jelita. W komórkach centrów regeneracyjnych pasożyty nie występowały i jedynie wierzchołkowe części komórek wydzielniczych były nimi wypełnione.
Pyroninofilność cytoplazmy komórek wydzielniczych, wypełnionych w wierzchołkowej części pasożytami, jest słaba, podobnie jak u osobników nieleczonych. Komórki wydzielnicze zawierające pasożyty są bardzo silnie wydłużone w kierunku światła jelita podobnie jak u owadów zdrowych. W tych znacznie wydłużonych częściach komórek wydzielniczych widoczne są pasożyty, intensywnie zabarwione pyroniną.
Komórki wolne od pasożytów, szczególnie w centrach regeneracyjnych, wykazują bardzo silną pyroninofilność. Intensywność ich zabarwienia nie jest jednakowa. Cytoplazma części wierzchołkowej komórek wykazuje mocniejsze zabarwienie. Jądra komórek nabłonka, zabarwione zielenią metylową na niebiesko, zawierają wewnątrz nukleoplazmy drobne ziarenka intensywnie zabarwione pyroniną, podobnie jak u osobników zdrowych (Tablica 4, ryc. 19).
Aktywność fosfatazy alkalicznej po 6 dniach leczenia chorych pszczół na nozematozę jest nadal znacznie obniżona w porównaniu z aktywnością tego enzymu u osobników zdrowych. Znacznie wydłużone komórki wydzielnicze są wypełnione w części wierzchołkowej pasożytami. Aktywność enzymu obserwowano jedynie w części podstawowej komórek, podobnie jak u osobników nieleczonych (Tablica 4, ryc. 21).
Fosfataza kwaśna zlokalizowana jest w częściach cytoplazmy wolnych od pasożytów. Obserwowano nadal znaczne obniżenie aktywności w porównaniu
strona 97z komórkami nabłonka jelita środkowego pszczół zdrowych. Nie stwierdzono żadnych różnic w otrzymanych obrazach lokalizacji enzymu pszczół leczonych i nieleczonych.
Esteraza niespecyficzna. Aktywność enzymu rozkładającego octan 5-bromoindoksylu jest znacznie obniżona w wydzielniczych komórkach nabłonka, w porównaniu z komórkami wolnymi od pasożytów. W przeciwieństwie jednak do fosfatazy alkalicznej i fosfatazy kwaśnej, 5-bromoindoksyl esteraza wydaje się, że jest bardziej aktywna po 6-dniowym leczeniu Fumagilliną pszczół zakażonych nosemą, aniżeli u pszczół nieleczonych (Tablica 4, ryc. 23).
Po 12 dniach podawania pszczołom chorym preparatu Fumagillin DCH, wygląd jelita środkowego jest zupełnie zbliżony do wyglądu jelita środkowego pszczoły zdrowej, choć w niektórych przypadkach utrzymuje się nadal białe jego zabarwienie.
Przy stosowanej metodzie badania na obecność białek według Mazi, komórki nabłonka jelita środkowego pszczoły zakażonej nosemą, przez 12 dni karmionej syropem z dodatkiem preparatu Fumagillin DCH, wykazują intensywniejsze zabarwienie aniżeli obserwowano u osobników chorych. Tylko nieliczne komórki wydzielnicze, w których w wierzchołkowej części cytoplazmy można dostrzec wyraźne zarysy zarodników nosemy, nie są zabarwione.
W stosowanej metodzie barwienia zielenią metylową z pyroniną, podobnie jak u pszczół zdrowych — zarówno komórki wydzielnicze jak i regeneracyjne wykazują intensywną pyroninofilność. Jeżeli spotyka się jeszcze w nabłonku pojedyncze komórki o osłabionej pyroninofilności. to z reguły w ich cytoplazmie widoczne są liczne zarodniki nosemy, intensywnie zabarwione pyroniną (Tablica 4, ryc. 20).
Jądra komórek nabłonka, zarówno przy barwieniu zielenią metylową jak i przy reakcji Feulgena, nie wykazują różnic w barwieniu w porównaniu z jądrami komórek zdrowych: zachowują owalny kształt i centralne położenie w komórce, a także intensywnie zabarwione ziarenka wewnątrz nukleoplazmy.
Stwierdzono znaczny wzrost aktywności badanych hydrolaz w komórkach nabłonka jelita środkowego pszczół chorych, przez 12 dni leczonych preparatem Fumagillin DCH, w porównaniu z aktywnością komórek nabłonka pszczół chorych nieleczonych.
Fosfataza alkaliczna. Wykazuje aktywność w całej cytoplazmie komórek wydzielniczych, podobnie jak u osobników zdrowych. Nie spotkano nawet pojedynczych komórek zakażonych pasożytami i wykazujących wskutek tego obniżoną aktywność enzymu.
Fosfataza kwaśna wykazuje intensywną aktywność w całej warstwie komórek nabłonka. Tylko nieliczne komórki opanowane nadal pasożytami wykazują, w części cytoplazmy zawierającej pasożyty, obniżenie aktywności enzymu (Tablica 4, ryc. 22). Drobne kryształy indyga, wykazujące
strona 98na aktywność 5-bromoindoksyl-esterazy, występują w całej cytoplazmie komórek wydzielniczych, nadając jej intensywne granatowe zabarwienie. Na tym tle z łatwością można zaobserwować nieliczne niezabarwione komórki, wypełnione zarodnikami nosemy, w których brak aktywności enzymu. Podobnie jak u osobników zdrowych, w komórkach regeneracyjnych i w warstwie mięśniowej jelita nie ujawniono aktywności esterazy niespecyficznej (Tablica 4, ryc. 24).
Na autoradiogramach otrzymanych w pierwszej serii doświadczeń z preparatów przygotowanych z jelita pszczół zdrowych, karmionych przez okres 60 minut roztworem 25% glukozy z dodatkiem znakowanej C14-urydyny, stwierdzono zaciemnianie błony fotograficznej, świadczące o wbudowaniu znakowanego nukleozydu w komórki nabłonka. Na preparatach z jelita środkowego rozmieszczenie zaciemnień na błonie nie jest jednakowe nad całą warstwą komórek nabłonka. Znakowanie widoczne jest zarówno w jądrach, jak i cytoplazmie komórek wydzielniczych, przy czym w jądrach jest znacznie gęstsze. Natomiast w cytoplazmie komórek regeneracyjnych nagromadzenie piętna jest tak duże, że po trzech tygodniach ekspozycji, całe centra regeneracji tworzą niemal jednolite owalne plamy (Tablica 4, ryc. 25).
Przy podawaniu C14-urydyny pszczołom chorym na nozematozę, otrzymano bardziej równomierne wbudowanie piętnowanego nukleozydu w całą cytoplazmę komórek nabłonka wolnych od pasożytów. Poza tym w tej serii autoradiogramów widać wyraźnie zmniejszone wbudowanie C14-urydyny w komórkach centrów regeneracyjnych. Zaciemnienie błony w okolicy centr regeneracyjnych jest widoczne, jednak ilość widocznych zaciemnień błony fotograficznej jest znacznie mniejsza w porównaniu z autoradiogramami przygotowanymi z jelita środkowego pszczół wolnych od nosemy (Tabl. 5, ryc. 27).
W seriach doświadczeń, w których chore pszczoły przed spożyciem piętnowanej C14-urydyny były leczone syropem z preparatem Fumagillin DCH, również otrzymano wbudowanie piętnowanego nukleozydu w cytoplazmę komórek nabłonka i w komórki pasożyta. Jednakże gęstość piętna obserwowanego na autoradiogramach, świadcząca o intensywności wbudowania, jest podobna jak u osobników zdrowych (Tablica 5, ryc. 29).
W autoradiogramach przygotowanych w serii doświadczeń, w których pszczoły zdrowe żerowały przez 1 godzinę na 25% syropie z glukozy z dodatkiem H3-tymidyny, nie uzyskiwano wbudowania piętnowanego nukleozydu ani w komórki nabłonka jelita środkowego, ani w dalsze odcinki przewodu pokarmowego. Natomiast widoczna jest wyraźna obecność podawanego nukleozydu w treści pokarmowej w świetle jelita cienkiego (Tablica 5, ryc. 26). Pozwala to sądzić, że pszczoły pobierały podany pokarm z piętnowanym nukleozydem, a brak piętna w nabłonku spowodowany jest jedynie brakiem aktualnie zachodzącej syntezy kwasu dezoksyrybonukleinowego w jądrach tych komórek.
strona 99Doświadczenia, w których H3-tymidyna była podawana pszczołom chorym na nozematozę, w przygotowanych autoradiogramach otrzymano intensywne wbudowania. Zaciemnienia na błonie autoradiogramu są dość duże i występują w nieregularnie rozrzuconych skupieniach (Tabl. 5, ryc. 28). W autoradiogramach barwionych zielenią metylową z pyroniną, widać, że rozmieszczenie zaciemnień na autoradiogramie odpowiada częściom cytoplazmy komórek nabłonka, opanowanym przez pasożyty, jednocześnie widać, że znakowanie nie występuje nad wszystkimi komórkami pasożyta (Tablica 5, ryc. 30). Z obserwacji prowadzonych poprzednio, kiedy badano rozmieszczenie kwasów nukleinowych w komórkach nabłonka jelita środkowego pszczół zakażonych nosematozą, wiadomo, że w zaatakowanych przez nosemę komórkach znajdują się różne stadia rozwoju pasożyta. Można więc uważać, że wbudowanie piętnowanej tymidyny nastąpiło właśnie w niektóre stadia rozwojowe nosemy.
Natomiast w serii doświadczeń, kiedy pszczoły chore przed podaniem H3-tymidyny żerowały przez 60 minut na 25% roztworze glukozy z preparatem Fumagillin DCH, wbudowania nukleozydu w ogóle nie otrzymano. Obserwowana w przewodach pokarmowych tych pszczół obecność podawanej H3-tymidyny w treści pokarmowej w świetle jelita pozwala przypuszczać, że pszczoły istotnie pobierały podawany roztwór glukozy z H3-tymidyną a brak piętna w nabłonku spowodowany był zahamowaniem wbudowania obserwowanego uprzednio u pszczół chorych, nieleczonych (Tablica 5, ryc. 31).
DYSKUSJA
Badania histologiczne przeprowadzone przez Hertiga (1923), Żdanowa (1960) i Bährmanna (1965) stwierdziły, że komórki nabłonka jelita środkowego zakażonych pszczół znacznie zwiększyły swoją objętość, przy czym ogromna ilość pasożytów występująca w komórce często zupełnie przysłaniała jądro. Nasze obserwacje pokrywają się z obserwacjami wymienionych autorów. W zakażonych komórkach nabłonka stwierdziliśmy wyraźnie zmniejszenie pyroninofilności cytoplazmy komórek nabłonka przy jednoczesnej intensywnej pyroninofilności komórek pasożyta.
Otrzymana reakcja barwna oparta jest na powinowactwie barwników zasadowych (do których należy pyronina) do nukleotydów komórki. Wynik negatywny bąrwienia, otrzymany po wytrawieniu materiału badanego enzymem rybonukleazą, świadczy o obecności w komórce kwasu rybonukleinowego. Związek ten, jak wiadomo, jest konieczny do syntezy białek. Dlatego też, na podstawie zmniejszonej pyroninofilności cytoplazmy komórek w nabłonku jelita środkowego pszczoły, można przyjąć, że występowanie pasożytów w cytoplazmie powoduje obniżenie ilości RNA, a zatem i zmniejszenie zdolności komórek do syntetyzowania
strona 100białek. Przypuszczenie to potwierdzają badania aktywności i lokalizacji niektórych enzymów z grupy hydrolaz, jak fosfataza alkaliczna, fosfataza kwaśna i 5-bromoindoksyl-esteraza. Wszystkie badane enzymy wykazały wyraźnie obniżoną aktywność w porównaniu z widocznymi w preparatach. Oczywiście przy ocenie tych obrazów należy pamiętać, że zaatakowane komórki mają znacznie większą objętość i być może obserwowane różnice w rzeczywistości są mniej jaskrawe niż to widać na preparatach. Zagadnienie zwiększonego czy zmniejszonego natężenia aktywności enzymów należałoby zasadniczo badać metodami ilościowymi, a nie jakościowymi, do których należą zastosowane metody cytochemiczne. Z drugiej strony jednak zastosowanie metodyki biochemicznej, wymagającej homogenizacji badanych komórek, w danym przypadku nie wydaje się celowe. W materiale zhomogenizowanym, obok fragmentów komórek przewodu pokarmowego pszczoły występowałyby bowiem komórki pasożyta znajdującego się w rozmaitych stadiach rozwojowych, od planontów, poprzez meronty, sporonty, sporoblasty i młode spory aż do zupełnie dojrzałych zarodników. Aktywności enzymatycznej takiego homogenatu zatem nie można by porównywać z aktywnością enzymatyczną homogenatu z jelita pszczoły zdrowej. Przed tym należałoby pozbyć się przy pomocy techniki frakcjonowanego wirowania występujących w nim pasożytów, co ze względu na wspomnianą różnorodność występujących obok siebie form tych ostatnich, jest sprawą bardzo trudną. Dlatego też metody cytochemiczne, które pozwalają na odróżnienie aktywności enzymatycznej cytoplazmy komórki — gospodarza od aktywności występującej w komórkach pasożyta, wydają się mimo wszystko bardziej użyteczne.
Przy podawaniu zakażonym pszczołom preparatu Fumagillin DCH już po 6 dniach obserwowano pewne zwiększenie pyroninofilności cytoplazmy zakażonych komórek. Wyraźny powrót do stanu fizjologicznego, podobnego do tego, jaki obserwowano u pszczół kontrolnych, zdrowych, w ogromnej większości komórek nabłonka nastąpił po 12 dniach stosowania preparatu Fumagillin DCH. W sporadycznie spotykanych na preparatach komórkach nadal opanowanych przez pasożyty widoczne były jedynie stadia zarodnikowe. Świadczy to wyraźnie o leczniczym działaniu podawanego preparatu. Można przypuszczać, że całkowite wyleczenie nastąpiłoby po jeszcze dłuższym okresie podawania antybiotyku, co jest zgodne z zaleceniami Bailey’a (1953). W związku z tym zalecenie firmy produkującej antybiotyk, aby przy tak zwanym szybkim leczeniu opryskać jedynie dwukrotnie chore pszczoły roztworem sacharozy o stężeniu 30 mg antybiotyku na 1 litr roztworu sacharozy, nie wydają się słuszne. W omówionych własnych doświadczeniach stosowano właśnie takie stężenie antybiotyku i pomimo to jeszcze po 12 dniach stwierdzono zakażenie komórek nabłonka.
W serii doświadczeń autoradiograficznych z podaniem piętnowanej C14-urydyny, nukleozydu charakterystycznego dla kwasu rybonukleinowego
strona 101i H3-tymidyny, nukleozydu występującego w kwasie dezoksyrybonukleinowym, stwierdzono wyraźne różnice wbudowania tych dwóch związków. W przypadku C14-urydyny otrzymano intensywne wbudowanie nukleozydu w cytoplazmę komórek, zarówno pasożyta jak i gospodarza. Jedynie w komórkach centrów regeneracyjnych pszczół chorych stwierdzono mniej intensywne wbudowanie C14-urydyny aniżeli u osobników zdrowych.
W serii eksperymentów, w których pszczoły zakażone, przed podaniem piętnowanego nukleozydu otrzymały roztwór glukozy z dodatkiem preparatu Fumagillin DCH, wynik wbudowania C14-urydyny był raczej podobny do tego, jaki obserwowano u osobników zdrowych. Należy zaznaczyć, że ocena obrazów mikroskopowych w obu seriach doświadczeń była bardzo trudna, gdyż obecność piętna wykazywały zarówno komórki nabłonka, jak i komórki pasożyta. Do tego jeszcze niewielkie wymiary tych ostatnich utrudniały ustalenie różnicy w stopniu wbudowania C14-urydyny, która niewątpliwie występowała po podaniu leku. Na podstawie rozmieszczenia piętna uzyskanego w powyższych doświadczeniach, jak również na podstawie obniżonej pyroninofilności komórek nabłonka opanowanych przez pasożyty, można powiedzieć, że u pszczół zarażonych nosemą następuje znaczne obniżenie zdolności syntezy RNA w komórkach nabłonka jelita środkowego, natomiast leczenie Fumagilliną zdolność tę przywraca. Szczególnie wyraźnie zjawisko to występuje w komórkach regeneracyjnych.
Powyższe obserwacje są zgodne z poprzednio omówionymi wynikami naszych badań, dotyczących aktywności niektórych hydrolaz w nabłonku jelita środkowego pszczół chorych na nozematozę i leczonych Fumagilliną. Należy przypuszczać, że obniżenie aktywności badanych enzymów w jelitach środkowych pszczół zarażonych mogło być spowodowane zmniejszeniem stopnia syntezy tych enzymów. Prawdopodobnie było to wynikiem obserwowanej przez nas obniżonej intensywności syntezy RNA w tych komórkach. Pod wpływem leczniczego działania Fumagilliny stopniowo zostaje przywrócona zdolność komórek do intensywnej syntezy RNA, w wyniku czego może być przywrócony poziom syntezy białek enzymatycznych, właściwy komórkom przewodu pokarmowego pszczół zdrowych. Oczywiście słuszność tego przypuszczenia należałoby zweryfikować dalszymi badaniami, na przykład drogą bezpośredniego śledzenia syntezy białek w komórkach pszczół zdrowych, chorych i leczonych Fumagilliną przy zastosowaniu piętnowanych aminokwasów.
W omówionych wynikach badań przedstawiono efekty cytologiczne leczenia Fumagilliną pszczół chorych na nozematozę. Nie pozwalają one jednak na wyciągnięcie wniosków czy sugestii dotyczących przypuszczalnego mechanizmu działania tego antybiotyku. Sugestie takie nasuwają się nam z analizy wyników uzyskanych w doświadczeniach, w których śledzono syntezę DNA przy zastosowaniu piętnowanej H3-tymidyny. Tymidyna
strona 102stanowi charakterystyczny składnik kwasu dezoksyrybonukleinowego. Synteza, czyli tak zwana replikacja DNA następuje w komórkach przygotowujących się do podziału w ściśle określonym odcinku czasowym tak zwanej fazie S (Taylor 1963). Autoradiogramy otrzymane z jelita środkowego pszczół zdrowych, którym podawano H3-tymidynę przez okres 60 minut, nie wykazały wbudowania nukleozydu. Świadczy to o tym, że w przeciągu tego krótkiego czasu żadna z komórek nabłonka nie znajdowała się w fazie S. Natomiast po podaniu H3-tymidyny pszczołom chorym, obserwowano wbudowanie nukleozydu w niektóre komórki pasożyta. Z badań prowadzonych metodami pozwalającymi na dokładniejsze zróżnicowanie struktur cytologicznych wiadomo, że komórki te stanowią populacje wysoce niejednorodną na skutek ich niezsychronizowanego rozwoju. Zatem przy dużym nagromadzeniu różnych form rozwojowych szybko rozmnażającej się nosemy występują i takie, które aktualnie przechodzą przez okres replikacji DNA poprzedzający ich dalsze podziały. H3-tymidyna podawana zatem pszczołom zakażonym ulega niewątpliwie wbudowaniu w DNA tych stadiów rozwojowych nosemy, które aktualnie znajdują się w fazie S — fazie syntezy tego związku.
W serii równolegle przeprowadzonych doświadczeń, w których chore pszczoły przed otrzymaniem H3-tymidyny były przez 60 minut żywione roztworem glukozy z Fumagilliną, nigdy nie stwierdzono wbudowania podawanego nukleozydu. Otrzymany wynik, w porównaniu z poprzednim, pozwala przypuszczać, że podawany antybiotyk Fumagillin powoduje zahamowanie replikacji kwasu dezoksyrybonukleinowego w komórkach pasożyta i w ten sposób hamuje jego rozwój. Ponieważ cykle rozwojowe pasożyta nie są synchronizowane i odbywają się zupełnie niezależnie w poszczególnych komórkach nabłonka, skuteczność leczniczego działania Fumagilliny zależy od czasu podawania chorym pszczołom tego związku. Czas ten powinien być dostatecznie długi, żeby wszystkie komórki pasożyta znajdującego się w przewodzie pokarmowym pszczoły doszły w swym cyklu życiowym do fazy S, okresu syntezy DNA, w której dopiero może ulec zablokowaniu ich dalszy rozwój. Otrzymane przez nas i innych badaczy efekty lecznicze działania Fumagilliny przy długotrwałym, 2—3-tygodniowym stosowaniu tego leku, potwierdzają wysuniętą powyżej hipotezę.
W dostępnej literaturze nie znaleziono danych o mechanizmie działania Fumagilliny. Jedynie przytoczona praca Millsa (1955) na temat hamowania przez Fumagillinę namnażania się bakteriofagów przy jednoczesnym braku działania tego związku na fagi wolne, pozwala pośrednio przyjąć, że Fumagillina nie dopuszcza do replikacji DNA, który jest jednym z procesów zachodzących w czasie namnażania się faga.
Obecnie znanych jest w lecznictwie według Szemiakina (1961) około 1200 różnych antybiotyków, to jednak mechanizm działania ustalono zaledwie dla kilku z nich. Antybiotyki otrzymane najczęściej drogą
strona 103biosyntezy należą do grup bardzo różnych pod względem chemicznym. Drogą syntezy chemicznej uzyskano jedynie nieliczne, co naturalnie utrudnia ustalenie mechanizmu ich działania. I tak na przykład wiadomo, że penicylina wstrzymuje rozwój bakterii, blokując wytwarzanie błon bakteryjnych: streptomycyna blokuje przyłączenie mRNA/RNA przenoszącego informacje genetyczne z jądra do cytoplazmy (do ribosomów), chloramfenikol, jeden z nielicznych antybiotyków otrzymanych syntetycznie, hamuje przenoszenie aktywnych aminokwasów z sRNA (RNA rozpuszczalnego) do ribosomów, a tym samym syntezę białek: aktynomycyna tworzy połączenia kompleksowe z DNA, przez co uniemożliwia syntezę mRNA, puromycyna specyficznie hamuje syntezę białek przy zachowanej syntezie RNA i DNA (Gałasiński, 1966). Obserwacje wynikające z naszych doświadczeń pozwalają przypuszczać, że Fumagillin DCH działa blokująco na replikację DNA. Podana sugestia, dotycząca tego rodzaju mechanizmu działania Fumagilliny, wymaga jeszcze szerszego opracowania, chociaż otrzymane przez nas wyniki uprawniają do wysunięcia takiej hipotezy.
Wyniki badań autoradiograficznych otrzymanych przy podawaniu H3-tymidyny pszczołom zakażonym nosemą, oraz pszczołom zakażonym żywionym uprzednio w ciągu 60 minut roztworem glukozy z Fumagilliną, pozwalają przypuszczać, że metoda ta może mieć także zastosowanie praktyczne. Wydaje się mianowicie, że można ją zastosować do sprawdzenia aktywności importowanych serii antybiotyku Fumagillin DCH.
STRESZCZENIE I WNIOSKI
Badano metodami cytochemicznymi i autoradiograficznymi jelito środkowe pszczół zdrowych, zakażonych pasożytami nosema apis Zander i poddanych leczeniu preparatem Fumagillin DCH.
W komórkach nabłonka jelita środkowego pszczół zdrowych stwierdzono intensywną pyroninofilność cytoplazmy. Wykazano, że fosfataza alkaliczna i esteraza 5-bromoindoksylu przejawiają aktywność w komórkach wydzielniczych jelita, natomiast nie wykrywa się ich aktywności w komórkach regeneracyjnych i w jądrach komórek nabłonka. Fosfatazę kwaśną wykrywano zarówno w cytoplazmie komórek wydzielniczych, jak i w regeneracyjnych. U pszczół zakażonych obserwowano obniżenie pyroninofilności cytoplazmy komórek opanowanych przez nosemę przy jednocześnie stwierdzanej intensywnej pyroninofilności komórek pasożyta. Aktywność badanych enzymów była obniżona, a nawet w części cytoplazmy, opanowanej przez pasożyty, obserwowano zupełny brak aktywności.
U pszczół chorych poddanych leczeniu preparatem Fumagillin DCH po 6 dniach podawania leku, obserwowano pewne zwiększenie pyroninofilności
strona 104cytoplazmy zakażonych komórek nabłonka. Wyraźne zmniejszenie stopnia zakażenia stwierdzono po 12 dniach podawania leku. W nielicznie występujących jeszcze, zakażonych komórkach nadal jednak obserwowano obniżoną pyroninofilność i obniżenie aktywności badanych hydrolaz. Pozostałe komórki nabłonka wolne od pasożytów nie wykazywały żadnych różnic w pyroninofilności cytoplazmy i aktywności badanych enzymów w porównaniu z komórkami nabłonka pszczół zdrowych.
W badaniach autoradiograficznych stwierdzono w przypadku pszczół zdrowych intensywne wbudowanie C14-urydyny w cytoplazmę komórek nabłonka. Szczególnie intensywne wbudowanie obserwowano w komórkach centrów regeneracyjnych, nie obserwowano wbudowania H3-tymidyny. Natomiast podawanie tych samych nukleozydów pszczołom chorym wykazało również wbudowanie C14-urydyny w cytoplazmę komórek nabłonka, jak i w komórki pasożyta. Przy porównaniu z pszczołami zdrowymi nie zaobserwowano zwiększonego wbudowania podawanego nukleozydu w komórkach centrów regeneracyjnych. Przy podawaniu H3-tymidyny otrzymano wbudowanie w niektóre stadia rozwojowe pasożyta. W tych seriach doświadczeń, w których pszczoły przed podaniem piętnowanych związków otrzymały przez okres 60 minut preparat Fumagillin DCH. W przypadku C14-urydyny wyniki były zbliżone do wyników uzyskanych uprzednio, natomiast nie zaobserwowano wbudowania po podaniu H3-tymidyny.
Otrzymane wyniki pozwalają na wysunięcie następujących wniosków:
- opanowanie przez nosemę komórek nabłonka jelita środkowego pszczoły powoduje zmniejszenie lub nawet brak wykrywanej metodami cytochemicznymi aktywności fosfatazy alkalicznej, fosfatazy kwaśnej i esterazy 5-bromoindoksylu, co wskazuje na obniżenie aktywności fizjologicznej tych komórek;
- obniżenie stopnia pyroninofilności komórek opanowanych przez pasożyta nasuwa przypuszczenie, że nastąpiło obniżenie syntezy RNA w tych komórkach. Wyniki uzyskane w badaniach autoradiograficznych z zastosowaniem C14-urydyny potwierdzają to przypuszczenie, zwłaszcza odnośnie komórek centrów regeneracyjnych;
- podawanie preparatu Fumagillin DCH pszczołom chorym powoduje stopniowy powrót do stanu fizjologicznego; zarówno stopień pyroninofilności jak i aktywność badanych enzymów wraca do poziomu obserwowanego w komórkach pszczół zdrowych;
- leczenie preparatem Fumagillin DCH należy stosować w okresie dłuższym aniżeli 12 dni;
- przypuszczalne działanie lecznicze Fumagilliny polega na hamowaniu rozwoju pasożyta przez blokowanie w jego komórkach replikacji DNA.
LITERATURA
Bährmann R. (1965) — Vergleichend-histopatologische Untersuchungen an nosemakranken Honigbienen. Angew. Parasitol. 1—24.
Bailey L. (1953) — The Treatment of nosema disease with Fumagillin. Bee World 7, 136.
Bailey L. (1953b) — The transmission of nosema disease, Bee World 9, 171.
Bailey L. (1955) — The infection of the ventriculus of the adult honey bee by Nosema apis (Zander). Parasitology 45, 86—94.
Bailey L. (1959) — The natural mechanism of suppression of Nosema apis Zander in Enzootically Infected Colonies of the honey bee Apis mellifera Linnaeus, J. of Insect Pathol. 1, 347—350.
Bielańska-Osuchowska Z. (1960) — Histochemical studies on insect telotrophic ovaries. Zool. Poloniae 10,. 131—163.
Daniłko A. M. (1961) — Riezultaty opyta lečzeńja nosematoza pčzeł. Pčzełowodstwo 1, 29—30.
Day M. F. (1949) — The distribution of alkalines phosphatase in Insect. Aust. J. Sci. res. 2, 31—42.
Doull K. M. (1962) — A theory the causes of development of epizooties of nosema disease of the honey bee. J. econ. ent. 55, 3, 313—316.
Furgala B. (1962) — Residual Fumagillin activity in sugar syrup stored by wintering honey bee colonies. J. apic. Res. 1, 35—37.
Gałasiński W. (1966) — Aktinomycyny i ich antymetaboliczne działanie. Postępy Biochemii 12, 1, 127—153.
Gontarski V. H., Mebs D. (1964) — Eiweissfütterung und Nosemaentwicklung. Z. Bienenforschg. 7, 53—61.
Hassenein M. W. (1961) — The effects of infection with nosema apis of the pharyngeal salvary glands of the worker honey bee. Bee World 53, 171.
Hertig M. (1923) — The normal and pathological histology of the ventriculus of the honey bee with special to infection with Nosema apis. J. Parasitol. 9, 3, 109—140.
Jefree E. P. and Allen M. Dellia (1956) — The influence of colony size and in nosema disease on the of rate population loss in honey bee colonies in winter. J. Econ. Entomol. 49, 831—834.
Kalinowski J. (1964) — Zjadanie koszulek i odchodów larw przez pszczoły dorosłe. Pszczelarstwo 4, 4—6.
Katznelson H. and Jamieson C. A. (1952) — Control of Nosema disease of honey bees with Fumagillin. Science 115, 2977, 70—71.
Kirkor S. (1962) — Zagadnienie choroby zarodnikowcowej. Med. Wet. 18, 2, 68—71.
Kulikow N. S. (1961) — Leczeńje pczeł Fumagillinom ot nosematozy. Pčzeiowodstwo 5, 43.
Kulikow N. S. (1960) — Lečzeńje nosematoza pčzeł fumagillinom. Pčzełowodstwo 2, 43—46.
Kunst Lj. i Tomasec I. (1965) — O djelowaniu nakih lijokowa na mikrosporidiju Nosema apis. Vet. Arhiv. 36, 35—40.
Mills R. F. N. (1965) — The action of Fumagillin on a bakteriophage of Staphylococcus aureus. J. gen. Mikrobiol. 12, 39—44.
Mommers J. (1957) — Treatment of nosema disease with Nosemack and Fumidil B. Bee World. 3, 67—70.
Niemczuk W. (1964) — Ocena wartości preparatu Fumidil B. stosowanego łącznie z podkarmianiem na zimę pszczół chorych na nosematozę (Nosematosis opis). Wiad. Parazytol. 10, 11, 51—57.
strona 106Örösi Päl Z. (1966) — Die Wirkung des Weiselfuttersaften auf die Nosema Entwicklung. Z. Bienenforschg. 8, 5, 178—180.
Pearse A. (1960) — Histochemistry Theoretical and Applied. London, Churchil.
Połtiew W. I. (1957) — Poiski lečzebnych średstw protiw nosematoza. Pčzełowodstwo 4, 44—47.
Poteikina E. A. (1960) — Fizjołogičzeskoje sostojańje pčzeł osieńju i prodołżytielnost ich żizni pri nosematozie. Pčzełowodstwo. 37, 9, 18—19.
Przełęcka A. (1963) — Cytochemical Investigation on Lipid Assimilation by the Caterpillars Galleria mellonella E. Folia Biol. 11, 3.
Przełęcka A., Dutkowski A. (1965) — Autoradiographic Investigation of Incorporation of Fatty Acids into the Lipids of Insect Ovarioles. Bull. Acad. Pol. Sci. biol. 13, 10, 573—575.
Przełęcka A. (1966) — Nucleic Acid Metabolism and Cell Interaction in the Ovariole of Galleria mellonella. Fol. Histochem. Cytochem. 4, 3, 223—236.
Schulz Langer E. (1958) — Über das Vorkommen hoher Körpertemperaturen bei der Honigbiene mit entwicklungshemmender Wirkung auf den Parasiten Nosema apis Zander, Z. Bienenforschg. 4, 67—86.
Steche V. W. (1961) — Die Eiweisshaushalt des Bienenvolkes und die Nosematose der Honigbiene. Z. Bienenforschg. 5, 145—176.
Steche V. W. (1965) — Zur Ontegonie von Nosema apis Zander in Mitteldarm der Arbeitsbiene. Bulletin Apicole 8, 2, 181—212.
Taylor J. A. (1963) — Molecular genetics, Academic Press, New York 65—111.
ЦИТОХИМИЧЕСКИЕ ИССЛЕДОВАНИЯ СРЕДНЕЙ КИШКИ ПЧЕЛ РАБОТНИЦ
А. Гартвиг
Резюме
Цитохимическими и авторадиографическими методами исследовано среднюю кишку здоровых, пчел зараженных паразитом Nosema apis Zander и зараженных леченных Фумагиллином ДЦГ (дициклогексан). В эпителиальных клетках средней кишки здоровых пчел констатировано интенсивную пиронинофильность цитоплазмы. Доказано, что основная фосфатаза и эстераза 5-бромоиндоксила проявляют активност в выделательных клетках кишки, токда как активности их не обнаружено в регенеративных клетках и в ядрах клеток эпителия. Кислую фосфатазу обнаружено в цитоплазме и выделительных и регенеративных клеток. У зараженных пчел наблюдается снижение пиронинофильности цитоплазмы клеток пораженных ноземой. Одновременно обнаружено интенсивную пиронинофильность клеток паразита. Активность исследуемых энзимов была пониженной а в той части цитоплазмы, где находились паразиты она совсем исчезала.
У больных пчел, леченных Фумагиллином в течении 6 дней наблюдано некоторое увеличение пиронинофильности цитоплазмы зараженных клеток эпителия. После 12 дней подавания препарата константировано явственное понижение степени заражения. Однако редко уже попадающихся клетках с паразитом наблюдалось еще снижение активности гидролаз. В остальных эпителиалных клетках без паразитов пиронинофильность цитоплазмы и активность испытуемых энзимов были такие же как в клетках эпителия здоровых пчел.
При авторадиографических исследованиях константировано интенсивное вхождение атомов Ц14 — уридина в состав цитоплазмы клеток эпителия здоровых пчел. Особенно интенсивно это происходило в клетках регенеративных крипт;
strona 107вхождение же Г3-тимидина не наблюдалось. При подаванию тех же нуклеозидов больным пчелом показано вхождение Ц14-уридина и в цитоплазму клеток эпителия и в клетки паразита. При сравнении с здоровыми пчелами более обильное вхождение нуклеозыдов в клетки регенеративных крипт не было замечено. При подаванию Г3-тимидина наступало вхождение его в некоторые стадии развития паразита. Поставлено так да серии опытов, в которых пчелы перед поданием им меченых соединений в течение 60 минут получали Фумагиллин. При подавании Ц14 уридина результаты были схожи с ранее полученными, в случае же подавания Г3 тимидина его присвоения не наблюдалось.
CYTOCHEMICAL INVESTIGATIONS ON THE MIDGUT OF HONEY BEE WORKER
A. Hartwig
Summary
Cytochemical and autoradiophical methods have been used for testing mid-intestine of healthy bees which were infected by spores of Nosema Apis Zander and then treated with Fumagillin DCH. In the epithelical cells of mid-intestine of healthy bees were found intensive pyroninophility of cytoplasme and activity of alkaline phosphatase and 5-bromoindoxyl esterase are active in intestine cells, but there were not active in regeneration cells and in the nuclei of epithelical cells. Acid phosphatase was found in the cytoplasme of excretory cells as well as in the regeneration cells.
Infected bees had lower activity of cytoplasme pyroninophility but higher pyroninophilic activity of parasite cells. Activity of tested enzymes were lowered and in the part of cytoplasme which was havily infected by parasite were not active.
Treating of sick bees during 12 days with Fumagillin DCH increased pyroninophilic activity of cytoplasme of infected epithelical cells.
Errata — błędy druku znalezione podczas digitalizacji
- s. 77: „Aboot” → Abbott
- s. 78, 2×: „Entomoeba histolytica” → Entamoeba histolytica
- s. 78: „leczenie dezynterii” → leczenia dyzenterii
- s. 80: „HgPBP” → HgBPB
- s. 80: „Alfred” → Alfert
- s. 80, przypis: „Chinon Budapeszt” → Chinoin Budapeszt
- s. 83: „proctedeum” → proctodeum
- s. 85, tabl. 1: „Carney paraff.” → Carnoy paraff.
- s. 85, ryc. 4: „trudno przypuszczalnych” → trudno przepuszczalnych
- s. 87, ryc. 12: „5-bromoinodoksyl” → 5-bromoindoksyl
- s. 91, tabl. 4: „feeded” → fed
- s. 91, ryc. 24: „wydzieniczych” → wydzielniczych
- s. 91, ryc. 24: „5-bromoinodoksyl Fo-Ca” → 5-bromoindoksyl Fo-Ca
- s. 93, 2×: „radiogramms” → radiograms
- s. 93, ryc. 30: „powiększneiu” → powiększeniu
- s. 94: „posażyty” → pasożyty
- s. 95: „Tablica 2, ryc. 6″ → Tablica 2, ryc. 7
- s. 98: „Tablica 4, ryc. 25″ → Tablica 5, ryc. 25
- s. 99: „bąrwienia” → barwienia
- s. 99: „wyraźnie zmniejszenie” → wyraźne zmniejszenie
- s. 102: „populacje wysoce niejednorodną” → populację wysoce niejednorodną
- s. 102: „niezsychronizowanego” → niezsynchronizowanego
- s. 105, Bährmann: „histopatologische” → histopathologische
- s. 105, Day: „alkalines phosphatase” → alkaline phosphatase
- s. 105: „Hassenein” → Hassanein
- s. 105, Hassenein: „salvary” → salivary
- s. 105: „Jefree” → Jeffree
- s. 105, Kulikow 1961: „Pčzeiowodstwo” → Pčzełowodstwo
- s. 105, Mills: „bakteriophage” → bacteriophage
- s. 105, Niemczuk: „Nosematosis opis” → Nosematosis apis
- s. 106, Örösi Päl: „Weiselfuttersaften” → Weiselfuttersaftes
- s. 106, Pearse: „Churchil” → Churchill
- s. 106, Steche 1961: „Die Eiweisshaushalt” → Der Eiweisshaushalt
- s. 106, Steche 1965: „Ontegonie” → Ontogenie
- s. 106, Steche 1965: „in Mitteldarm” → im Mitteldarm
- s. 106, streszczenie: „активност” → активность
- s. 106, streszczenie: „выделательных” → выделительных
- s. 106, streszczenie: „токда” → тогда
- s. 106, streszczenie, 2×: „константировано” → констатировано
- s. 106, streszczenie: „эпителиалных” → эпителиальных
- s. 107, streszczenie, 2×: „При подаванию” → При подавании
- s. 107, streszczenie: „пчелом” → пчелам
- s. 107, streszczenie: „нуклеозыдов” → нуклеозидов
- s. 107, Summary: „autoradiophical” → autoradiographical
- s. 107, Summary, 3×: „epithelical” → epithelial
- s. 107, Summary, 5×: „cytoplasme” → cytoplasm
- s. 107, Summary: „havily” → heavily