

MORFOLOGICZNO-MATEMATYCZNE MODELE POPULACJI PSZCZOŁY KRAJOWEJ
tekst: Michał Gromisz, Leon Bornus
Pszczelnicze Zeszyty Naukowe, Rok XV, 1971 — Michał Gromisz, Leon Bornus
strona 1PSZCZELNICZE ZESZYTY NAUKOWE ROK XV, NR 1-2 WRZESIEŃ 1971
Michał Gromisz i Leon Bornus
Oddział Pszczelnictwa IS
WPROWADZENIE
W pracy hodowlanej konieczna jest szczegółowa znajomość wartości materiału, który poddaje się selekcji. Tylko w takim przypadku hodowcy mogą w pełni kontrolować osiągnięcia swojej pracy. Często starają się oni wprowadzać wzorcowe wartości poszczególnych cech a przede wszystkim optymalne dla rasy (populacji), nad którą pracują. Takie postępowanie znajduje szczególne uzasadnienie w pszczelarstwie, gdzie trudno wyeliminować kojarzenie matki z niepożądanymi trutniami.
Hodowcy, którzy wykorzystują wzorcowe wartości cech, rozpatrują przeważnie każdą cechę oddzielnie. Mają natomiast trudności z oceną badanego materiału na podstawie zespołu cech a tylko taka metoda pozwala na określenie podobieństwa badanego roju do wzorcowych populacji. Wychodząc z metody dendrytu wrocławskiego — (Perkal 1953), Bornus i Gromisz (1969) wprowadzili modele matematyczne populacji, które można opracować dla dowolnej liczby cech o różnym mianie. Podali oni przykład obliczania takich modeli dla pszczół ras: środkowo-europejskiej, kraińskiej i kaukaskiej. Opracowanie jakiejś populacji na podstawie badania licznej i reprezentatywnej próby, zezwala na obliczenie jej modelu matematycznego o dużej wartości praktycznej.
W Polsce populacja pszczoły miejscowej została opracowana morfologicznie przez Bornusa, Demianowicza i Gromisza (1966). Materiał zebrany do tego opracowania posłużył obecnie do obliczenia modelu matematycznego populacji pszczoły krajowej i modelów jej lokalnych populacji.
strona 2MATERIAŁ I METODA
W latach 1957—1958 zebrano na terenie kraju próbki pszczół do badań morfologicznych z 389 rojów (Bornus, Demianowicz i Gromisz 1966). Materiał ten posłużył obecnie do opracowania modeli matematycznych na podstawie średnich arytmetycznych dla rojów następujących cech morfologicznych robotnic: sumy szerokości III i IV tergitu odwłokowego (1), szerokości IV sternitu (2), długości języczka (3), powierzchni lusterka woskowego (4), długości skrzydła przedniego (5), szerokości skrzydła przedniego (6), liczby haczyków na tylnym skrzydle (7), indeksu kubitalnego na przednim skrzydle (8).
Modele matematyczne skonstruowano dla całego zbioru rojów (populacja zbiorcza) oraz dla populacji rojów poszczególnych regionów kraju według podziału wprowadzonego przez Bornusa, Demianowicza i Gromisza (1966, ryc. 1). Opracowano także dwa zasadnicze typy pszczoły, jakie ci autorzy wyodrębnili na podstawie badania populacji krajowej metodą taksonomii wrocławskiej (Perkal 1953).
W celu skonstruowania modelu matematycznego każdej populacji obliczono dla niej średnie arytmetyczne (x̄) poszczególnych cech z sumy średnich (x) dla rojów, następnie standardowe odchylenie (S) tych cech wewnątrz populacji. Zastosowanie w dalszych obliczeniach wzoru: (x — x̄)/S daje bezwzględne wartości unormowanych cech (Bornus i Gromisz 1969). Suma bezwzględnych wartości unormowanych poszczególnych cech podzielona przez ich liczbę (n) wyznacza średni wskaźnik podobieństwa:
y = Σ |(x — x̄)/S| / n
Przyjęto, że roje, których wskaźnik podobieństwa nie przekracza 3, można zaliczyć do populacji przedstawionej modelem matematycznym.
WYNIKI I DYSKUSJA
MODEL ZBIORCZEJ POPULACJI PSZCZÓŁ KRAJOWYCH
Wartości średnich arytmetycznych i standardowe odchylenie 8 cech pszczół populacji krajowej, oznaczone na podstawie badania 389 rojów, przedstawiają się następująco:
| Nazwa cechy | nr cechy | x | S |
|---|---|---|---|
| Suma szerokości III i IV tergitu odwłokowego w mm | 1 | 4,850 | 0,119210 |
| Nazwa cechy | nr cechy | x̄ | S |
|---|---|---|---|
| Szerokość IV sternitu w mm | 2 | 2,723 | 0,039993 |
| Długość języczka w mm | 3 | 6,149 | 0,110633 |
| Powierzchnia lusterka woskowego w mm2 | 4 | 2,717 | 0,079879 |
| Długość skrzydła przedniego w mm | 5 | 9,357 | 0,089846 |
| Szerokość skrzydła przedniego w mm | 6 | 3,166 | 0,047668 |
| Liczba haczyków | 7 | 20,6 | 0,744 |
| Indeks kubitalny | 8 | 60,3 | 5,399 |
Model matematyczny populacji pszczoły krajowej obliczany dla tego zespołu cech przybiera ostateczną postać:
y = 1,049.x1 — 5,086 + 3,126.x2 — 8,511 + 1,130.x3 — 6,948 + 1,565.x4 — 4,252 + 1,391.x5 — 13,018 + 2,622.x6 — 8,302 + 0,168.x7 — 3,461 + 0,023.x8 — 1,396
Stosując model należy w miejsca x podstawić odpowiednie wartości cech charakteryzowanego dowolnego roju i wykonać działania. Wynik określa stopień podobieństwa tego roju w stosunku do zbiorczej populacji krajowej. Wskaźnik podobieństwa bliski zera informuje, iż wartości cech ocenianego roju są bardzo bliskie średnim ich wartościom dla populacji. Przynależność roju do tej populacji jest wtedy oczywista. Natomiast można ją kwestionować, gdy wskaźnik podobieństwa przybliża się lub jest większy od liczby 3.
Przedstawiony model matematyczny pozwala oceniać każdy dowolny rój w zakresie podobieństwa od pszczoły krajowej pod względem 8 cech morfologicznych. Liczny materiał badawczy, na którego podstawie model został opracowany, gwarantuje rzetelność takiej oceny. Musimy jednak pamiętać, że model ilustruje populację statycznie, w naszym przypadku z lat 1957—1969. Przy konfrontacji pszczół krajowych tamtych czasów z pszczołami obecnymi mogą zarysować się pewne kierunkowe odchylenia, wywołane dynamiką rozwoju morfologicznego pszczół na skutek oddziaływania selekcji naturalnej i sztucznej oraz migracji. Mimo tego przydatność modeli matematycznych populacji jest wielostronna i można korzystać z nich w praktyce i w badaniach naukowych.
MODELE POPULACJI REGIONALNYCH
Morfologiczne opracowanie pszczoły krajowej ujawniło różnicowanie się populacji zbiorczej na podłożu geograficznym (Bornus, Demianowicz i Gromisz 1966). Podany przez nas tu model matematyczny populacji w zasadzie obejmuje pszczołę krajową, z regionalnymi populacjami nawet różniącymi się wyraźnie.
Nasi hodowcy pracują nad pszczołą miejscową, a zatem obiektem ich
strona 4starań są ograniczone terytorialnie populacje, których odrębność w toku selekcji często się jeszcze wzmaga. Ocena wyników ich pracy na podstawie ogólnego modelu populacji pszczoły krajowej nie określa dość precyzyjnie stopnia podobieństwa rojów w obrębie lokalnej populacji, jest zatem za ogólna.
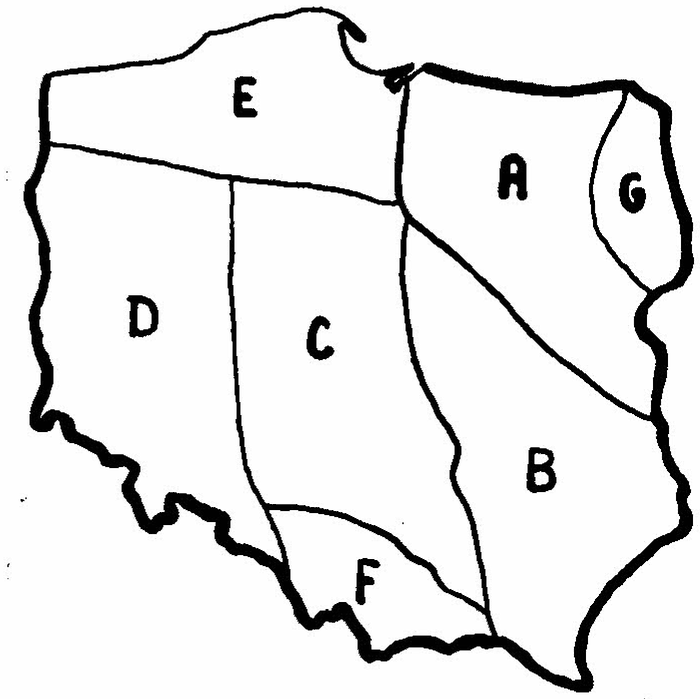
Ryc. 1. Geograficzne zasięgi regionalnych populacji pszczoły krajowej (według Bornusa, Demianowicza, Gromisza 1966) Geografic spread of regional populations of honeybees in Poland (according to Bornus, Demianowicz, Gromisz 1966)
Pragniemy przedstawić oddzielnie modele matematyczne populacji pszczół dla wyodrębnionych mniejszych obszarów geograficznych wewnątrz kraju. Przyjęliśmy do opracowania wydzielone na mapie Polski przez Bornusa, Demianowicza i Gromisza (1966) 7 regionów, które oni oznaczyli literami od A do G (ryc. 1). Każdy z tych regionów charakteryzuje się odrębną strukturą pogłowia pszczół pod względem morfologicznym. Liczebność badanych rojów w poszczególnych regionach układa się następująco: A — 73, B — 44, C — 53, D — 84, E — 53, F — 57, G — 25.
Model populacji pszczół regionu A: y = 1,822.x1 — 8,948 + 2,948.x2 — 7,989 + 3,765.x3 — 22,970 + 1,151.x4 — 3,147 + 1,840.x5 — 16,896 + 3,612.x6 — 11,426 + 0,167.x7 — 3,442 + 0,031.x8 — 1,993
Model populacji pszczół regionu B: y = 1,372.x1 — 6,716 + 4,417.x2 — 12,019 + 2,551.x3 — 15,668 + 1,515.x4 — 4,147 + 1,652.x5 — 14,718 + 3,342.x6 — 10,628 + 0,202.x7 — 4,151 + 0,029.x8 — 1,720
Model populacji pszczół regionu C: y = 0,073.x1 — 4,724 + 4,167.x2 — 11,312 + 1,768.x3 — 10,864 + 1,768.x4 — 4,798 + 1,905.x5 — 17,836 + 3,613.x6 — 11,420 + 0,174.x7 — 3,592 + 0,031.x8 — 1,898
strona 5Model populacji pszczół regionu D: y = 1,192.x1 — 5,783 + 2,948.x2 — 7,986 + 0,792.x3 — 4,823 + 1,433.x4 — 3,831 + 1,132.x5 — 10,421 + 2,729.x6 — 8,616 + 0,167.x7 — 3,462 + 0,023.x8 — 1,351
Model populacji pszczół regionu E: y = 1,127.x1 — 5,409 + 2,867.x2 — 7,833 + 1,515.x3 — 9,354 + 1,786.x4 — 4,898 + 1,528.x5 — 14,254 + 2,948.x6 — 9,269 + 0,191.x7 — 3,896 + 0,034.x8 — 2,114
Model populacji pszczół regionu F: y = 1,181.x1 — 5,688 + 3,765.x2 — 10,297 + 1,406.x3 — 8,799 + 1,493.x4 — 4,041 + 1,238.x5 — 11,580 + 1,929.x6 — 6,177 + 0,137.x7 — 2,857 + 0,023.x8 — 1,233
Model populacji pszczół regionu G: y = 1,433.x1 — 6,769 + 5,102.x2 — 14,117 + 1,717.x3 — 10,656 + 2,867.x4 — 7,913 + 1,167.x5 — 10,938 + 2,948.x6 — 9,313 + 0,180.x7 — 3,705 + 0,023.x8 — 1,468
MODELE DWÓCH ZASADNICZYCH TYPÓW PSZCZOŁY W POLSCE
Na podstawie badań morfologicznych Bornus, Demianowicz i Gromisz (1966) wyodrębnili w populacji krajowej dwa zasadnicze typy pszczoły: typ I i typ II. Roje tych typów charakteryzują się wewnątrz dużym podobieństwem pod względem 8 cech morfologicznych. Na rysunku dendrytu stanowią one zwarte grupy wśród całego zbioru badanych rojów.
W przeważającej części kraju pszczoły typu I i typu II występują obok siebie (z wyjątkiem: regiony A, D, G) wraz z rojami je uzupełniającymi, które pod względem morfologicznym zbliżają się do I bądź II typu. Poszczególni hodowcy tego samego regionu mogą więc selekcjonować pszczoły zasadniczo się różniące fenotypowo. Do należytej oceny wyników ich pracy model regionalnej populacji jest niewystarczający. Potrzebne są raczej modele obu głównych typów pszczoły. Obliczenie ich poprzedzamy podaniem średnich wartości cech morfologicznych pszczoły typu I i typu II na podstawie badania 136 i 32 rojów:
| nr cechy | typ I | typ II |
|---|---|---|
| 1 | 4,901 mm | 4,732 mm |
| 2 | 2,713 mm | 2,758 mm |
| 3 | 6,115 mm | 6,227 mm |
| 4 | 2,735 mm2 | 2,753 mm2 |
| 5 | 9,369 mm | 9,353 mm |
| 6 | 3,164 mm | 3,141 mm |
| 7 | 20,5 | 20,5 |
| 8 | 61,5 | 61,5 |
Model matematyczny pszczoły typu I: y = 3,956.x1 — 19,387 + 7,225.x2 — 19,602 + 3,342.x3 — 20,347 + 2,796.x4 — 7,648 + 1,953.x5 — 18,298 + 3,765.x6 — 11,912 + 0,207.x7 — 4,236 + 0,036.x8 — 2,199
Model matematyczny pszczoły typu II: y = 2,609.x1 — 12,348 + 6,250.x2 — 17,237 + 2,083.x3 — 12,973 + 2,551.x4 — 7,023 + 2,796.x5 — 26,154 + 4,417.x6 — 13,873 + 0,200.x7 — 4,097 + 0,044.x8 — 2,706
ADAPTACJA MODELI W ZALEŻNOŚCI OD LICZBY CECH
W opracowanych przez nas modelach matematycznych uwzględniono 8 cech morfologicznych. Nie wszystkie te cechy przedstawiają jednakową wartość taksonomiczną, o czym nie raz wspominaliśmy w opracowaniach Oddziału Pszczelnictwa IS. Niektóre z nich są poza tym pracochłonne w oznaczaniu. Dlatego często w badaniach ograniczamy się do mniejszej liczby cech, dobierając je według różnych kryteriów. Podane w tej pracy modele matematyczne można przekształcić, wybierając tylko niektóre z uwzględnionych tam cech. W tym celu należy pozostawić te elementy obliczeniowe modelu, które dotyczą wybranych cech i każdy z nich pomnożyć przez odpowiedni współczynnik. Wartość tego współczynnika różnicuje się w zależności od liczby dobranych cech:
| liczba cech | wartość współczynnika |
|---|---|
| 7 | 1,14 |
| 6 | 1,33 |
| 5 | 1,60 |
| 4 | 2,00 |
| 3 | 2,67 |
| 2 | 4,00 |
Podajemy przykład adaptacji modelu matematycznego dla zbiorczej populacji pszczoły krajowej przy zredukowaniu zespołu cech z 8 do 3, a mianowicie: do sumy szerokości III i IV tergitu odwłokowego, długości języczka i indeksu kubitalnego (numery cech: 1, 3, 8). Z ogólnego wzoru wybieramy odpowiednie trzy elementy obliczeniowe, a mianowicie:
1,049.x1 — 5,086, 1,130.x3 — 6,948 i 0,023.x8 — 1,396
Wykonujemy mnożenie każdego składnika przez współczynnik 2,67 (odpowiada 3 cechom) i układamy model populacji na podstawie 3 wybranych cech
y = 2,796.x1 — 13,562 + 3,013.x3 — 18,527 + 0,062.x8 — 3,723
Ten adaptowany model populacji pszczół krajowych może być wykorzystany w naszych pasiekach zarodowych, gdzie w ocenie materiału hodowlanego
strona 7uwzględnia się te właśnie 3 cechy morfologiczne. Dla pasiek selekcjonujących pszczołę typu I lub typu II podajemy w podobny sposób adaptowane modele dla potrzeb hodowlanych:
Adaptowany model matematyczny pszczoły typu I: y = 10,562.x1 — 51,763 + 8,923.x3 — 54,567 + 0,096.x8 — 5,871
Adaptowany model matematyczny pszczoły typu II: y = 6,966.x1 — 32,969 + 5,562.x3 — 34,638 + 0,117.x8 — 7,225
UWAGI O STOSOWANIU MATEMATYCZNYCH MODELI POPULACJI
O przynależności roju do danej populacji informuje wartość jego wskaźnika podobieństwa. Przyjęliśmy, że pozytywną ocenę otrzymuje rój o wskaźniku mniejszym od 3,0. Przy posługiwaniu się modelem dla zbiorczej populacji pszczoły krajowej wyniki takiej oceny są jednoznaczne; albo rój mieści się w obrębie tej populacji, albo można go z niej wykluczyć. Wątpliwości nasuwają się dopiero wtedy, kiedy pragniemy znaleźć miejsce tego roju w populacjach regionalnych. Może on odpowiadać więcej niż jednemu z podanych przez nas modeli.
W celu zilustrowania z tego zakresu różnych sytuacji wybraliśmy w pasiekach zarodowych na terenie kraju 6 rojów o wartościach cech 1, 3. 8:
| nr roju | 1 | 3 | 8 |
|---|---|---|---|
| 37 | 4,677 mm | 6,754 mm | 48,7 |
| 41 | 4,800 mm | 6,225 mm | 54,4 |
| 67 | 4,942 mm | 6,075 mm | 60,5 |
| 83 | 4,966 mm | 5,974 mm | 60,0 |
| 207 | 4,778 mm | 6,340 mm | 57,7 |
| 213 | 4,821 mm | 6,149 mm | 60,3 |
Ich wskaźniki podobieństwa obliczone na podstawie modelu zbiorczej populacji krajowej i modeli pszczół typu I i pszczół typu II przedstawiają się następująco:
| nr roju | podobieństwo do populacji zbiorczej | podobieństwo do typu I | podobieństwo do typu II |
|---|---|---|---|
| 37 | 3,01 | 9,26 | 4,85 |
| 41 | 0,72 | 2,75 | 1,32 |
| 67 | 0,51 | 1,00 | 2,43 |
| 83 | 0,85 | 1,97 | 3,32 |
| 207 | 0,92 | 3,67 | 1,47 |
| 213 | 0,10 | 1,27 | 1,10 |
W stosunku do roju nr 37 nie mamy zupełnie wątpliwości, znalazł się on poza populacją pszczoły krajowej, a więc i również poza obrębem jej
strona 8typu I i II. Jednoznaczna jest także ocena roju 83 i roju 207, oba odpowiadają pszczole krajowej, ale każdy z nich przedstawia inny jej typ. Natomiast pszczoły rojów nr 41, 67 i 213 reprezentują niewątpliwie populację krajową, ale z określeniem ich typu natrafiamy na trudności. Można je zaliczyć do I lub II typu, bo spełniają warunki stawiane dla każdego z tych typów (wskaźniki podobieństwa mniejsze od 3,0).
Układ ten jest mimo tego zrozumiały. Wynika on z częściowego pokrywania się wartości cech rojów typu I i typu II w obrębie populacji zbiorczej. Dobrze to ilustrują wykresy na rycinie 2. Część rojów obu tych typów pszczoły mieści się we wspólnym przedziale o rozpiętości od 4,68 mm
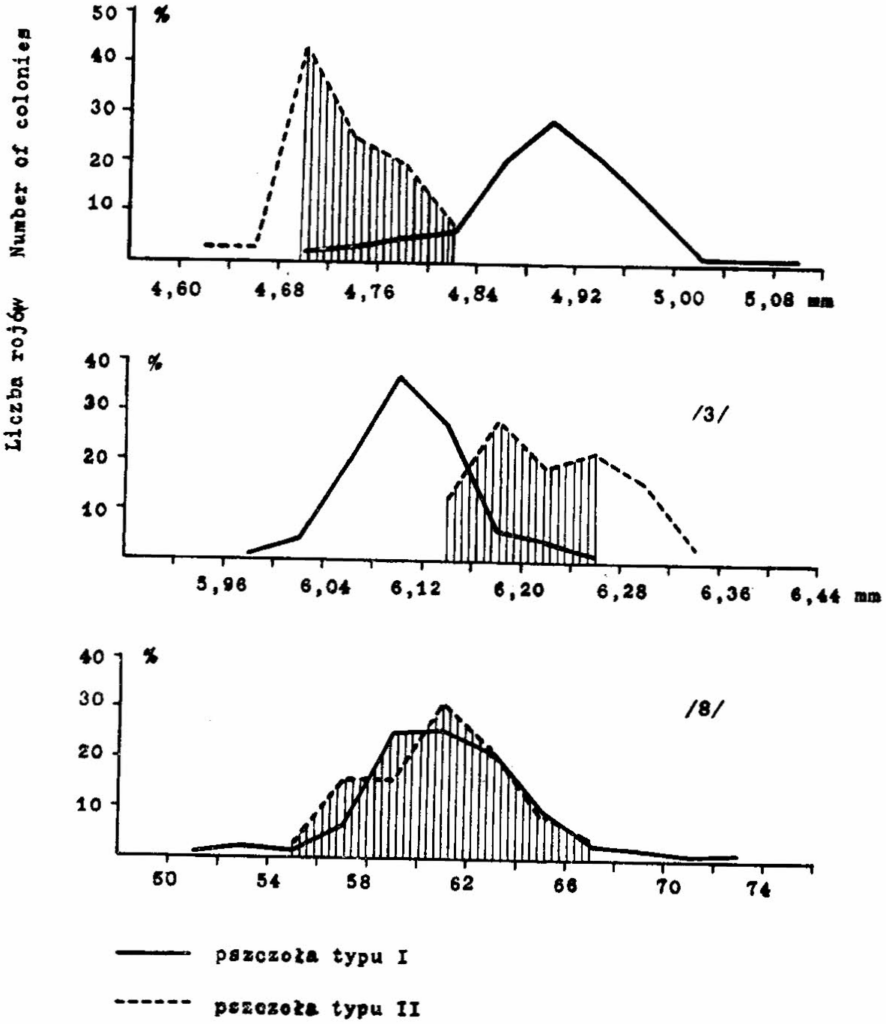
Ryc. 2. Krzywe zmienności średnich z rojów: a) sumy szerokości tergitów odwłokowych (1), b) długości języczka (3) i c) indeksu kubitalnego (8) Variation curves of averages of colonies: a) sum of width of abdominal tergites, b) length of proboscis (3), c) cubital index (8)
strona 9do 4,84 mm dla sumy szerokości III i IV tergitu odwłokowego i od 6,12 mm do 6,28 mm dla długości języczka oraz od 54 do 66 dla indeksu kubitalnego. Jeżeli oceniany rój znajdzie się w tym przedziale, jesteśmy bezradni w ustaleniu jego przynależności taksonomicznej. Możemy jednakże określić jego podobieństwo w stosunku do typu I i do typu II, i na podstawie różnicy w wartości wskaźników dokonać odpowiedniej kwalifikacji lub właściwego wyboru rojów.
Ten sposób oceny rojów jest szczególnie przydatny w pracy selekcyjnej, gdzie poszczególni hodowcy pragną utrzymać wewnątrz ras odrębność swoich populacji zarodowych, ze względu na skomasowane w nich korzystne właściwości. Populacje ich pszczół są na tyle bliskie pogłowiu innych pasiek zarodowych, że nie można jednoznacznie uznać ich systematycznej odrębności. Lecz można określać ich stopień podobieństwa w stosunku do pszczół poszczególnych pasiek zarodowych lub populacji nieselekcjonowanych, uzyskując na tej podstawie informacje o wielkości różnicy między nimi, która jest pewnego rodzaju miarą osiągnięć hodowlanych. Do takiej oceny potrzebne są modele różnych pokrewnych populacji, z których jedna ma być wzorcową dla hodowcy. W naszym przykładzie będą to modele geograficznie sąsiadujących populacji lub modele pszczół typu I i typu II. W praktyce pragniemy jednak zwykle uzyskiwać informacje o podobieństwie roju do określonego z góry typu pszczoły (na przykład typ I), nie interesując się innymi, bliskimi im populacjami. Do tego celu wystarcza jeden z wybranych modeli populacji szerszej, do której należą selekcjonowane pszczoły.
Przy ocenie roju w stosunku do dwóch typów pszczoły w obrębie tej samej rasy stają się pomocne proste tabele, na których można wyznaczyć miejsce tego roju. Na rycinie 3 podajemy wzór takiej tabeli, zestawiającej pszczoły typu I i typu II. Zaznaczyliśmy na niej miejsca rojów wykorzystanych uprzednio w przykładzie (rój 37 znalazł się poza tabelą). Liczbowe wyniki zostały więc przedstawione przestrzennie na płaszczyźnie. W ten sposób uzyskaliśmy możność konfrontacji nie tylko oddzielnie każdego roju ale równolegle i całej ich grupy, a więc także i w pewnym sensie oceny wzajemnego między nimi podobieństwa. Dla ułatwienia w posługiwaniu się tabelą, można oznaczać na niej pewne obszary, które zamykają miejsca rojów odpowiadających swymi cechami wymaganiom hodowcy.
Jako granice obszarów na naszej tabeli przyjęliśmy linie odpowiadające wskaźnikom podobieństwa o wartości 3,0. Rojom, które na tej tabeli znajdą się na prawo od grubej pionowej linii, odmówimy przynależności do I typu pszczoły. Podobnie nie zakwalifikują się do typu II roje umiejscowione poniżej linii poziomej na wysokości wskaźnika równego 3,0. Wszystkie inne na lewo i do góry od tych linii, mogą wprawdzie spełniać wymagania stawiane tym obu typom, ale zostaje uwidoczniona ich odległość od każdego z nich, co już jest wartościową informacją dla hodowcy. Jednakże
strona 10do interpretowania takich wyników niezbędne są kryteria umowne. Mogą one znaleźć także wyraz w oznaczaniu granic obszarów na tabeli co znacznie ułatwia ocenę rojów na podstawie zespołu cech. W konstrukcji odpowiedniego układu tabeli bierzemy pod uwagę kierunek i kryterium stosowanej selekcji. Można na przykład za kryterium w kwalifikowaniu rojów przyjąć granicę wskaźnika podobieństwa nie 3,0 ale 2,0, co zmierza do zachowania wzorcowego typu pszczoły. Na naszej tabeli zakreśliliśmy
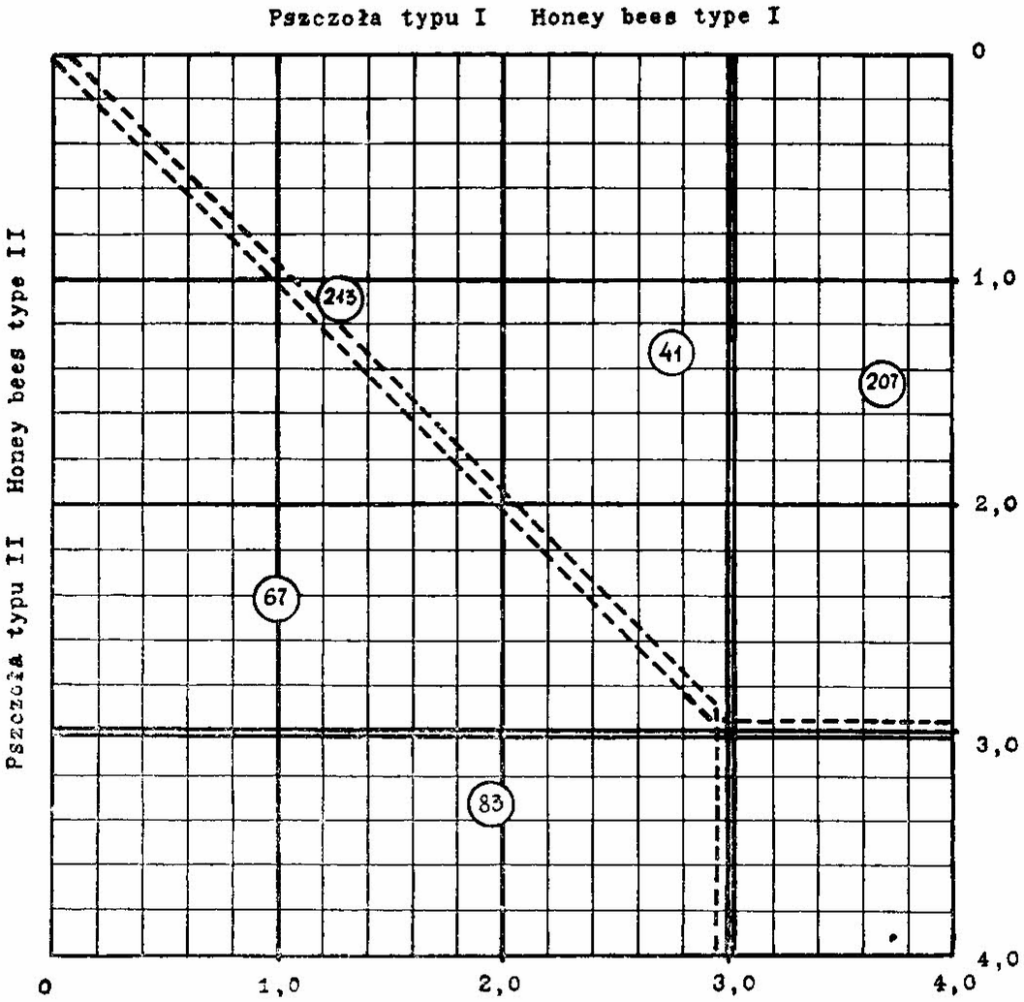
Ryc. 3. Schemat oznaczania podobieństwa rojów w stosunku do dwóch typów pszczoły (objaśnienie w tekście) Designation scheme of colonies affinity in relation to two types of honeybee (explanation in the text)
przerywaną linią obszary, na których znajdują się miejsca rojów bliższych pszczołom typu I niż II (u dołu tabeli), bądź bliższych pszczołom typu II niż I (u góry tabeli).
Odpowiednio skonstruowana tabela informuje bezpośrednio o materiale selekcyjnym, jakim rozporządza pasieka i pozwala zarazem na wybranie odpowiednich rojów do reprodukcji. Daje także dokładną ocenę wyrównania pogłowia pasieki zarodowej. Jeśli rozrzut miejsc rojów na tablicy wzrasta, tym wyrównanie jest mniejsze.
strona 11TABELE PRZELICZENIOWE
Praktyczne zalety przedstawionego na rycinie 3 wzoru tabeli wydają się niewątpliwe. Do korzystania z niej niezbędna jest znajomość wskaźników podobieństwa ocenianych rojów. Obliczenia według podanych wzorów są proste, ale wymagają nieco trudu, zwłaszcza gdy oceniamy większą grupę rojów. Dla uproszczenia pracy skonstruowaliśmy graficzne tabele obliczeniowe, na których można odczytywać wskaźniki podobieństwa, znając średnie wartości cech dla roju (ryc. 4). Odczytów dokonujemy dla każdej cechy oddzielnie w stosunku do pszczoły typu I i typu II. Następnie z sumy tych odczytów w obrębie każdego typu pszczoły obliczamy średni wskaźnik podobieństwa dla danego roju. Wskaźniki podobieństwa 6 rojów, które wybrano dla zilustrowania przykładami opracowania, zostały obliczone przy pomocy tych tabel (wyjątek rój nr 37). Podajemy tok obliczeń dla roju nr 41, o średnich wartościach cech: a) szerokości sumy III i IV tergitu odwłokowego — 4,800 mm, b) długości języczka — 6,225 mm i c) indeksie kubitalnym — 54,4. Odczyty z tych tabel przeliczeniowych według tej samej kolejności cech wynoszą:
| dla typu 1: | dla typu II: |
|---|---|
| a — 3,10 | a — 1,50 |
| b — 3,00 | b — 0,05 |
| c — 2,15 | c — 2,70 |
| 8,25 | 4,25 |
Sumy odczytów: 8,25 i 4,25 dzielimy przez liczbę cech — 3 i otrzymujemy średnie wskaźniki podobieństwa 2,75 i 1,32 w stosunku do pszczół typu I i typu II.
WNIOSKI
Opracowane modele i wzorce obliczeniowe dają możliwość dokładnego określania stopnia podobieństwa morfologicznego badanego roju pszczół do populacji regionalnej lub populacji strefy geograficznej oraz określania stopnia postępu hodowlanego w pasiekach zarodowych. Wykorzystanie tego wzoru do charakterystyki cech biologicznych jest sprawą niedalekiej przyszłości.
LITERATURA
Bornus L., Demianowicz A., Gromisz M. (1966) — Morfometryczne badania krajowej pszczoły miodnej (Apis mellifica L.). Pszczeln. Zesz. Nauk., 10 (1—4): 1—46
Bornus L. i Gromisz M. (1966) — Matematyczne modele populacji pszczół różnych ras. Pszczeln. Zesz. Nauk., 13 (1—3): 73—83
Perkal J. (1953) — Taksonomia wrocławska. Przegl. Antropolog., 19: 82—105
strona 12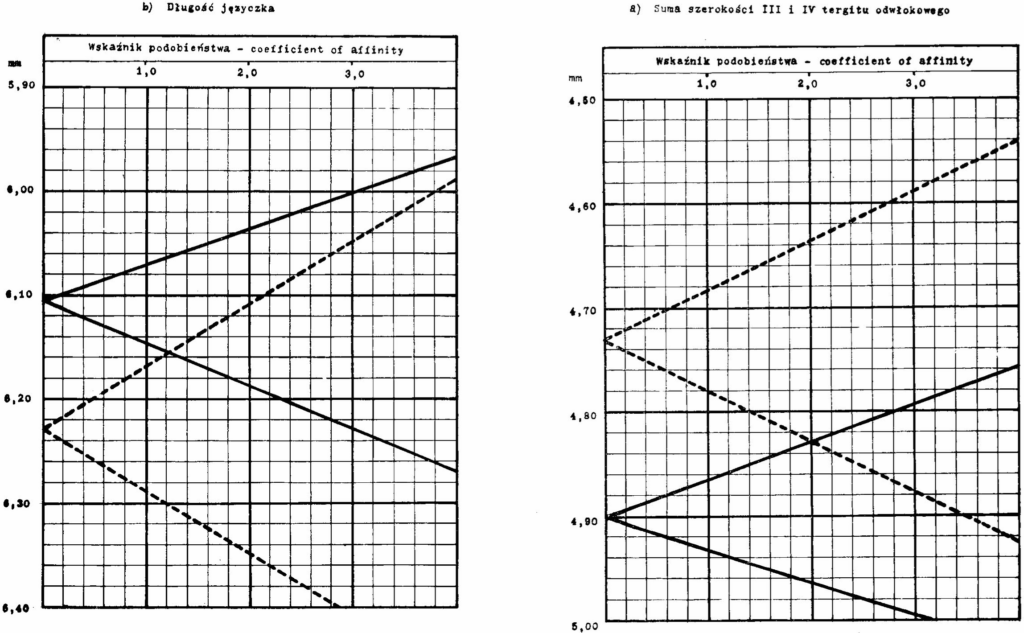
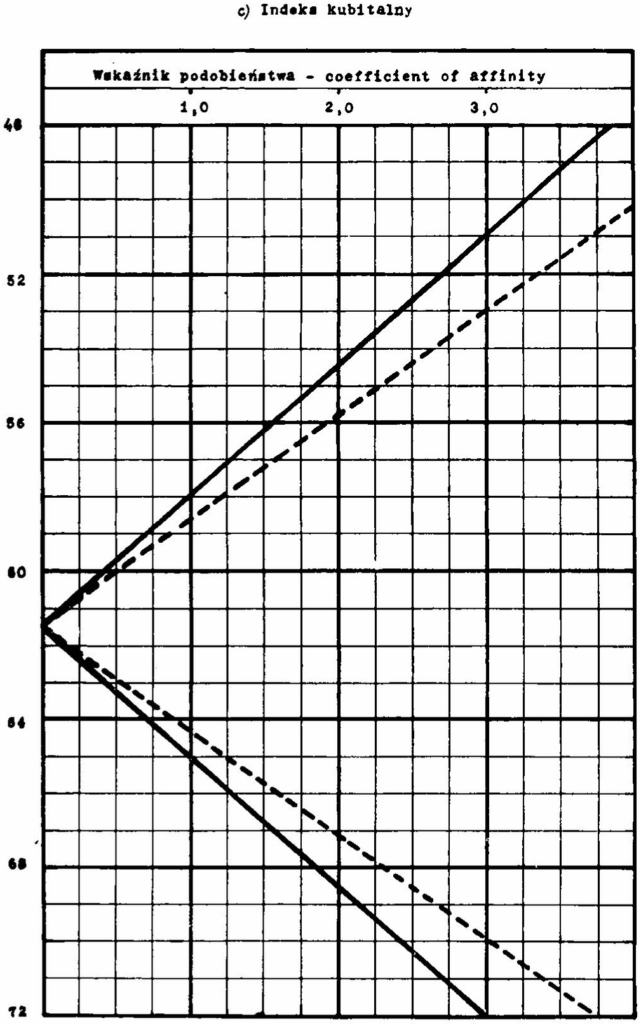
Ryc. 4. Tabela do obliczania wskaźników podobieństwa Table for calcultion indexes of affinity a) suma szerokości III i IV tergitu odwłokowego a) sum of width of III and IV abdominal tergites b) długość języczka b) proboscis length c) indeks kubitalny c) cubital index
strona 14МОРФОЛОГИЧНО-МАТЕМАТИЧЕСКИЕ МОДЕЛИ ПОПУЛЯЦИИ МЕСТНОЙ ПЧЕЛЫ
М. Громиш и Л. Борнус
Резюме
Измерая 8 морфологических признаков пчел работниц из 389 пчелосемей сделано для весь популяции математический модел:
y = 1,049 x1 — 5,086 + 3,126 x2 — 8,511 + 1,130 x3 — 6,948 + 1,565 x4 — 4,252 + 1,391 x5 — 13,018 + 2,622 x6 — 8 302 + 0,168 x7 — 3,461 + 0,023 x8 — 1,396
В состав промера взято следующие признаки: 1) сумму ширины III и IV тергитов, 2) ширину IV стернита, 3) длину хоботка, 4) поверхность зеркальца иа IV стерните, 5) длину переднего крыла, 6) ширину этого крыла, 7) число зачепок на заднем крыле, 8) кубитальный инлекс.
Исследуя пчелосемию по морфологии надо ее признаки вписать в модел y (x1, x2, x3, x4, x5, x6, x7, x8). Результатом будет коеффисиент сходства ее с целой популяцию. Нульовый результат значит полное сходство а чем высщий от нуля тем сходство меньше.
MORPHOLOGIC — MATHEMATIC MODEL OF LOCAL HONEYBEE POPULATION
M. Gromisz and L. Bornus
Summary
On the basis of measured 8 morphological features of bee workers in 389 colonies the mathematical model of local bee population elaborated:
y = 1,049 x1 — 5,086 + 3,126 x2 — 8,511 + 1,130 x3 — 6,948 + 1,565 x4 — 4,252 + 1,391 x5 — 13,018 + 2,622 x6 — 8,302 + 0,168 x7 — 3,461 + 0,023 x8 — 1,396
Taken into consideration in the selection of features were: 1) the sum widths of the III and IV tergit; 2) the width of the IV sternit, 3) the length of the tongue, 4) the surface of the wax plate, 5) the length of front wing, 6) the width of the front wing, 7) the number of hooklets and 8) the value of the cubital index.
After substituting into this formula the value (x) of the investigated colony, one can get the indicator similarity of this colony to the whole population.
If indicator equals zero this indicates full similarity, but with the increases of indicators the similarity decreases.
Errata — błędy druku znalezione podczas digitalizacji
- s. 4, ryc. 1: „Geografic” → Geographic
- s. 6, model typu I: „20,347″ → 20,437
- s. 11: „dla typu 1:” → dla typu I:
- s. 11, literatura: „Bornus L. i Gromisz M. (1966)” → Bornus L. i Gromisz M. (1969)
- s. 13, ryc. 4: „calcultion” → calculation
- s. 14, streszczenie: „Измерая” → Измеряя
- s. 14, streszczenie, 2×: „модел” → модель
- s. 14, streszczenie, wzór: „8 302″ → 8,302
- s. 14, streszczenie: „иа IV стерните” → на IV стерните
- s. 14, streszczenie: „зачепок” → зацепок
- s. 14, streszczenie: „инлекс” → индекс
- s. 14, streszczenie: „коеффисиент” → коэффициент
- s. 14, streszczenie: „Нульовый” → Нулевой
- s. 14, streszczenie: „высщий” → высший