

DROŻDŻAKI WYSTĘPUJĄCE W NEKTARACH KWIATOWYCH
tekst: Marta Rychlik-Doleżal
Pszczelnicze Zeszyty Naukowe, Rok IV, Nr 1, kwiecień 1960 — Marta Rychlik-Doleżal
strona 57PSZCZELNICZE ZESZYTY NAUKOWE ROK IV Nr 1 KWIECIEŃ 1960
Marta Rychlik-Doleżal
(Praca wykonana w Zakładzie Mikrobiologii Rolnej WSR w Krakowie. Kierownik: Doc. Dr Bolesław Smyk)
WSTĘP
Drożdżaki występują w przyrodzie w licznych środowiskach, szczególnie wiele spotykamy ich w płynach o dużej zawartości cukrów, a za tym także i w nektarach kwiatowych.
W ilościowych badaniach nektarów kwiatowych stwierdzono, że większość badanych kwiatów zawierała zaledwie kilka komórek drożdżowych lub nie zawierała ich wcale, tylko w niektórych kwiatach spotykano dużą ich liczbę (9). W kwiatach jednego gatunku roślin, a nawet w jednym kwiecie obserwowano szereg różnych gatunkowo drożdżaków (6, 11, 14, 16, 18). Wielu badaczy obserwowało w kwiatach wyłącznie drożdże niezarodnikujące (2, 6, 14, 17, 18, 19), inni natomiast izolowali oprócz niezarodnikujących drożdżaków nieliczne gatunki należące do rodzajów: Saccharomyces i Hansenula (10, 11). Gatunkiem najczęściej izolowanym z nektarów i miodników kwiatowych jest Candida reukaufii (4, 5, 13, 14, 15, 17), często wyosabniano również szczepy z rodzaju Torulopsis, 1, 2, 9, 11, 14), z rodzaju Candida (2, 4, 9, 16) oraz z rodzaju Rhodotorula (2, 11, 14, 16).
W Polsce badania nad drożdżakami nektarowymi zapoczątkowała Łagoda-Pietraszkiewicz (10). Dalszą pracę na tym samym wyizolowanym materiale kontynuowała Malanowska (11). Uzyskała ona 18 szczepów, które w większości nie zarodnikowały; jednak kilka z nich należało do rodziny Endomycetaceae.
Niewielka liczba badań przeprowadzonych w Polsce nad drożdżakami nektarowymi skłoniła mnie do przebadania na tym terenie mikroflory drożdżowej kwiatów. Dalszym zadaniem mej pracy było przebadanie morfologicznych, biochemicznych i fizjologicznych właściwości wyizolowanych drożdżaków.
strona 58MATERIAŁ I METODYKA BADAŃ
1. Izolacja drożdżaków
Drożdżaki stanowiące materiał badań izolowano z nektarów kwiatowych. Okres pobierania prób był uzależniony od czasu kwitnięcia badanych roślin w sezonie 1956 r.
| Data pobrania materiału | Roślina | Miejsce pobrania próby | Ilość prób (pobranych kwiatów) | Ilość wyrosł. kolonii | Ilość wyizolow. szczepów |
|---|---|---|---|---|---|
| 24 V | kasztanowiec | Las Wolski k/Krakowa | 25 | 5 | 2 |
| liliak | 30 | 6 | 4 | ||
| czeremcha | 30 | 2 | 1 | ||
| 26 V | czeremcha zw. | Sikornik k/Krakowa | 25 | 7 | 3 |
| czeremcha am. | 25 | 36 | 4 | ||
| 28 V | konwalia leśn. | Czerna k/Krzeszowic | 30 | 100 | 5 |
| 12 VI | liliak | Chełm k/Krakowa | 30 | b. liczne | 7 |
| liliak zw. | 30 | „ | 2 | ||
| kasztanowiec | 30 | 15 | 3 | ||
| konwalia leśna | 30 | 10 | 1 | ||
| 24 VI | jaśminowiec | ogród WSR w Krakowie | 25 | 18 | 2 |
| 10 VII | jaśminowiec | okolice Wrocławia | 28 | 30 | 2 |
Kwiaty stanowiące materiał badań zrywano jałowymi pensetami wraz z całymi kwiatostanami, następnie każdy kwiatostan wkładano do oddzielnej jałowej płytki Petri’ego i w tym opakowaniu przewożono do Zakładu Mikrobiologii Rolnej W.S.R. w Krakowie, gdzie wykonywano badania.
Do posiewów brano kwiaty w pełnym stadium kwitnięcia, gdyż przekonałam się, że w kwiatach bardzo młodych znajduje się mniej gatunków drożdżaków, niż w kwiatach o rozchylonych od kilku dni płatkach. Posiewy wykonywano na agarze z brzeczką (8° Blg, pH — 6,8).
Stosowano dwie metody posiewu: a) rozmaz ezą zawartości dna kwiatowego na powierzchni podłoża, b) bezpośredni posiew na powierzchni podłoża dnem kwiatowym, trzymanym jałowymi szczypczykami po oderwaniu płatków korony. W posiewach wykonywanych drugą metodą otrzymywano więcej kolonii drożdży, lecz równocześnie pojawiały się pleśnie, co nastręczało nieco trudności, gdyż uwolnienie od nich wymagało czasem nawet kilku przesiewów.
strona 59W okresie badań bakteriologicznych czyste hodowle szczepów przechowywano w temperaturze 17—18° na agarach brzeczkowych o pH — 6.
2. Oznaczanie systematyczne wyizolowanych szczepów
Po otrzymaniu czystych hodowli wyizolowanych szczepów przystąpiono do oznaczenia ich przynależności systematycznej. Przy doborze prób diagnostycznych i metodzie ich wykonania oparłam się na pracy Lodder i Kreger van Rij’a (8) wprowadzając tylko nieznaczne modyfikacje na podstawie wyników badań innych autorów (3, 12) oraz badań własnych. Założenie takie było konieczne (zastosowanie zestandaryzowanych prób diagnostycznych), gdyż w innym wypadku, jak podkreślają sami autorzy ocena przynależności systematycznej mogłaby być mylna. Dla zwiększenia przejrzystości i jednolitości wyników przy diagnozie wszystkich badanych szczepów postępowano według wskazówek tych autorów.
Postępowanie takie miało i ujemne strony, a mianowicie nie pozwalało na zastosowanie innych metod do oceny właściwości biochemicznych szczepów, umożliwiając jedynie zastosowanie tych metod dodatkowo.
Obserwowano następujące właściwości badanych szczepów drożdżaków:
a) makroskopowe i mikroskopowe cechy hodowli założonych na brzeczce płynnej i na agarze z brzeczką oraz produkcję estrów aromatyzujących,
b) rozmnażanie wegetatywne i wytwarzanie nibygrzybni,
c) zarodnikowanie,
d) fermentację cukrów,
e) asymilację cukrów,
f) asymilację związków azotowych,
g) produkcję wielocukrowców (zw. amyloidowe),
h) produkcję kwasów,
i) zdolność przyswajania etanolu jako jedynego źródła węgla,
j) rozkład arbutyny.
WYNIKI BADAŃ
W wyniku przeprowadzonych badań wyizolowano 36 szczepów drożdżaków z nektarów kwiatów 6 gatunków roślin (Aesculus hippocastanum L., Convallari maialis L., Philadelphus coronarius L., Padus avium Mill. Padus serotina (Ehrh.) Borkh., Syringa sp.).
Uzyskane wyniki (tabela 2) pozwoliły zaliczyć wyizolowane szczepy do 26 różnych gatunków, w tym 22 gatunki (32 szczepy) należały
strona 60do rodziny Cryptococcaceae oraz 4 gatunki do rodziny Endomycetaceae. Obserwacja pozostałych właściwości morfologicznych i fizjologicznych badanych szczepów pozwoliła wśród drożdży zarodnikujących wyróżnić dwa rodzaje: Pichia Hansen i Hansenula H. et P. Sydow, a wśród drożdży niezarodnikujących 5 rodzajów: Cryptococcus Kützing emend. Vuillemin, Torulopsis Berlese, Brettanomyces Kuff. et v. Laer, Candida Berkhout, Rhodotorula Harrison.
Tabela 2
| Rodzina | Rodzaj | Ilość szczepów | Ilość gatunków | Ilość szczepów oznaczonych gatunkowo | Ilość szczepów gatunkowo zbliżonych | Ilość szczepów gatunkowo nieoznaczonych |
|---|---|---|---|---|---|---|
| Endomycetaceae | Pichia | 2 | 2 | — | 1 | 1 |
| Hansonula | 2 | 2 | — | 2 | — | |
| Cryptococcaceae | Cryptococcus | 1 | 1 | — | 1 | — |
| Torulopsis | 9 | 8 | 3 | 4 | 2 | |
| Brettanomyces | 6 | 2 | — | 6 | — | |
| Candida | 13 | 8 | 3 | 9 | 1 | |
| Rhodotorula | 3 | 3 | — | 3 | — | |
| Razem | 36 | 26 | 6 | 26 | 4 |
Szczepy zaliczone do rodzajów Pichia (2 szczepy) i Hansenula (2 szczepy) posiadały komórki kształtu cylindrycznego, wytwarzały nibygrzybnię. Na podłożach płynnych wytwarzały błonę. Stwierdzono u nich zdolność do tworzenia zarodników. Szczepy należące do rodzaju Hansenula produkowały ponadto aromatyczne estry.
Szczep zaliczony do rodzaju Cryptococcus posiadał komórki kształtu kulistego lub owalnego, pączkujące. Komórki okolone były otoczkami charakterystycznymi tym, że w specjalnych warunkach (pH 5) tworzyły się w nich związki amyloidowe. Hodowle założone na podłożach stałych odznaczały się śluzowatą konsystencją, zaś hodowle na podłożach płynnych dawały osad i pierścień.
Do rodzaju Torulopsis zaliczono 9 szczepów, których komórki były również kształtu kulistego lub owalnego, pączkujące. Niekiedy tylko posiadały one zdolność do tworzenia otoczek, nie wytwarzały w nich jednak związków amyloidowych. Szczepy należące do tego rodzaju nie tworzyły nibygrzybni. Na podłożach płynnych dawały one osad i często pierścień.
strona 61Do rodzaju Brettanomyces zaliczono 6 szczepów, u których oprócz wydłużonych owalnych komórek często układających się w łańcuchy (nie obserwowano tworzenia nibygrzybni) stwierdzono komórki o łukowato ściętym biegunie. W tlenowych warunkach obserwowano u nich wytwarzanie z cukrów mocnych kwasów.
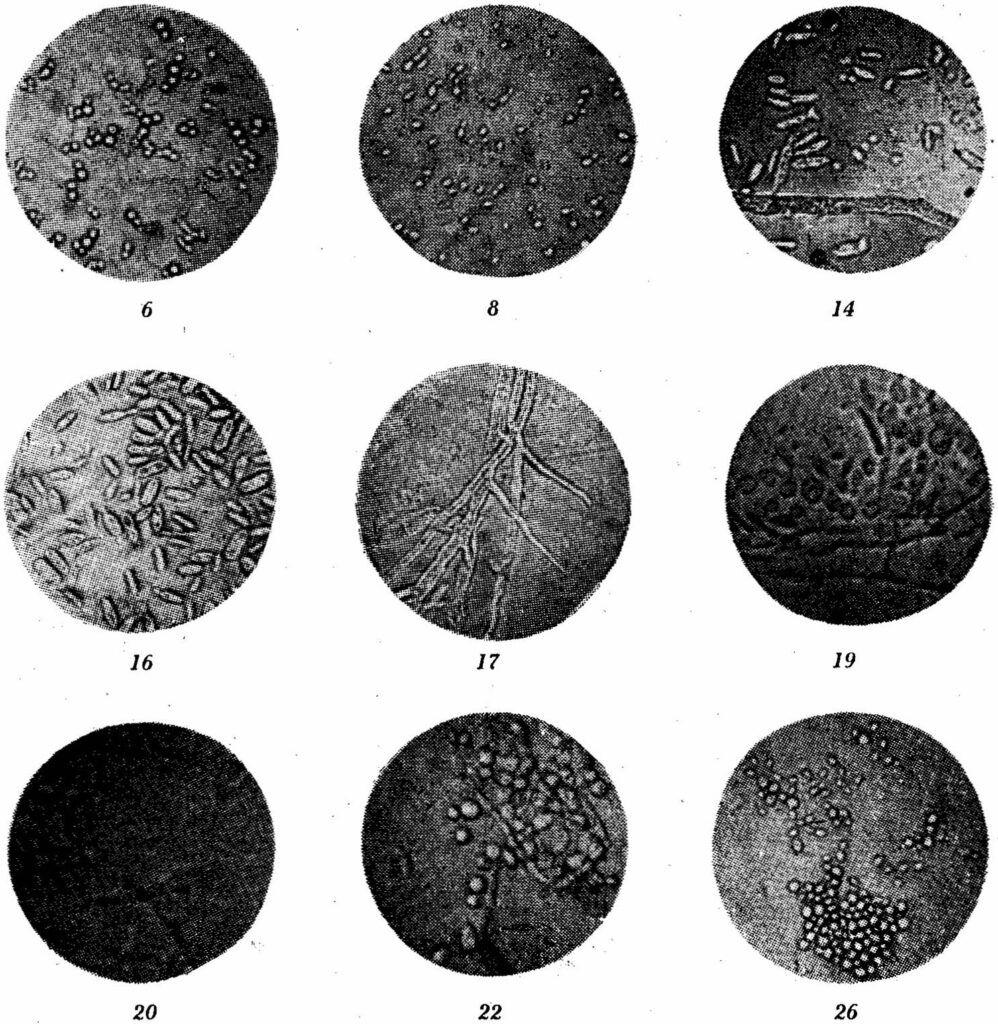
Szczepy, u których oprócz normalnie pączkujących komórek drożdżowych wykazano tworzenie nibygrzybni z typowo ułożonymi na niej blastosporami, zaliczono do rodzaju Candida (13 szczepów). Szczepy tu
strona 62Właściwości morfologiczne i fizjologiczne drożdżaków
| Nr. szczepu | Pochodzenie szczepu (nazwa rośliny) | Data pobrania materiału | Właściwości morfologiczne: Mikroskopowe cechy hodowli płynnej po 72 godz. w temp. 25° C.: Układ komórek | Właściwości morfologiczne: Mikroskopowe cechy hodowli płynnej po 72 godz. w temp. 25° C.: Kształt komórek | Właściwości morfologiczne: Mikroskopowe cechy hodowli płynnej po 72 godz. w temp. 25° C.: Wielkość komórek | Właściwości morfologiczne: Mikroskopowe cechy hodowli płynnej po 72 godz. w temp. 25° C.: Pączkowanie | Właściwości morfologiczne: Makroskopowe cechy hodowli: na podłożu płynnym po 1 mies. w temp. 18° | Właściwości morfologiczne: Makroskopowe cechy hodowli: na podłożu stałym po 1 mies. w temp. 18° (rys.) | Właściwości morfologiczne: Zarodnikowanie | Właściwości morfologiczne: Tworzenie nibygrzybni |
|---|---|---|---|---|---|---|---|---|---|---|
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 |
| 1 | liliak pełny | 12.6 | pojedynczo, parami łańcuszki | wydłużone cylindr. owalne | (3 — 4,4) x (6,2 — 10) | + | osad, pierścień, cienka błona | biała, gładka, o nierówn. brzegach | + | + |
| 2 | jaśminowiec | 10.7 | pojedynczo, parami, łańcuszki | wydłużone, owalne cylindryczne | (2,5—4,5) x (6 — 10) | + | osad, gruby pierścień | białawo-żółta, gładka słabo błyszcząca | ± | + |
| 3 | jaśminowiec | 24.6 | dążność do tworzenia nitek | wydłużone | (6 — 10) x (8 — 20) | + | osad, gładka błona | żółtawo-brązowa, matowa, brzegi z wyp. nibygrzybni | ± | + |
| 4 | czeremcha amer. | 26.5 | pojedynczo, parami, krótkie łańcuszki | owalne, długo-owalne | (2,5 — 5) x (6 — 10,5) | + | osad, pierścień, błona | żółto-brązowa gładka lub lekko pomarszczona, brzegi przechodzą w nitki | + | + |
| 5 | liliak pełny | 12.6 | pojedynczo parami, łańcuszki | kuliste, krótko-owalne | (2,5 — 3) x (4 — 5,5) | + | osad, pierścień | gładka. błyszcząca, miękka, gładkie brzegi | — | — |
| 6 | konwalia leśna (2 szczepy) | 28.5 | pojedynczo parami, łańcuszki grupki | kuliste, owalne | (2 — 5,2) x (2 — 5,8) | + | osad, pierścień | żółto-biała, miękka, gładka | — | — |
| 7 | czeremcha amer. | 26.5 | pojedynczo parami, grupkami | kuliste, owalne | (2,2 — 4) x (2,6—4,5) | + | osad, pierścień | biało-żółta, płaska, gładka słabo błyszcząca | — | — |
Tabela 3 wyizolowanych z nektarów kwiatowych
| Właściwości biochemiczne: Fermentacja: glikoza | Właściwości biochemiczne: Fermentacja: galaktoza | Właściwości biochemiczne: Fermentacja: sacharoza | Właściwości biochemiczne: Fermentacja: maltoza | Właściwości biochemiczne: Fermentacja: laktoza | Właściwości biochemiczne: Asymilacja węglow.: glikoza | Właściwości biochemiczne: Asymilacja węglow.: galaktoza | Właściwości biochemiczne: Asymilacja węglow.: sacharoza | Właściwości biochemiczne: Asymilacja węglow.: maltoza | Właściwości biochemiczne: Asymilacja węglow.: laktoza | Właściwości biochemiczne: Asymil. zw. azotu: pepton | Właściwości biochemiczne: Asymil. zw. azotu: azotan potas | Właściwości biochemiczne: etanol – jedyne źródło C | Właściwości biochemiczne: rozkład arbutyny | Właściwości biochemiczne: prod. zw. amyloid. | Właściwości biochemiczne: prod. kwasów | Właściwości biochemiczne: prod. estrów | UWAGI |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| 12 | 13 | 14 | 15 | 16 | 17 | 18 | 19 | 20 | 21 | 22 | 23 | 24 | 25 | 26 | 27 | 28 | 29 |
| + | + | + | + | — | + | + | + | + | + | + | (+) | + | + | — | — | + | Szczep zbliżony z dużym prawdopodobieństwem do Pichia polymorpha Klöcker |
| + | + | + | — | — | + | + | + | + | + | + | + | + | ± | — | — | ± | Pichia sp. |
| + | (+) | + | + | — | + | + | + | + | — | + | + | + | + | — | — | + | Szczep zbliżony do Hansenula anomala (Hansen) H. et P. Sydow |
| + | — | +) | + | — | + | + | + | + | — | + | + | + | + | — | — | + | Szczep zbliżony do Hansenula schneggii (Weber) Dekker |
| — | — | — | — | — | (+) | + | + | + | (+) | — | — | — | + | + | — | — | Szczep zbliżony do Cryptococcus laurentii. (Kuff.) Skinner |
| ± | — | — | — | — | + | + | + | + | + | + | — | (+) | + | — | — | — | Torulopsis candida (Saito) (2 szczepy) Lodder |
| + | — | — | + | — | + | ± | — | ± | — | + | + | — | — | — | — | — | Torulopsis etchellsii nov. spec. |
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 |
|---|---|---|---|---|---|---|---|---|---|---|
| 8 | liliak pełny | 12.6 | pojedynczo grupami | owalne | (2,5—4,5) x (3,5 — 6) | + | osad | płaska, miękka, beżowa z jaśniejszymi punktami | — | — |
| 9 | liliak pełny | 12.6 | pojedynczo grupami | kuliste owalne z licznymi wakuolami | (2,5—5,5) x (4,5 — 12) | + | osad | płaska, miękka, beżowa z jaśniejszymi punktami | — | — |
| 10 | liliak zwykły | 24.5 | pojedynczo parami | wydłużone owalne | (7 — 10) x (3 — 4,5) | + | osad, pierścień, błona | beżowa, słabo błyszcząca, lekko pomarszcz. | — | — |
| 11 | czeremcha amer. | 24.5 | pojedynczo parami grupkami | kuliste, krótko-owalne | (2 — 4) x (3 — 5) | + | osad | beżowa, brzeg gładki, błyszcząca | — | — |
| 12 | czeremcha zwycz. | 26.5 | pojedynczo często łańcusz. grupki | kuliste krótko-owalne | (2 — 3,5) x (3 — 4,5) | + | osad | biała, miękka, o gładkich brzeg. | — | — |
| 13 | czeremcha amer. | 24.5 | pojedynczo łańcusz. grupki | kuliste, owalne | (2—4) x (1,5—3,5) | + | osad | biała, płaska miękka, brzegi gładkie | — | — |
| 14 | kasztanowiec liliak, czeremcha amer. jaśminowiec |
12.5 24.5 26.5 10.7 |
wydłużone łukowato ścięte | pojedynczo łańcusz. nitki | (2,3—5) x (6,8—12) | + | osad, błona | łososiowa, lub brunatna czerniejąca, miękka, z połyskiem | — | ± |
| 15 | konwalia leśna kasztanowiec |
28.5 12.6 |
pojedynczo nitki | owalne z łukowato ściętym biegunem | (2,5 — 4) x (8—14) | + | osad, błona | łososiowo-brunatna, płaska, matowa, miękka | — | ± |
| 16 | kasztanowiec | 24.5 | pojedynczo nieregularnie | owalne | (1,5 — 4) x (5 — 12) | + | zmętnienie, osad, słaby pierścień | szaro-kremowa, gładka, płaska, miękka | — | + |
| 17 | konwalia leśna | 28.5 | pojedyn. grupami, nitki | długo-cylindr. | (3 — 5) x (6 — 12 | + | osad, zmętnienie, słaby pierścień | kremowa gładka, błyszcząca brzeg margines nibygrzybnia | — | + |
| 12 | 13 | 14 | 15 | 16 | 17 | 18 | 19 | 20 | 21 | 22 | 23 | 24 | 25 | 26 | 27 | 28 | 29 |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| — | — | — | — | — | + | + | + | + | — | + | — | + 2 tyg. | — | — | — | — | Szczep zbliżony do Torulopsis famata (Harrison) nov. comb. |
| + | (+) | + | — | — | + | + | + | — | — | + | — | (+) | — | — | — | — | Szczep zbliżony do Torulopsis holmii (Jörgensen) Lodder |
| + | — | + | (+) | — | + | + | + | + | — | + | + | + | + | — | — | ± | Szczep zbliżony do Torulopsis sake (Saito et Ota) nov. comb. |
| + | + | + | + | + | + | + | + | + | — | + | + | (+) | — | — | ± | — | Szczep zbliżony do Torulopsis versatilis (Etchells et Bell) nov. comb. |
| + | + | — | + | — | + | + | + | + | — | + | + | + | — | — | — | — | Torulopsis sp. |
| — | — | — | — | — | — | + | — | + | — | + | + | + | + | — | — | + | Torulopsis sp. |
| + | (+) | + | + | — | + | (+) | + | + | — | + | + | + | ± | — | + | + | Szczepy zbliżone do Brettanomyces bruxellensis (Kuff. et v. Laer) |
| + | — | + | + | — | + | (+) | + | + | — | + | + | (+) | + | — | + | + | Szczepy zbliżone do Brettanomyces lambicus Kuff. et v. Laer |
| + | + | + | — | — | + | + | — | — | — | + | — | — | + | — | — | — | Szczep zbliżony do Candida catenulata Diddens et Lodder |
| + | + | — | + | — | + | + | + | + | — | + | + | + | — | — | — | — | Szczep zbliżony do Candida claussenii. nov. spec. |
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 |
|---|---|---|---|---|---|---|---|---|---|---|
| 18 | kasztanowiec | 12.6 | pojedynczo parami łańcusz. | owalne, wewnątrz komórek ziarnist. | (2—4) x (4,5—10) | + | osad, pierścień | płaska, żółtawa, pomarszczona | — | ± |
| 19 | czeremcha zw. liliak sp. konwalia l. jaśminowiec kasztanow. |
26.6 24.5 24.6 24.5 24.5 |
szczepy | cylindr. różnią się właściwościami morfolog. | (3—5) x (8—12) | + | zmętnienie, osad, błona | żółtawa, pofałdowana, miękka z aksamitnym nalotem | — | + |
| 20 | liliak pełny | 12.6 | pojedynczo łańcusz. charakt. krzyże | cylindr. długo-owalne | (3,5—5,5) x (7,5—12) | + | osad, pierścień | beżowa, żółtawa, matowa | — | ± |
| 21 | liliak pełny | 12.6 | pojedynczo grupami | długo-owalne niektóre kształt biszkopt. | (2,5—4) x (6—12) | + | osad, błona | żółtawo-beżowa miejscami czerwieniejąca pofałdowana | — | + |
| 22 | czeremcha amer. | 26.5 | pojedynczo łańcusz. grupami | owalne cylindr. | (1,5—3,5) x (4—7,5) | + | osad, pierścień | płaska, miękka o słabym połysku brzeg gładki | — | + |
| 23 | liliak zwykły | 24.5 | pojedynczo grupami | owalne | (3,5—4,5) x (7—10) | + | osad, pierścień | kremowo-czarna błyszcząca, śluzowata | — | + |
| 24 | liliak pełny | 12.6 | pojedynczo, parami, łańcusz. | owalne | (3—4) x (6—7) | + | osad, pierścień | błyszcząca, śluzowa, łososiowa, koralowa | — | — |
| 25 | liliak sp. | 12.6 | pojedynczo-parami | krótko-owalne | (2—3,5) x (3—4,5) | + | osad, pierścień | gładka, błyszcząca, koralowa | — | — |
| 26 | czeremcha | 26.5 | pojedynczo, parami | kuliste, krótko-owalne | (2,5—4,5) x (4—5,5) | + | osad, pierścień | gładka, błyszcząca, nieśluzowa, koralowa | — | — |
| 12 | 13 | 14 | 15 | 16 | 17 | 18 | 19 | 20 | 21 | 22 | 23 | 24 | 25 | 26 | 27 | 28 | 29 |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| + | (+) | + | + | — | + | (+) | + | + | — | + | + | + | + | — | — | — | Szczep zbliżony do Candida intermedia (Cif. et Asch.) Langeron et Gauerra |
| + | (+) | + | + | — | + | (+) | + | + | — | + | + | + | + | — | — | — | Szczepy zbliżone do Candida pelliculosa Redaelii |
| + | (—) | — | — | — | + | + | + | + | — | + | — | — | ± | — | — | ± | Candida reukaufii (2 szczepy) różniące się nieco morfolog. (Grüss) Diddens et Lodder |
| + | + | + | + | — | + | + | + | + | — | + | — | ± | + | — | — | — | Candida tropicalis v. lambica (Cast) Berkhout |
| + | (+) | + | — | — | + | (+ | + | + | (+) | + | + | + | + | — | — | ± | Szczep zbliżony do Candida utilis (Henneberg) nov. spec. |
| + | — | + | + | — | + | (+) | + | + | — | + | + | — | + | — | — | — | Candida sp. |
| — | — | — | — | — | + | + | (+ | + | — | + | + | + | + | — | — | — | Szczep zbliżony do Rhodotorula aurantiaca (Saito) Lodder |
| + | (+) | — | (+) | — | (+) | + | + | — | — | + | — | — | ± | — | — | — | Szczep zbliżony do Rhodotorula minuta (Saito) Harrison |
| (+) | (+) | (+) | — | — | (+) | — | (+) | (+) | — | + | — | — | + | — | — | — | Szczep zbliżony do Rhodotorula mucilaginosa (Jörg) Harrison |
Objaśnienia: + odcz. dodatni,
— odcz. ujemny,
(+) odcz. słabo dodatni,
± odcz. wątpliwy.
strona 68należące dawały osad i pierścień na płynnych podłożach, a często i błonę. Posiadały one zdolność fermentowania badanych cukrów.
Szczepy zaliczone do rodzaju Rhodotorula (3 szczepy) posiadały komórki kuliste, krótko-owalne oraz długo-owalne, nie tworzyły nibygrzybni. U szczepów tego rodzaju stwierdzono obecność barwników pomarańczowo-czerwonych. Szczepy te nie fermentowały cukrów lub fermentowały je słabo.
Wyniki prób diagnostycznych pozwoliły dla wszystkich badanych szczepów określić przynależność rodzajową, a dla niektórych także gatunkową. Biorąc pod uwagę, że były to szczepy występujące w przyrodzie wolno, a przy tym w specjalnym środowisku, zrozumiały wydaje się fakt, że tylko niektóre z nich ściśle odpowiadały swymi właściwościami opisywanym gatunkom.
Jak wynika z tabeli 2, spośród 36 badanych szczepów należących do 7 rodzajów, tylko u 6 szczepów stwierdzono właściwości zupełnie identyczne z podawanymi dla opisanych gatunków, a 26 szczepów wykazało wprawdzie właściwości opisanych gatunków, ale równocześnie posiadały one niektóre indywidualne cechy morfologiczne, ponadto często różniły się one od wzorowych także asymilacją szczepów i fermentacją cukrowców. Szczepy te określono jako zbliżone do danego opisanego gatunku.
Wyniki prób diagnostycznych pozostałych 4 szczepów nie odpowiadały żadnemu z opisanych gatunków, wobec czego przynależności gatunkowej tych szczepów nie oznaczono.
DYSKUSJA
Przeprowadzone badania wykazały występowanie licznych drożdżaków w nektarach kwiatowych. W kwiatach jednego gatunku roślin stwierdzono obecność wielu gatunków drożdży i tak, z kwiatu liliaka pełnego wyizolowano 7 gatunków drożdżaków. Obserwacje te są zgodne ze spostrzeżeniami Stolza, Hilkenbacha (6), Schuster i Ulehli (16), którzy w swych pracach obalili pogląd Reukauf’a — (15) wg którego w kwiatach jednego rodzaju roślin występują drożdże tylko jednego gatunku. Z kolei jeden gatunek drożdży wyizolowano z kwiatów wielu gatunków roślin i tak Brettanomyces bruxellensis wyosobniono z kwiatów kasztanowca, liliaka, czeremchy i jaśminowca, a Candida pelliculosa z kwiatów wszystkich przebadanych gatunków roślin. Podobne zjawisko obserwowali Schuster i Ulehla (16).
strona 69Charakterystyczny jest fakt, że spośród 36 badanych szczepów tylko 6 odpowiadało ściśle opisywanym gatunkom, pozostałe zaś wykazywały pewne cechy indywidualne (tab. 3). Lund (9) na podstawie studiów ekologicznych prowadzonych w wielu naturalnych środowiskach zaobserwowała występowanie podobnego zjawiska. Tak dużą zmienność indywidualną można tłumaczyć tym, że są to drobnoustroje żyjące w wysoce wyspecjalizowanym środowisku (duże stężenie cukrów, specjalny ich zespół).
Wśród izolowanych szczepów stwierdzono znaczną przewagę szczepów niezarodnikujących (32 szczepy niezarodnikujące na 36 badanych). Jest to zgodne z badaniami Hilkenbacha (6), Stolza, Schoellhorna (17), Zinkernagela (19), którzy nie wykazali w nektarach kwiatowych drożdży zarodnikujących lub innych (11) badaczy, którzy stwierdzili tylko nieliczne szczepy zarodnikujące wśród drożdży pochodzących z tego środowiska.
Wśród badanych szczepów najwięcej spotykano przedstawicieli rodzajów: Candida, Torulopsis, Brettanomyces i Rhodotorula. Schuster i Ulehla (16), Zinkernagel (19), Malanowska (11) również izolowali z nektarów kwiatowych szczepy tych rodzajów.
W większości prac omawiających badania nad drożdżakami nektarów kwiatowych (4, 15, 17) opisywano krzyżową postać Candida reukaufii, jako występującą w przeważającej liczbie kwiatów. W moich badaniach nie spostrzegłam tak częstego pojawiania się tej formy, jedynie z kwiatu liliaka pełnego wyosobniono dwa szczepy tego gatunku.
WNIOSKI
- Nektary kwiatowe stanowią środowisko dla licznych drożdżaków, różniących się właściwościami morfologicznymi i biochemicznymi od znanych dotychczas gatunków.
- Izolacja nowych gatunków drożdżaków otwiera duże możliwości zastosowania i wykorzystania ich właściwości biochemicznych w różnych działach przemysłu, a to:
a) w przemyśle fermentacyjnym (produkcja miodów pitnych oraz ich aromatyzacja).
b) w przemyśle perfumeryjnym (produkcja estrów zapachowych),
c) w przemyśle farmaceutycznym (biosynteza witamin).
Za okazaną mi pomoc przy wykonaniu powyższej pracy składam serdeczne podziękowania Panu Doc. dr Stanisławowi Smykowi.
strona 70LITERATURA
- Cook A.H — 1958 — The Chemistry and Biology of Yeasts. New York, Acad. Press. Ine.
- Doleżal M. — 1959. — Zdolności aglutynacyjne drożdżaków nektarów kwiatowych, Arch. Bibl. Jagiell. Kraków.
- Fowell R.R. — 1952. — Sodium acetate agar as a aporulation medium form yeasts. Nature 170, 578.
- Grüss J. — 1917. — Uber die Anpassung eines Pilzes (Anthomyces Reukaufii) an den Blütenbau und Bienenrüssel Ber. deutsch. bot. Ges. 35, 746.
- Hautmann F. — 1924. — Über die Nektarhefe Anthomyces Reukaufii Arch. Protistenkde 48,213.
- Hilkenbach R. — 1911. — Nektarhefen. Neue Beiträge zur Kenntnis der wilden Hefen in der Natur. Diss Kiel. cyt 19
- Lochhead A. Gond Heron D.A. — 1929 — Microbiological studies on honey. Dom. Can. Dept. Agric. Bull. Nr. 116 N.S. cyt. 9.
- Lodder J., Kreger v. Rij N.J. — 1952 — The Yeasts. A. toxonomic study. Amsterdam North Holland Publ.
- Lund A. — 1954. — Studies on the ecology of yeasts. Kopenhaga, Munksgaard.
- Łagoda-Pietraszkiewicz H. — 1948. — Izolowanie i identyfikacja drożdży z nektarów kwiatowych. Arch GIPRiS. W-wa.
- Malanowska J. — 1951 — Wyodrębnianie i określanie nowych kultur drożdżowych. Prace Gł. Inst. Przem. Roln. i Spoż. 3, 53.
- Martin D.S., Jones C.D., Yao K,F., Lee L.E. — 1937. — A practical classification of the monilios Jour. Bact. 34,99.
- Mrak E., Phaff H.J. — 1948 — Yeasts. Ann. Rev. Mierob. 2, 1
- Niethammer A., — 1942. — Hefen sowie mikroskopische Pilze aus Blüten ferner von Samen und Früchten. Arch. Mikr. 13, 45.
- Reukauf E. — 1911—12. — Nektarhefen. Die Kleinwelt 3, 25. cyt 19
- Schuster V. Ulehla V., — 1913. — Studien über Nektarorganismen. Ber deutsch. bot. Ges. 31, 129.
- Schoellhorn K. — 1919 — Sur la fermentation de quelques levures des, nectars des plantes d’hiver. Bull. soc. bot. Genévé II, 11, 154.
- Stark N.V. — 1920. Uber die Flora der Nektar und Lufthefen Russlands. Jour. Russ. bot. Ges. 5,57 (cyt. 9).
- Zinkernagel H. — 1929 — Untersuchungen über Nektarhefen. Zentralbl. Bakt. II, 78, 191.
ДРОЖЖИ ВСТРЕЧАЮЩИЕСЯ В ЦВЕТОЧНЫХ НЕКТАРАХ
Марта Рыхлик — Долежаль
Резюме
Из нектаров 6 видов растений (Aesculus hippocastanum L., Convallaria majalis L. Philadephus coronarius L., Padus avium Mill., Padus serotina (Ehrh.) Borkh. Syringa sp. изолировано 36 штаммов дрожжей.
Систематическую принадлежность этих штаммов определено на основание морфологических и физиологических признаков.
Найденные штаммы отнесено к 26 видам, причем 20 принадлежало к семейству Cryptococcaceae — родам: Cryptococcus Küttzing emend. Vuillrmin, Torulopsis Ber
strona 71lese, Brettanomyces Kuff. et v. Laer, Candida Berkhout, Rhodotorula Harrison а 4 к семейству Endomycetaceae родам: Pichia Hansen i Hansenula H. et. P. Sydow.
Определение видов было связано с значительнымми трудностями, так как большинство найденных штаммов отличалось своими морфологическими и биохимическими признаками от уже известных видов.
Изоляция таких штаммов дрожжей дает возможность использования их биологических особенностей в разных отраслях промышленности.
Die Hefe die im Blumennektar vorkommen
Marta Rychlik-Doleżal
Zusammenfassung
Infolge der durchführten Untersuchungen wurden 36 Stämme der Hefe aus dem Blumennektar von folgenden 6 Pflanzenarten isoliert: Aesculus hippcastanum L., Convallaria majalis L., Philadelphus coronarius L., Padus avium Mill., Padus serotina (Ehrh.) Borkh., Syringa sp. L.
Systematische Angehörigkeit der ausgesonderten Stämme wurde auf der Bazis ihrer morphologischen und phisiologischen Eingenheiten angegeben. Die geprüften Stämme wurden zu 26 Arten angerechnet, unter denen 22 Arten (32 Stämme) gehörten der Familie Cryptococcaceae — der Gattungen: Cryptococcus, Torulopsis, Brettanomyces, Candida, Rhodotula, dagegen die weiteren 4 Arten der Familien Endomycetaceae — der Gattungen: Pichia und Hansenula an.
Die Bestimmung der Gattungengehörigkeit der geprüften Stämme stiess an bedeutende Hindernisse, da grösstenteils unterschieden sich diese Stämme durch ihre morphologischen und biochemischen Eigentümlichkeiten von den bisher bekannten Gattungen. Die Isolierung dieser Hefestämme eröffnet uns Möglichkeiten ihre individuellen Eingenschaften in verschiedenen Industriesektoren auszunutzen.
strona 72
Errata — błędy druku znalezione podczas digitalizacji
- s. 59: „Convallari maialis” → Convallaria majalis
- s. 60, tab. 2: „Hansonula” → Hansenula
- s. 61, podpis rys. 1: „numeracja z tab. 1″ → numeracja z tab. 3
- s. 67, tab. 3, nr 18: „Gauerra” → Guerra
- s. 67, tab. 3, nr 19: „Redaelii” → Redaelli
- s. 69: „Stanisławowi Smykowi” → Bolesławowi Smykowi
- s. 70, lit. 1: „Ine.” → Inc.
- s. 70, lit. 3: „aporulation” → sporulation
- s. 70, lit. 3: „form yeasts” → for yeasts
- s. 70, lit. 8: „toxonomic” → taxonomic
- s. 70, lit. 12: „monilios” → monilias
- s. 70, lit. 13: „Mierob.” → Microb.
- s. 70, lit. 17: „Genévé” → Genève
- s. 70, streszczenie: „Philadephus” → Philadelphus
- s. 70, streszczenie: „на основание” → на основании
- s. 70, streszczenie: „20 принадлежало” → 22 принадлежало
- s. 70, streszczenie: „Küttzing” → Kützing
- s. 70, streszczenie: „Vuillrmin” → Vuillemin
- s. 71, streszczenie: „Hansen i Hansenula” → Hansen и Hansenula
- s. 71, streszczenie: „значительнымми” → значительными
- s. 71, Zusammenfassung: „durchführten” → durchgeführten
- s. 71, Zusammenfassung: „hippcastanum” → hippocastanum
- s. 71, Zusammenfassung: „Bazis” → Basis
- s. 71, Zusammenfassung: „phisiologischen” → physiologischen
- s. 71, Zusammenfassung: „Eingenheiten” → Eigenheiten
- s. 71, Zusammenfassung: „Rhodotula” → Rhodotorula
- s. 71, Zusammenfassung: „Eingenschaften” → Eigenschaften