

BADANIA BIOLOGII KWITNIENIA I ZAPYLANIA KONICZYNY CZERWONEJ (Trifolium pratense L.)
tekst: Bolesław Jabłoński
Pszczelnicze Zeszyty Naukowe, Rok XVIII, 1974 — Bolesław Jabłoński
strona 201PSZCZELNICZE ZESZYTY NAUKOWE ROK XVIII GRUDZIEŃ 1974
(Trifolium pratense L.)
Bolesław Jabłoński
Oddział Pszczelnictwa IS
WSTĘP
Koniczyna czerwona jest rośliną wybitnie obcopylną i owadopylną, o kwiatach przystosowanych do zapylania głównie przez długojęzyczkowe gatunki trzmieli. Pszczoły miodne raczej niechętnie odwiedzają kwiaty tej rośliny, z powodu zbyt głęboko ukrytego nektaru. Trzmieli natomiast jest przeważnie za mało do dobrego zapylenia plantacji nasiennych, zwłaszcza obszarowo większych. Ponadto liczebność tych owadów ulega z roku na rok dużym wahaniom oraz ogólnemu zmniejszaniu się w związku z postępem, a zwłaszcza z chemizacją rolnictwa.
W powyższych faktach upatruje się jednej z głównych przyczyn uzyskiwania niskich i bardzo niestabilnych plonów nasion koniczyny czerwonej. Stąd też tak ważne jest możliwe dokładne poznanie wszystkich zjawisk związanych z biologią kwitnienia i zapylaniem tej rośliny.
Dotychczas zrobiono już bardzo dużo, gdyż wielu naukowców za granicą (m. in. Nüesch 1959, Maurizio 1961, Čumakow i Husarowa 1964, Hawkins 1965, Lampeter 1966, Skirde 1966, Švec 1968 — w krajach środkowoeuropejskich, Paatela 1962, Akerberg i Stapel 1964, Dennis i Haas 1967a, 1967b — w Skandynawii, Sokołowska 1960, Ponomariewa 1960, Mielniczenko 1964, Smaragdowa 1969 — w Związku Radzieckim), a także w Polsce (m. in. Demianowiczowa 1957, Łączyńska-Hulewicz 1958, Bawolski 1961, Góral 1965, 1968, 1969, Jelinowska
strona 2021968, Ruszkowski i Biliński 1968) zajmują się tymi zagadnieniami od dawna.
Celem niniejszej pracy było zbadanie w naszych warunkach dziennej i sezonowej dynamiki kwitnienia koniczyny czerwonej, dynamiki oblotu jej przez owady zapylające oraz zawiązywania nasion w zależności od przebiegu niektórych czynników pogody.
METODYKA
Dane ogólne o badanej koniczynie. Badania przeprowadzono w latach 1969—1971, na glebie bielicowej lekkiej w Puławach. Do doświadczeń wzięto koniczynę Hruszowską. Przedplonem dla niej były zawsze mieszanki jednorocznych roślin miododajnych (facelia błękitna, gorczyca biała), przyorywanych po przekwitnięciu na zielony nawóz, ponieważ stosunkowo słabą glebę przygotowano pod sad. Powierzchnia pola obsiewanego koniczyną wynosiła w kolejnych latach 0,20 ha, 0,15 ha i 0,35 ha.
Przed siewem koniczyny na wiosnę pole najpierw wapnowano, a następnie nawożono solą potasową, superfosfatem i saletrzakiem, stosując na 1 ha około 1000 kg wapna palonego, 80 kg K2O, 60 kg P2O5 i 20 kg N.PH gleby (w 1 n KCL) wynosiło w kolejnych latach: 5,6; 5,9 i 5,5.
Siew wykonywano w połowie kwietnia rzutowo, zużywając około 20 kg nasion na 1 ha. Rośliną ochronną był rzadko wysiewany owies, który w czasie kłoszenia zbierano na paszę. Ścierniankę koszono w połowie września. Wiosną następnego roku, a więc w roku właściwego użytkowania koniczyny, stosowano pogłównie sól potasową i superfosfat w ilości około 40 kg K2O i 30 kg P2O5.
Koszenie pierwszego pokosu zielonki w drugim roku po zasiewie wykonywano w kolejnych latach: 15.VI. 12.VI. i 13.VI. Każdego roku wykaszano tylko połowę pola, aby można było prowadzić badania zarówno na I jak i na II pokosie. Pierwszy pokos wzięto do badań ze względów czysto poznawczych.
Analiza porostu, obserwacje kwitnienia i badania nagromadzania się nektaru w kwiatach. Dla ogólnego scharakteryzowania badanej koniczyny wykonywano po przekwitnieniu roślin analizę porostu, określając (na podstawie czterech jednometrowych prób pobieranych w różnych miejscach pola) liczbę roślin oraz liczbę pędów i główek na 1 m2. Liczbę kwiatów na 1 m2 obliczano ze średniej liczby kwiatów w główce z poletek, na których prowadzono szczegółowe obserwacje kwitnienia.
We wstępnych całodobowych obserwacjach rozkwitania kwiatów ustalono, że koniczyna rozkwita tylko w dzień. Dlatego dla zbadania dziennej dynamiki rozkwitania, wyznaczono w okresie pełni kwitnienia I i II pokosu po jednym poletku o pow. około 1 m2, na którym wieczorem
strona 203usuwano z każdej główki wszystkie rozwinięte korony kwiatów. Następnego dnia od godziny 5 rano do wieczora liczono i usuwano na tym poletku co godzinę wszystkie świeżo rozwinięte korony. Obserwacje te powtarzano dla każdego pokosu w ciągu 3—5 dalszych kolejnych dni.
W celu określenia sezonowej dynamiki rozkwitania łanu, wyznaczano dla każdego pokosu (przy pomocy palików i sznurka) po jednym poletku o powierzchni wynoszącej w kolejnych latach 1 m2, 0,8 m2 i 0,7 m2, w możliwie reprezentatywnym miejscu pola. Następnie codziennie wieczorem (po ustaniu procesu rozkwitania) przez cały okres kwitnienia wykonywano obserwacje, polegające na zaznaczaniu etykietami każdej rozpoczynającej kwitnienie główki (nadając jej kolejny numer) oraz na liczeniu w każdej kwitnącej główce wszystkich rozkwitłych danego dnia kwiatów. Zaznaczania nowo rozkwitłych kwiatów dokonywano przez obcinanie im nożyczkami końców żagielków. Wcześniej stwierdzono, że zabieg ten nie ma żadnego ujemnego wpływu na odwiedzanie kwiatów przez owady zapylające, a więc zapewne także na zawiązywanie nasion. Często podczas obserwacji trzmiel lub pszczoła miodna siadały na trzymanej za szypułkę w palcach główce.
Przy określaniu długości życia kwiatów posługiwano się izolatorami z siatki drucianej, o wymiarach 2 m×2 m×2 m. Pod czterema takimi izolatorami zaznaczano przez 10 kolejnych dni w okresie pełni kwitnienia koniczyny po 20 główek, z których każda miała po kilkanaście rozkwitłych w danym dniu kwiatów. Zaznaczania tych kwiatów dokonywano w ten sposób, że rano usuwano z wybranych główek wszystkie dotychczas rozkwitłe korony kwiatowe, a wieczorem usuwano znowu po dwa rzędy pąków znajdujących się tuż nad śieżo rozkwitłymi kwiatami. Dziesiątego dnia, kiedy najstarsze kwiaty (zaznaczone pierwszego i drugiego dnia) w większości zwiędły, brano z każdej później etykietowanej główki po jednym kwiecie do pomiarów długości rurki kwiatowej i wysokości słupka nektaru oraz po jednym do określenia ilości wydzielonego nektaru i procentu cukrów w nim zawartych. Następnie resztę zaznaczonych w każdej główce kwiatów liczono i stan ich zapisywano na zawieszonej etykiecie, po czym izolatory zdejmowano, aby owady mogły swobodnie dokonać zapylania.
Obserwacje zapylania oraz badania stopnia wiązania nasion i wysokości plonów nasion. W celu określenia sezonowej dynamiki oblotu koniczyny czerwonej przez owady zapylające wyznaczano (przy pomocy palików i sznurka) pas szerokości 1 m i długości 100 m, wzdłuż którego przechodzono raz dziennie w godzinach południowych i liczono na nim wszystkie odwiedzające kwiaty pszczoły miodne, trzmiele i pszczoły samotnice. Dla ustalenia dziennej dynamiki oblotu koniczyny przez owady pszczołowate obserwacje takie na tymże 100 m pasie, wykonywano w odstępach jednogodzinnych, od rana do wieczora, w tych samych dniach, co obserwacje dziennej dynamiki rozkwitania kwiatów.
strona 204Do określenia stopnia wiązania nasion wykorzystano główki z poletek obserwacyjnych sezonowej dynamiki rozkwitania łanu. Główki te po dojrzeniu zbierano i w laboratorium liczono w nich nasiona, zarówno dorodne jak i zaschnięte. Ponieważ dla każdej główki znana była pora kwitnienia oraz warunki pogody w tym czasie (przez cały okres kwitnienia stał w koniczynie na wysokości porostu czynny termohygrograf), starano się, po dokonaniu odpowiednich zestawień, szukać zależności stopnia wiązania i zasychania nasion od temperatury i wilgotności powietrza.
Wysokość plonów nasion określano na podstawie 4 prób (z 4 m2 każda), pobieranych w różnych miejscach pola w okresie dojrzałości zbiorczej, tj. w końcu lipca dla pokosu I, a w początkach września dla pokosu II. Ponadto obliczano tzw. teoretyczne plony nasion, biorąc przy tym za podstawę liczbę kwiatów na 1 m2, procent nasion dobrze wykształconych oraz ciężar 1000 nasion.
Cały zebrany materiał nie wymagał w zasadzie opracowań statystycznych.
CHARAKTERYSTYKA POGODY
W roku 1969 zima była długa, dość mroźna i mało śnieżna, a wiosna, z niebogatym w opady kwietniem, przyszła o około dwa tygodnie później niż zwykle. Począwszy od maja, średnia temperatura w miesiącach letnich utrzymywała się powyżej normy, natomiast opady, z wyjątkiem maja i sierpnia, były znacznie niższe od średniej wieloletniej (tab. 1).
Rok 1970 charakteryzował się również dość mroźną zimą, ale raczej bogatą w opady śniegu. Obfite opady deszczu występowały w kwietniu i także w maju. W lipcu ilość deszczu była średnia, a w czerwcu i sierpniu stanowiła około 3/4 normy. Temperatura w miesiącach wiosennych i letnich (kwiecień—sierpień) wahała się w pobliżu normy.
Tabela 1 Niektóre dane meteorologiczne w latach badań Some meteorological data from the investigations period
| Rok Year | Miesiące — Month: I | Miesiące — Month: II | Miesiące — Month: III | Miesiące — Month: IV | Miesiące — Month: V | Miesiące — Month: VI | Miesiące — Month: VII | Miesiące — Month: VIII | Miesiące — Month: IX | Miesiące — Month: X | Miesiące — Month: XI | Miesiące — Month: XII |
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| Temperatura powietrza w °C — odchylenia od średniej wieloletniej. Temperature of air in °C — declination from the average of many years. | ||||||||||||
| 1969 | —3,1 | —1,9 | —3,3 | —0,8 | 1,9 | 0,6 | 0,4 | 0,0 | 0,4 | 0,5 | 3,0 | —6,8 |
| 1970 | —2,3 | —2,4 | —0,9 | 0,0 | —0,6 | 1,1 | —0,5 | 0,3 | —1,1 | —0,7 | 2,5 | 2,4 |
| 1971 | 0,7 | 2,3 | —1,7 | 0,4 | 1,8 | —0,3 | 0,5 | 2,2 | —1,1 | 0,1 | —0,3 | 4,1 |
| Sumy opadów w mm — % normy. Sums of rainfall in mm — % of standards | ||||||||||||
| 1969 | 40 | 72 | 62 | 71 | 100 | 62 | 59 | 99 | 21 | 38 | 151 | 122 |
| 1970 | 202 | 95 | 58 | 209 | 110 | 77 | 93 | 76 | 153 | 118 | 173 | 137 |
| 1971 | 66 | 96 | 132 | 81 | 100 | 85 | 49 | 16 | 146 | 58 | 68 | 95 |
Zima 1971 roku była bardzo łagodna, jedynie w marcu temperatura spadła poniżej średniej wieloletniej. Miesiące wiosenne i letnie, z wyjątkiem czerwca, były również ciepłe, a sierpień nawet upalny. W miesiącu tym zaznaczyła się susza z powodu wyjątkowo małej ilości opadów.
WYNIKI
KWITNIENIE KONICZYNY CZERWONEJ
Ogólna charakterystyka porostu. Liczba roślin na jednostce powierzchni była w roku 1969 mniejsza niż w latach następnych (tab. 2), ponieważ część ich wymarzła w czasie bezśnieżnej zimy. Odbiło się to również
Tabela 2 Wyniki ogólnej analizy porostu koniczyny Results of general analysis of red clover plants
| Pokos Cut | Rok Year | Wysokość roślin w cm High of plants in cm | Liczba na pow. 1 m2 Number on the plot of 1 m2: roślin plants | Liczba na pow. 1 m2 Number on the plot of 1 m2: pędów buds | Liczba na pow. 1 m2 Number on the plot of 1 m2: główek heads | Liczba kwiatów Number of flowers: w główce in heads | Liczba kwiatów Number of flowers: w tys./ /1 m2 in thousands on the plot of 1 m 2 |
|---|---|---|---|---|---|---|---|
| I | 1969 | 63 | 83 | 147 | 457 | 53,4 | 25,4 |
| 1970 | 98 | 114 | 211 | 709 | 56,3 | 39,9 | |
| 1971 | 86 | 101 | 187 | 657 | 63,9 | 37,2 | |
| Średnio Average | 83 | 99 | 182 | 608 | 57,8 | 34,2 | |
| II | 1969 | 45 | 75 | 148 | 436 | 75,3 | 32,8 |
| 1970 | 74 | 117 | 225 | 634 | 76,7 | 48,5 | |
| 1971 | 68 | 96 | 205 | 555 | 81,2 | 45,0 | |
| Średnio Average | 62 | 96 | 193 | 542 | 77,7 | 41,8 |
ujemnie na pozostałych przy życiu roślinach, które w obu pokosach wyrosły niższe i wytworzyły mniej pędów, główek i kwiatów niż w suchszym i podobnie ciepłym roku 1971. Natomiast w roku 1970, chociaż chłodniejszym lecz bogatszym w opady niż na przykład rok 1971, koniczyna I i II pokosu wyrosła znacznie wyższa i obficiej kwitła.
Drugi pokos był każdego roku o około 25% niższy od pierwszego, wytwarzał nieco mniej główek na jednostce powierzchni (przy słabej tendencji do nieco większej liczby pędów), ale znacznie więcej kwiatów w główce i w rezultacie więcej także kwiatów na 1 m2.
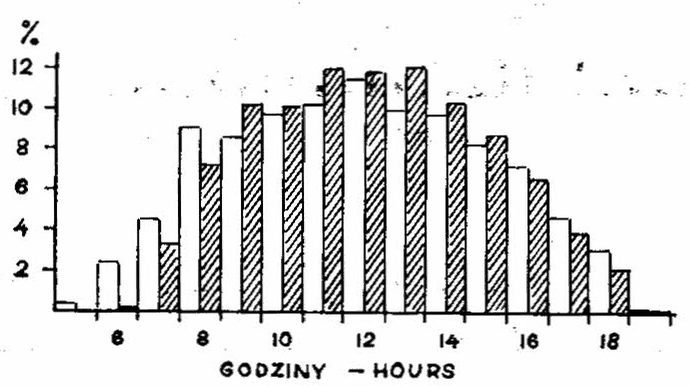
Dzienna dynamika rozkwitania. Kwiaty koniczyny rozkwitają tylko w dzień, od około godz. 5 do 19 w pokosie I, a od 6 do 19 w pokosie II. Krótszy czas rozkwitania koniczyny pokosu II wiąże się ściśle z krótszym dniem.
Dzienną dynamikę rozkwitania da się przedstawić przy pomocy dość regularnej krzywej jednowierzchołkowej, której szczyt wypada w godzinach południowych (ryc. 1). Nieco intensywniejsze rozkwitanie kwiatów między godziną 7 i 8 dla pokosu I oraz między 8 i 9 dla pokosu II można tłumaczyć chyba tym, że w ciągu nocy, przy zahamowanym procesie
rozkwitania, odbywa się przecież, chociaż znacznie wolniej niż w dzień, wzrost pąków kwiatowych.
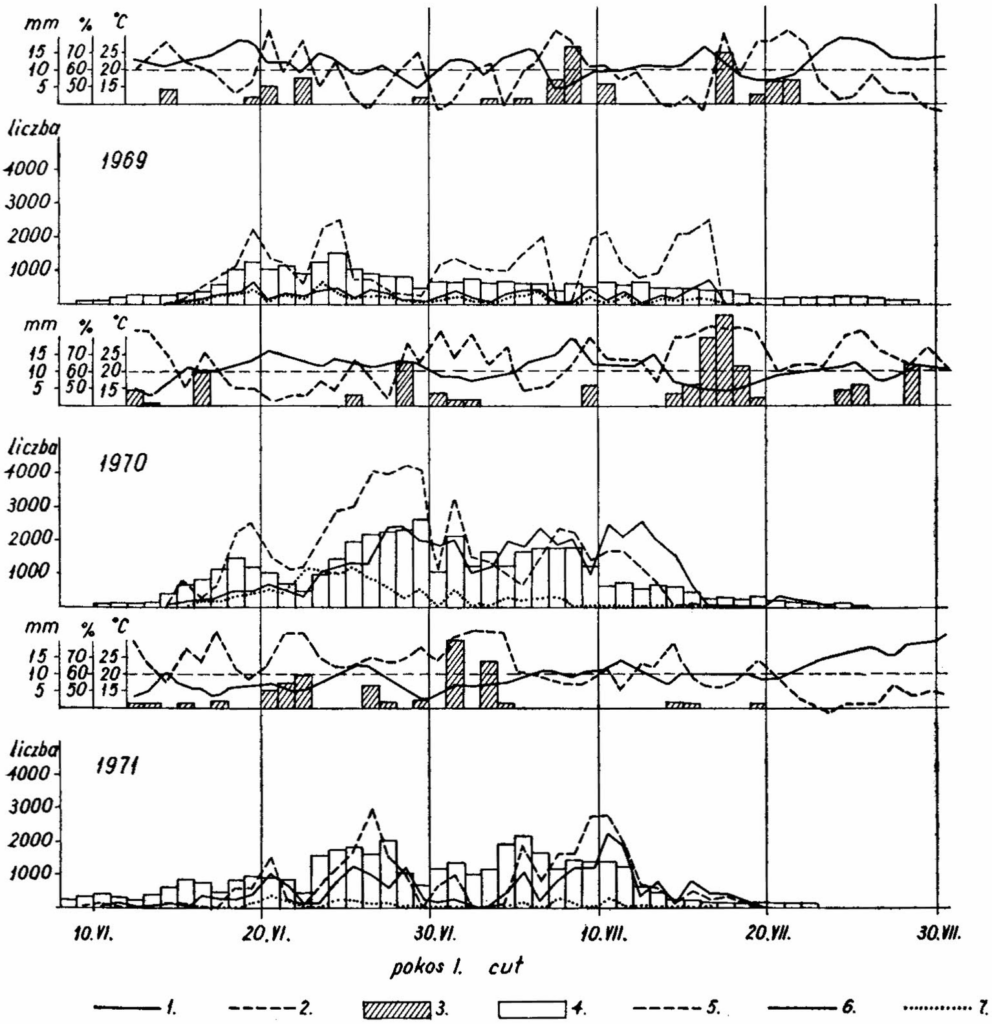
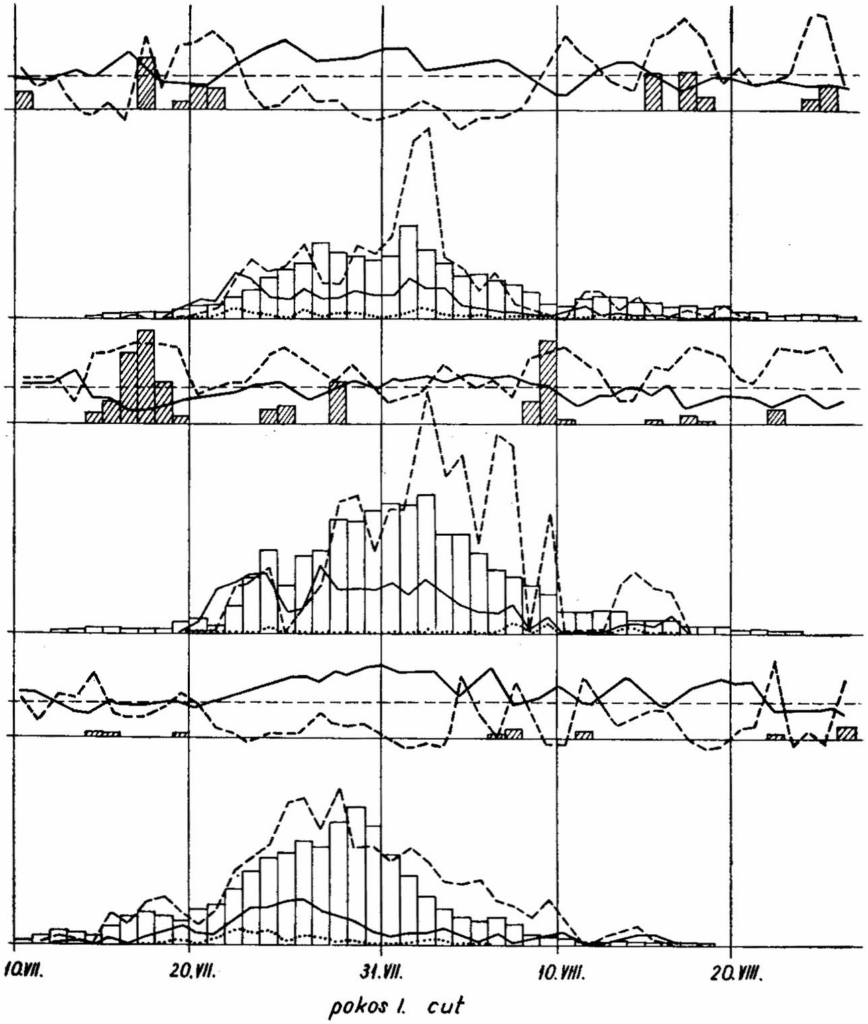
Przebieg kwitnienia łanu. Na ryc. 2 przedstawiono liczbę rozpoczynających kwitnienie główek na jednostce powierzchni, liczbę rozkwitających kwiatów oraz liczbę główek jednocześnie kwitnących w poszczególnych dniach okresu kwitnienia koniczyny I i II pokosu, w zestawieniu z przebiegiem niektórych czynników pogody. Ogólnie biorąc, kwitnienie pokosu II było bardziej intensywne i mniej rozciągnięte w czasie niż kwitnienie pokosu I. Okres intensywnego rozkwitania koniczyny pierwszego pokosu trwał od około połowy czerwca do połowy lipca, a drugiego (przy koszeniu pierwszego odrostu na paszę między 10 a 15 czerwca) — przez ostatnią dekadę lipca i pierwszą dekadę sierpnia. Maksymalna liczba rozkwitających w ciągu dnia kwiatów na 1 m2 sięgała dla koniczyny wcześniej kwitnącej 2—2,5 tys., a dla kwitnącej później 3—4 tys.
Intensywność rozkwitania łanu zależała w dużym stopniu do warunków pogody. Wzrost temperatury i towarzyszący temu zwykle spadek wilgotności powietrza wpływał dodatnio na intensywność kwitnienia, a spadek temperatury i występujące często w tym czasie opady hamowały proces rozkwitania łanu. Łatwo to prześledzić zwłaszcza na danych dla pokosu I we wszystkich trzech latach badań.
Wpływ temperatury i wilgotności powietrza na rozkwitanie główek. Wywołane czynnikami meteorologicznymi wahania w intensywności rozkwitania łanu były wynikiem zmian w liczbie nowo rozkwitających główek na jednostce powierzchni oraz w liczbie rozkwitających kwiatów
Tabela 3 Liczba kwiatów rozkwitających w ciągu dnia w główce w zależności od średniej dziennej temperatury i wilgotności względnej (średnie z lat 1969—1971) Number starting to bloom flowers in the head during a day in dependence from the average daily temperature and relative humidity of air (average from the years 1969—1971)
| Temperatura w °C Temperature in °C | Wilgotność względna powietrza w % Relative humidity of air in %: <40 | Wilgotność względna powietrza w % Relative humidity of air in %: 40—50 | Wilgotność względna powietrza w % Relative humidity of air in %: 50—60 | Wilgotność względna powietrza w % Relative humidity of air in %: 60—70 | Wilgotność względna powietrza w % Relative humidity of air in %: 70—80 | Wilgotność względna powietrza w % Relative humidity of air in %: 80< | Średnie ważone Average weighted |
|---|---|---|---|---|---|---|---|
| <16 | — | 6,0 | 7,0 | 5,9 | 6,3 | 4,6 | 5,3 |
| 16,1—18 | 5,5 | 9,5 | 7,0 | 8,3 | 8,5 | 7,6 | 7,9 |
| 18,1—20 | 7,5 | 10,2 | 9,0 | 9,1 | 9,1 | 6,3 | 8,7 |
| 20,1—22 | 8,5 | 10,1 | 11,5 | 11,1 | 10,6 | 9,0 | 10,4 |
| 22,1—24 | 10,2 | 10,7 | 12,5 | 9,1 | 9,7 | 9,5 | 10,1 |
| 24,1—26 | 11,2 | 10,8 | 12,4 | 11,0 | — | — | 11,3 |
| 26,1< | 10,8 | 13,9 | 12,6 | — | — | — | 12,2 |
| Średnie ważone Average weighted | 9,6 | 11,4 | 10,6 | 9,0 | 9,1 | 7,3 | — |
w główce. Z danych w tabeli 3 wynika, że największy wpływ na liczbę rozkwitających dziennie kwiatów w główce wywierała temperatura, a w znacznie mniejszym stopniu wilgotność powietrza.
Wielkość główek kwiatowych w różnych fazach kwitnienia plantacji. Dzięki temu, że na poletkach wyznaczanych dla obserwacji sezonowej dynamiki rozkwitania łanu etykietowano każdą główkę i znano jej porę kwitnienia, można było porównać wielkość główek z różnych faz okresu kwitnienia. Okres kwitnienia podzielono na 4 części, przyjmując po około 20% główek dla początkowej i końcowej fazy kwitnienia oraz po około 30% główek dla pierwszej i drugiej połowy pełni kwitnienia.
Tabela 4 Liczba kwiatów w główkach z różnych faz okresu kwitnienia plantacji Number of flowers in the heads in different periods of fields blooming
| Pokos Cut | Faza okresu kwitnienia* Phase of blooming period | Lata badań Years of investigations: 1969 | Lata badań Years of investigations: 1970 | Lata badań Years of investigations: 1971 | Średnio Average |
|---|---|---|---|---|---|
| I | a | 50,0 | 64,0 | 46,2 | 53,4 |
| b | 52,6 | 57,4 | 57,2 | 55,7 | |
| c | 52,6 | 51,2 | 70,0 | 57,9 | |
| d | 64,5 | 60,9 | 75,0 | 66,8 | |
| II | a | 85,0 | 82,4 | 92,1 | 86,5 |
| b | 74,4 | 84,8 | 89,8 | 83,0 | |
| c | 72,2 | 72,8 | 80,6 | 75,2 | |
| d | 73,9 | 65,7 | 59,2 | 66,3 |
- a — początkowa faza kwitnienia (ok. 20% główek) early phase of blooming (about 20% heads) b — pierwsza połowa pełni kwitnienia (ok. 30% główek) first half period of full blooming (about 30% of heads) c — druga połowa pełni kwitnienia (ok. 30% główek) second half period of full blooming (about 30% heads) d — końcowa faza kwitnienia (ok. 20% główek) end phase of blooming (about 20% of heads)
W miarę późniejszej fazy okresu kwitnienia wielkość główek w pokosie I na ogół wzrastała, a w pokosie II malała (tab. 4). Zjawisko to najłatwiej byłoby powiązać z długością dnia, ale dane dla pokosu I z 1970 r. wskazują, że również inne czynniki meteorologiczne mogły odgrywać tu pewną rolę. W roku 1970 od pierwszej do trzeciej fazy kwitnienia zaznaczył się spadek liczby kwiatów w główce pokosu I, chociaż w fazie końcowej było ich znowu blisko tyle, co w początkowej.
Skład populacji główek według ich wielkości i długości rozkwitania. Wśród populacji główek pierwszego pokosu koniczyny, najmniejsze z nich
strona 210posiadały około 24 kwiaty i rozkwitały 3 dni, a największe — 90 kwiatów i rozkwitały 13 dni (tab. 5). W pokosie II najkrócej (3 dni) rozkwitające główki miały po około 40 kwiatów, a najdłużej (13 dni) — po około 140 kwiatów.
Główna masa główek pokosu I znajdowała się w przedziałach 5—9 dni długości rozkwitania i 48—68 liczby kwiatów w główce, a pokosu II 4—8 dni rozkwitania i 56—89 liczby kwiatów w główce. Główki o podobnej liczbie kwiatów rozkwitały więc w pokosie II znacznie krócej niż w pokosie I.
W obu pokosach zaznaczyła się tendencja do nieco szybszego rozkwitania mniejszych główek, o czym świadczy większa liczba rozkwitających w nich w ciągu dnia kwiatów.
Dynamika rozkwitania główek różnej wielkości. Ze względu na stopniowe i regularne zmiany w dynamice rozkwitania główek różnej wielkości, w tabeli 6 zamieszczono tylko dane dla główek rozkwitających 3, 6, 9 i 12 dni. Dynamikę rozkwitania główek obu pokosów koniczyny, mierzoną liczbą kwiatów nowo rozkwitających w kolejnych dniach, moż-
Tabela 5 Wielkość główek, struktura ich populacji oraz intensywność rozkwitania w zależności od długości rozkwitania (średnie z lat 1969—1971) Size of heads, their percentage and intensity of starting to bloom in dependence from duration of blooming (average from the years 1969—1971)
| Długość rozkwitania główek w dobach Length of starting to bloom heads in 24 hours | Wielkość główek=liczba kwiatów w główce dla pokosu Size of heads=number of flowers in the head in cuts: I | Wielkość główek=liczba kwiatów w główce dla pokosu Size of heads=number of flowers in the head in cuts: II | Udział procentowy główek danej wielkości w pokosie: Percentage of heads of particular size in cuts: I | Udział procentowy główek danej wielkości w pokosie: Percentage of heads of particular size in cuts: II | Średnia liczba kwiatów rozkwitających dziennie w główce z pokosu: Average number of starting to bloom flowers daily in the head in cuts: I | Średnia liczba kwiatów rozkwitających dziennie w główce z pokosu: Average number of starting to bloom flowers daily in the head in cuts: II |
|---|---|---|---|---|---|---|
| 3 | 24,3 | 40,5 | 2,3 | 2,3 | 8,1 | 13,5 |
| 4 | 36,8 | 55,8 | 5,7 | 9,1 | 9,2 | 14,0 |
| 5 | 48,2 | 71,4 | 11,9 | 23,8 | 9,6 | 14,3 |
| 6 | 54,7 | 78,2 | 23,9 | 20,9 | 9,1 | 13,0 |
| 7 | 60,0 | 85,9 | 19,3 | 19,7 | 8,6 | 12,3 |
| 8 | 66,1 | 89,1 | 13,8 | 11,6 | 8,3 | 11,1 |
| 9 | 67,9 | 96,2 | 14,9 | 6,9 | 7,5 | 10,7 |
| 10 | 67,5 | 106,1 | 5,5 | 3,8 | 6,8 | 10,6 |
| 11 | 68,4 | 109,5 | 2,0 | 1,0 | 6,2 | 10,0 |
| 12 | 83,1 | 131,9 | 0,4 | 0,5 | 6,9 | 11,0 |
| 13 | 90,3 | 142,2 | 0,3 | 0,3 | 6,9 | 10,9 |
| Średnio Average | 58,0 | 80,0 | — | — | 8,5 | 12,7 |
Tabela 6 Liczba kwiatów rozkwitających w główkach w kolejnych dniach ich kwitnienia (średnie z lat 1969—1971) Number of starting to bloom flowers in the heads during following days of blooming (average from the years 1969—1971)
| Pokos Cut | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 1 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 2 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 3 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 4 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 5 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 6 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 7 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 8 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 9 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 10 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 11 | Kolejne dni rozkwitania główek Following days of starting to bloom heads: 12 |
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| I | 9,6 | 10,8 | 3,9 | |||||||||
| II | 14,7 | 19,0 | 6,8 | |||||||||
| I | 7,4 | 13,4 | 14,5 | 10,9 | 6,1 | 2,5 | ||||||
| II | 10,8 | 20,7 | 20,8 | 14,3 | 8,3 | 3,4 | ||||||
| I | 5,5 | 10,5 | 11,5 | 11,6 | 10,6 | 7,5 | 5,2 | 3,5 | 1,9 | |||
| II | 7,1 | 14,7 | 14,7 | 16,4 | 14,9 | 12,7 | 8,9 | 5,2 | 2,5 | |||
| I | 3,8 | 6,5 | 6,8 | 9,8 | 10,8 | 9,8 | 9,5 | 7,0 | 7,0 | 6,8 | 6,8 | 2,0 |
| II | 6,4 | 13,6 | 16,7 | 15,5 | 14,6 | 13,7 | 13,1 | 10,2 | 9,7 | 7,1 | 5,8 | 2,9 |
na przedstawić przy pomocy słabo asymetrycznej krzywej, o wierzchołku przesuniętym nieco w lewo. Oznacza to, że w pierwszej połowie okresu rozkwitania główki rozkwitały intensywnej niż w drugiej.
Długość życia kwiatów oraz długość rurki korony i wydzielanie nektaru. W kilku latach wykonywane obserwacje wykazały, że nie zapylone kwiaty koniczyny czerwonej mogą żyć 4—11 dni, najczęściej jednak 7—
Tabela 7 Długość rurki korony oraz nagromadzenie się nektaru z upływem wieku nie zapylonego kwiatu (dane z roku 1969) Length of corolla tube and accumulation of nectar in the unpollinated flower (data from the year of 1969)
| Wiek kwiatów w dobach Age of flowers in days | Długość rurki korony w mm Length of corolla tube in mm | Głębokość ukrycia nektaru w mm Depth of hiding nectar in mm | Wysokość słupka nektaru w mm High of nectar level in mm | Ilość nektaru z 10 kwiatów w mg Quantity of nectar from 10 flowers in mg | % cukrów w nektarze % of sugar in nectar | Ilość cukrów z 10 kwiatów w mg Quantity of sugar from 10 flowers in mg |
|---|---|---|---|---|---|---|
| 1 | 7,77 | 7,44 | 0,33 | 0,18 | * | * |
| 1 | 8,52 | 7,78 | 0,74 | 1,14 | 65,4 | 0,75 |
| 2 | 8,55 | 7,39 | 1,16 | 2,85 | 57,3 | 1,64 |
| 3 | 8,66 | 7,41 | 1,25 | 3,50 | 57,3 | 2,01 |
| 4 | 8,73 | 7,25 | 1,48 | 3,39 | 58,5 | 1,99 |
| 5 | 8,96 | 7,52 | 1,44 | 3,53 | 62,0 | 2,19 |
| 6 | 8,96 | 7,49 | 1,47 | 3,38 | 59,8 | 2,02 |
| 7 | 8,06 | 7,44 | 0,62 | 2,16 | 60,0 | 1,30 |
- — z powodu małej ilości nektaru nie oznaczono % cukrów
- — because of small amount of nectar did not mark % of sugars
—8 dni, po czym korona ich zaczyna więdnąć. Podczas upałów i suszy kwiaty żyją krócej niż przy pogodzie chłodnej i wilgotnej.
Szczegółowe obserwacje przeprowadzone w roku 1969 (tab. 7) wykazały, że w pierwszym dniu po rozwinięciu się rurka korony jeszcze nieznacznie rosła, a w następnych dniach pozostawała w zasadzie bez zmian. Dopiero tuż przed wyraźnymi objawami zwiędnięcia ulegała ona nieznacznemu skróceniu.
Średnio wysokość słupka nektaru wzrastała stopniowo aż do czwartego dnia, a w siódmym dniu, przy pierwszych objawach więdnięcia koron, znowu malała. Interesujące przy tym, że głębokość ukrycia nektaru pozostawała przez cały czas prawie na jednakowym poziomie. Wyjątek stanowiły kwiaty jednodniowe, u których odległość od górnego brzegu rurki kwiatowej do poziomu nektaru była nieco większa niż u pozostałych.
Odpowiednio do wysokości słupka nektaru zmieniała się ilość nektaru i ilość cukrów, przy stosunkowo stałej procentowej zawartości suchej masy w nektarze.
ZAPYLANIE KONICZYNY CZERWONEJ
Obserwowane gatunki owadów zapylających. Najczęściej oblatującymi koniczynę owadami zapylającymi były pszczoły miodne i trzmiele. Pszczół samotnic było bardzo mało, zwłaszcza na koniczynie drugiego pokosu.
Z trzmieli występowały głównie: trzmiel ziemny i gajowy — Bombus terrestris (L.) i B. lucorum (L.), t. rudy — B. agrorum (F), t. rudonogi — B. ruderiarius Mull., t. kamiennik — B. lapidarius (L), t. ogrodowy — B. hortorum (L.) oraz rzadziej: t. paskowany — B. subteraneus (L.), t. rudoszary — B. silvarum (L.), t. leśny — B. pratorum (L.) i t. żółty — B. muscorum (T.).
Z pszczół samotnic spotkano na pierwszym pokosie głównie pszczolinki (Andrena F.) i kornutkę (Eucera Scop.), a na drugim tylko pszczolinki.
Dzienna dynamika oblotu kwiatów przez owady zapylające. Ogólnie biorąc, dzienna dynamika oblotu koniczyny przez owady zapylające jest podobna do dziennej dynamiki rozkwitania kwiatów (ryc. 3). Oblot jednak w stosunku do rozkwitania jest o 1—2 godzin opóźniony, w czym przejawia się harmonia naturalnej kolejności zjawisk: kwitnienie — zapylanie.
Na koniczynie pokosu I wszystkie trzy grupy owadów (pszczoły miodne, trzmiele, pszczoły samotnice) rozpoczynały pracę przed godz. 6, a kończyły: między godz. 17 a 18 — pszczoły samotnice, między 18 a 19 — pszczoły miodne i między 19 a 20 — trzmiele. W podobnej kolejno-
strona 213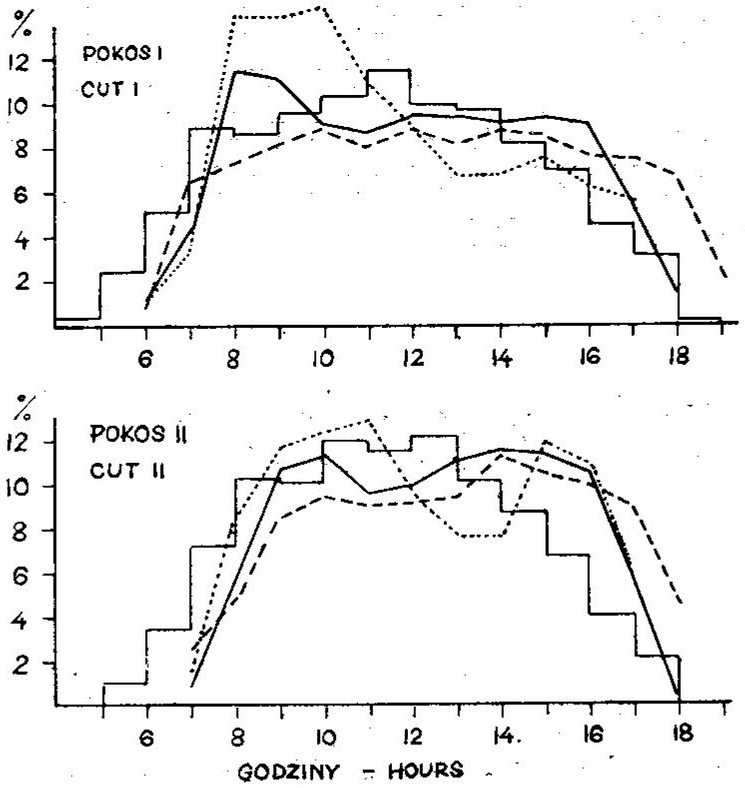
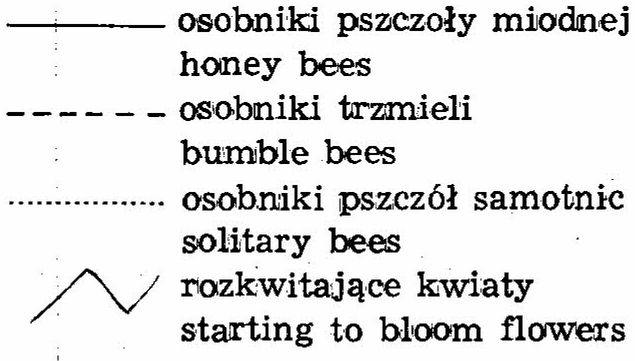
Tabela 8 Średnia liczba owadów zapylających na 100 m2 plantacji Average number of pollinating insects on the 100 m2 of plantation
| Pokos Cut | Rok Year | Pszczoły miodne Honeybees: średnio average | Pszczoły miodne Honeybees: maks. max. | Trzmiele Bumblebees: średnio average | Trzmiele Bumblebees: maks. max. | Pszczoły samotnice Solitary bees: średnio average | Pszczoły samotnice Solitary bees: maks. max. |
|---|---|---|---|---|---|---|---|
| I | 1969 | 28,0 | 50 | 5,7 | 14 | 3,8 | 6 |
| 1970 | 41,6 | 82 | 33,3 | 50 | 7,3 | 12 | |
| 1971 | 18,7 | 60 | 13,7 | 44 | 1,1 | 4 | |
| Średnio Average | 29,4 | — | 17,6 | — | 4,1 | — | |
| II | 1969 | 34,8 | 110 | 13,7 | 28 | 1,8 | 4 |
| 1970 | 62,7 | 140 | 21,7 | 40 | 1,1 | 3 | |
| 1971 | 37,1 | 90 | 10,8 | 27 | 2,3 | 4 | |
| Średnio Average | 44,9 | — | 15,1 | — | 1,7 | — |
ści owady te rozpoczynały i kończyły w ciągu dnia oblot koniczyny pokosu II. Jednakże czas pracy owadów pszczołowatych na koniczynie pokosu II był o 1—2 godz. krótszy niż na pokosie I, ponieważ rano zaczynały one oblot nieco później, a wieczorem kończyły nieco wcześniej, co wiązało się ściśle z długością dnia.
Pora najintensywniejszego, dość wyrównanego oblotu koniczyny przez owady zapylające wypadała między godzinami 8 a 16 dla pokosu I oraz między 9 a 16 dla pokosu II. Pszczoły samotnice wykazywały w godzinach południowych pewne zmniejszenie intensywności oblotu koniczny, trudne zresztą do wytłumaczenia. Ranne wzmożenie oblotu koniczyny
przez pszczoły samotnice, a nieznaczne także przez pszczoły miodne, wiązało się z poprzedzającym je wzmożonym nieco rozkwitaniem kwiatów. Może to być jednak zbieżność przypadkowa.
Zagęszczenie owadów zapylających na koniczynie. We wszystkich trzech latach badań, przez cały prawie okres kwitnienia I i II pokosu, najliczniej oblatującymi koniczynę owadami były pszczoły miodne, a następnie trzmiele. Natomiast pszczół samotnic obserwowano bardzo mało, zwłaszcza w końcu lipca i w sierpniu. Średnie dla okresu pełni kwitnienia południowe zagęszczenie pszczół miodnych na 1 ha wynosiło 1,9—6,3 tys., trzmieli 1,1—3,3 tys. i pszczół samotnic 0,1—0,7 tys. osobników (tab. 8). Maksymalne zagęszczenie owadów zapylających w latach badań na koniczynie pokosu I sięgało 5—8 tys. osobników pszczoły miodnej, 1—5 tys. trzmieli i 0,3—1,1 tys. pszczół samotnic, a na koniczynie pokosu II odpowiednio: 9—11 tys. pszczół miodnych, 3—4 tys. trzmieli i 0,3—0,4 tys. pszczół samotnic. Większe zagęszczenie trzmieli w latach 1970 i 1971 na pierwszym pokosie koniczyny niż na drugim wynikało stąd, że sztucznie hodowane w Oddziale Pszczelnictwa rodziny tych owadów były dopiero w połowie lipca wywożone poza Puławy.
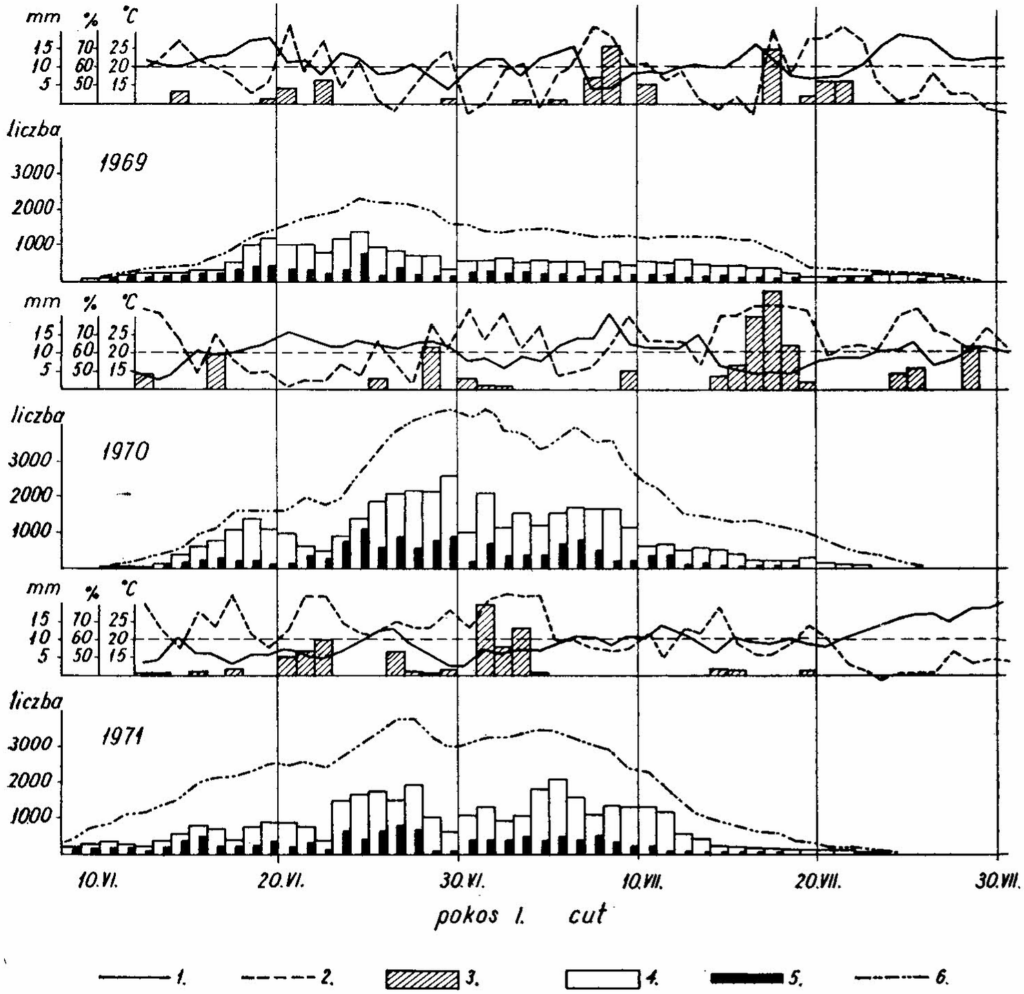
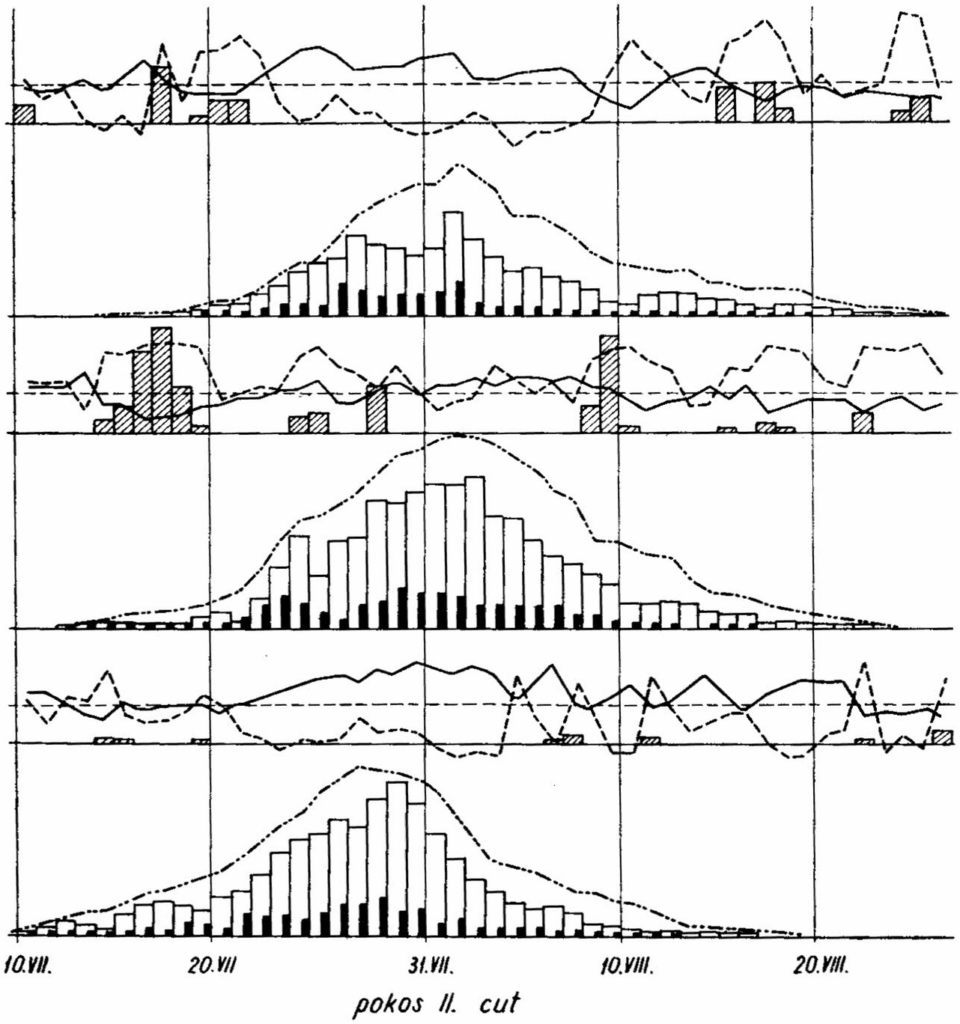
Sezonowa dynamika oblotu koniczyny przez owady zapylające. Intensywność oblotu kwitnącej plantacji koniczyny przez owady zapylające, mierzona liczbą osobników danej grupy owadów pracujących na jednostce powierzchni w godzinach południowych, była w poszczególnych dniach okresu kwitnienia na ogół proporcjonalna do intensywności rozkwitania łanu (ryc. 4). Bardziej jednak niż proces rozkwitania była ona modyfikowana przez zmieniające się z dnia na dzień czynniki pogody. Jest to zrozumiałe, ponieważ w dniach chłodnych i deszczowych lot owadów ustawał nawet całkowicie, a proces rozkwitania kwiatów trwał nadal. Jednakże ten sam układ czynników pogody, który nie sprzyjał lotom owadów, wpływał w dużym stopniu hamująco także na proces rozkwitania kwiatów.
Zawiązywanie nasion. Średni procent zawiązywanych nasion w stosunku do liczby kwiatów był dla pokosu I wyższy w bardziej zbliżonym do przeciętnego pod względem temperatury i opadów roku 1970, niż w cieplejszym lecz suchszym roku 1971 (tab. 9). (Wyniki dla pokosu I z roku 1969 trzeba było odrzucić z powodu mylnego wykonania analizy główek). Ta sama tendencja zaznaczyła się dla pokosu II między tymi latami. Najlepiej natomiast zawiązywała nasiona koniczyna pokosu II (77%) w roku 1969, który był podobnie ciepły jak rok 1971, lecz nieco mniej suchy. Pokos drugi lepiej od pierwszego zawiązywał nasiona tylko w roku 1971.
Wysoki procent zawiązywanych nasion korelował z piękną, ciepłą i bezdeszczową pogodą w okresie kwitnienia koniczyny, o czym się łatwo przekonać, porównując średnie dla pokosów w poszczególnych latach
strona 217Tabela 9 Zawiązywanie nasion u koniczyny w różnych fazach okresu jej kwitnienia w zestawieniu z przebiegiem niektórych czynników pogody w czasie zapylania kwiatów Setting of red clover seeds in different phasa of blooming in connection with some weather factors during pollinating flower
| Pokos Cut | Rok Year | Faza okresu* kwitnienia Phase of blooming period | % zawiąz. nasion w stos. do liczby kwiatów % of seeds setting in proportion to number of flowers | Średnie dzienne: Daily average: temp. pow. w °C temperature of air in °C | Średnie dzienne: Daily average: wzgl. wilg. pow. w % relative hummidity of air in % | Sumy opadów w mm Sums of rainfalls in mm |
|---|---|---|---|---|---|---|
| I | 1970 | a | 75,1 | 22,0 | 54,3 | 29,1 |
| b | 70,1 | 20,4 | 64,1 | 17,9 | ||
| c | 60,1 | 21,9 | 66,0 | 7,7 | ||
| d | 48,3 | 18,4 | 73,4 | 87,5 | ||
| a—d | 65,1 | 20,4 | 66,3 | 131,9 | ||
| 1971 | a | 43,1 | 16,6 | 71,2 | 26,0 | |
| b | 46,5 | 16,6 | 63,9 | 34,7 | ||
| c | 53,2 | 18,5 | 45,1 | 50,2 | ||
| d | 66,2 | 19,8 | 53,3 | 1,6 | ||
| a—d | 51,7 | 18,8 | 59,0 | 101,3 | ||
| II | 1969 | a | 84,2 | 22,9 | 56,5 | 29,0 |
| b | 88,5 | 24,2 | 39,7 | 0,0 | ||
| c | 75,6 | 21,0 | 50,2 | 0,0 | ||
| d | 49,8 | 19,0 | 69,1 | 57,0 | ||
| a—d | 77,4 | 20,7 | 59,0 | 86,0 | ||
| 1970 | a | 71,3 | 18,1 | 74,8 | 92,5 | |
| b | 79,5 | 21,9 | 66,8 | 22,6 | ||
| c | 68,2 | 20,8 | 68,9 | 34,2 | ||
| d | 34,8 | 17,8 | 71,7 | 43,8 | ||
| a—d | 65,6 | 19,5 | 71,4 | 146,2 | ||
| 1971 | a | 64,5 | 19,8 | 55,5 | 1,6 | |
| b | 79,2 | 26,3 | 44,5 | 0,6 | ||
| c | 59,9 | 25,5 | 51,2 | 3,4 | ||
| d | 43,5 | 23,1 | 48,4 | 6,8 | ||
| a—d | 63,3 | 23,6 | 51,3 | 8,4 |
- — wyjaśnienia w tab. 4
- — explanation in tabl. 4
z tab. 8, z danymi meteorologicznymi i porą kwitnienia koniczyny na ryc. 4.
Wyraźna zbieżność lepszego zawiązywania nasion z wyższą temperaturą i niższą wilgotnością powietrza w czasie kwitnienia i zapylania koniczyny zaznaczyła się również dla poszczególnych faz okresu kwitnienia (tab. 8). Wprawdzie dane dla pokosu II z 1971 r. od tej zasady odbiegają (temperatura wzrasta na ogół w miarę późniejszej fazy kwitnienia, a procent zawiązanych nasion maleje), ale nie zapominajmy o postępującej suszy, która musiała bez wątpienia odbić się ujemnie na zawiązywaniu nasion, ponieważ rośliny wykazywały objawy więdnięcia.
Zasychanie nasion. Średni procent nasion zaschniętych w stosunku do wszystkich zawiązanych wahał się od 12 do 20 i trudno dopatrzeć się związku między wielkością poszczególnych danych a średnią temperaturą i wilgotnością względną powietrza w okresie dojrzewania nasion (tab. 10). Jeżeli wziąć natomiast dane dla poszczególnych faz okresu kwitnienia, to widać wyraźną zbieżność wyższego stopnia zasychania nasion nie tylko z niższą temperaturą i z wyższą wilgotnością względną powietrza w czasie dojrzewania nasion, ale także z mniejszą ilością godzin słonecznych w ciągu dnia.
Szczególnie wysoki procent zaschniętych nasion zawierały główki z końcowej fazy kwitnienia pokosu II, pozostawianego u nas z reguły na nasiona. Należy się spodziewać, że przesunięcie okresu kwitnienia koniczyny nasiennej na porę wcześniejszą pozwoliłoby obniżyć stopień zasychania nasion w później kwitnących główkach, o czym świadczą dane dla pokosu I.
Wpływ wieku zapylanego kwiatu na zawiązywanie nasion. Najwyższy procent zawiązanych nasion (80,8% liczby kwiatów) stwierdzono dla grupy kwiatów, do których owady zapylające miały dostęp zaraz po rozwinięciu się korony (tab. 11). Dalej, w miarę jak udostępniane owadom kwiaty były starsze, mniejszy ich procent zawiązywał nasiona. Jednakże około 40% nie zwiędniętych jeszcze kwiatów 6 i 7 dniowych było zdolnych do wydawania nasion.
Wiek zapylanego kwiatu nie wywierał żadnego wpływu na procent nasion zaschniętych w stosunku do ogółu zawiązanych.
Wysokość plonów nasion. Liczba nasion dorodnych ze 100 zapylonych kwiatów wahała się od około 30 do ponad 50, a średnio dla obu pokosów wynosiła około 46 (tab. 12). W stosunku do jednostki powierzchni większą liczbę nasion wydawała koniczyna pokosu II niż I, ale o mniejszym nieco ciężarze 1000 nasion, zwłaszcza w ciepłych i ubogich w opady latach 1969 i 1971.
Plony nasion, zarówno obliczone teoretycznie, jak i określone na podstawie zbioru z poletek próbnych, były dla koniczyny II pokosu trochę wyższe niż dla pokosu I. Najwięcej nasion wydała koniczyna obu pokosów w roku 1970, kiedy to dzięki wyższym (zbliżonym do normy)
strona 219Tabela 10 Zasychanie nasion koniczyny w zestawieniu z przebiegiem niektórych czynników pogody w czasie dojrzewania Dry up of red clover seeds in connection to some weather factors during rippening of seeds
| Pokos Cut | Rok Year | Faza okresu* kwitnienia Phase of blooming period | % nasion zaschn. w stosunku do zawiąz. % of dry up seeds in proportion to set up seeds | Średnie dobowe: A day average: temp. pow. w °C temperature of air in C | Średnie dobowe: A day average: wilg. wzgl. pow. w % relative hummidity of air in % | Średnia ilość godz. słonecznych w ciągu dnia Average amount of sunny hours during day |
|---|---|---|---|---|---|---|
| I | 1970 | a | 9,2 | 18,4 | 72,1 | 8,3 |
| b | 13,1 | 18,7 | 74,4 | 6,4 | ||
| c | 13,7 | 17,5 | 75,3 | 6,5 | ||
| d | 10,5 | 17,7 | 73,2 | 8,6 | ||
| a—d | 11,9 | 18,4 | 72,1 | 8,3 | ||
| 1971 | a | 24,7 | 17,7 | 64,1 | 9,0 | |
| b | 26,7 | 18,8 | 61,6 | 10,0 | ||
| c | 15,1 | 18,7 | 56,8 | 10,6 | ||
| d | 19,8 | 21,5 | 54,3 | 12,2 | ||
| a—d | 19,8 | 17,7 | 64,1 | 9,0 | ||
| II | 1969 | a | 4,2 | 17,3 | 75,2 | 7,4 |
| b | 10,9 | 16,5 | 77,1 | 6,6 | ||
| c | 18,2 | 15,8 | 84,1 | 4,9 | ||
| d | 40,0 | 15,0 | 82,0 | 5,2 | ||
| a—d | 16,6 | 17,3 | 75,2 | 7,4 | ||
| 1970 | a | 7,8 | 16,9 | 74,3 | 6,6 | |
| b | 9,4 | 15,5 | 77,0 | 6,6 | ||
| c | 16,0 | 15,3 | 78,3 | 5,9 | ||
| d | 56,1 | 14,9 | 79,1 | 6,3 | ||
| a—d | 19,3 | 16,9 | 74,2 | 6,6 | ||
| 1971 | a | 8,7 | 18,6 | 60,8 | 8,7 | |
| b | 8,5 | 17,9 | 62,4 | 7,8 | ||
| c | 23,7 | 16,4 | 64,9 | 7,2 | ||
| d | 41,8 | 14,5 | 69,2 | 6,0 | ||
| a—d | 20,3 | 18,6 | 60,8 | 8,7 |
- — wyjaśnienia w tabl. 4
- — explanation in tabl. 4
opadom rośliny wytworzyły więcej kwiatów na jednostce powierzchni. Różnica między plonami teoretycznie obliczonymi a określonymi na podstawie pobranych prób roślin wynika prawdopodobnie głównie ze strat podczas zbioru i młocki.
Główna masa plonu nasion koniczyny I pokosu pochodziła z główek, które rozpoczynały rozkwitanie w około 4-tygodniowym okresie, od 15
strona 220Tabela 11 Zawiązywanie nasion u koniczyny czerwonej w zależności od wieku zapylanych kwiatów (dane z roku 1969) Setting of red clover seeds in connection from the age of pollinated flowers (data from the year od 1969)
| Wiek kwiatów w dobach Age of flowers in a days | Liczba zbadanych Number of examined: główek heads | Liczba zbadanych Number of examined: kwiatów flowers | Procent nasion: Percentage of seeds: zawiązanych w stosunku do liczby kwiatów set up in proportion to number of flowers | Procent nasion: Percentage of seeds: zaschniętych w stosunku do zawiązanych dry up in proportion to set up |
|---|---|---|---|---|
| 0 | 60 | 787 | 80,8 | 17,9 |
| 1 | 65 | 979 | 72,5 | 13,3 |
| 2 | 63 | 1120 | 71,4 | 14,6 |
| 3 | 65 | 1034 | 52,8 | 14,8 |
| 4 | 61 | 1053 | 49,5 | 19,1 |
| 5 | 71 | 1119 | 53,4 | 17,3 |
| 6 | 59 | 924 | 41,2 | 18,9 |
| 7 | 52 | 259 | 38,0 | 14,5 |
Tabela 12 Wysokość plonów nasion koniczyny czerwonej, uzyskana w drodze obliczeń oraz na podstawie zbiorów z poletek High of red clover seed crops obtained on the basis of calculation and harvesting of crop from the plots
| Pokos Cut | Rok Year | Liczba nasion dorodnych: Number of small seeds: ze 100 kwiatów from 100 flowers | Liczba nasion dorodnych: Number of small seeds: z 1 m2 w tys. szt. from 1 m2 in thousands | Ciężar 1000 nasion w g Weight of 1000 seeds in g | Plon nasion w kg z 1 ha: Crop of seeds in kg from 1 ha: zebrany z poletek gathered from the plots | Plon nasion w kg z 1 ha: Crop of seeds in kg from 1 ha: obliczony (teoretycz.) calculated (theoretical) |
|---|---|---|---|---|---|---|
| I | 1969 | 54,4 | 13,8 | 2,04 | 165 | 282 |
| 1970 | 53,1 | 21,2 | 1,88 | 282 | 399 | |
| 1971 | 31,6 | 11,8 | 2,00 | 179 | 236 | |
| Średnio Average | 46,4 | 15,6 | 1,97 | 209 | 306 | |
| II | 1969 | 50,4 | 16,5 | 1,82 | 268 | 290 |
| 1970 | 46,6 | 22,6 | 1,80 | 301 | 407 | |
| 1971 | 43,0 | 19,4 | 1,75 | 203 | 340 | |
| Średnio Average | 46,7 | 19,5 | 1,79 | 257 | 346 |
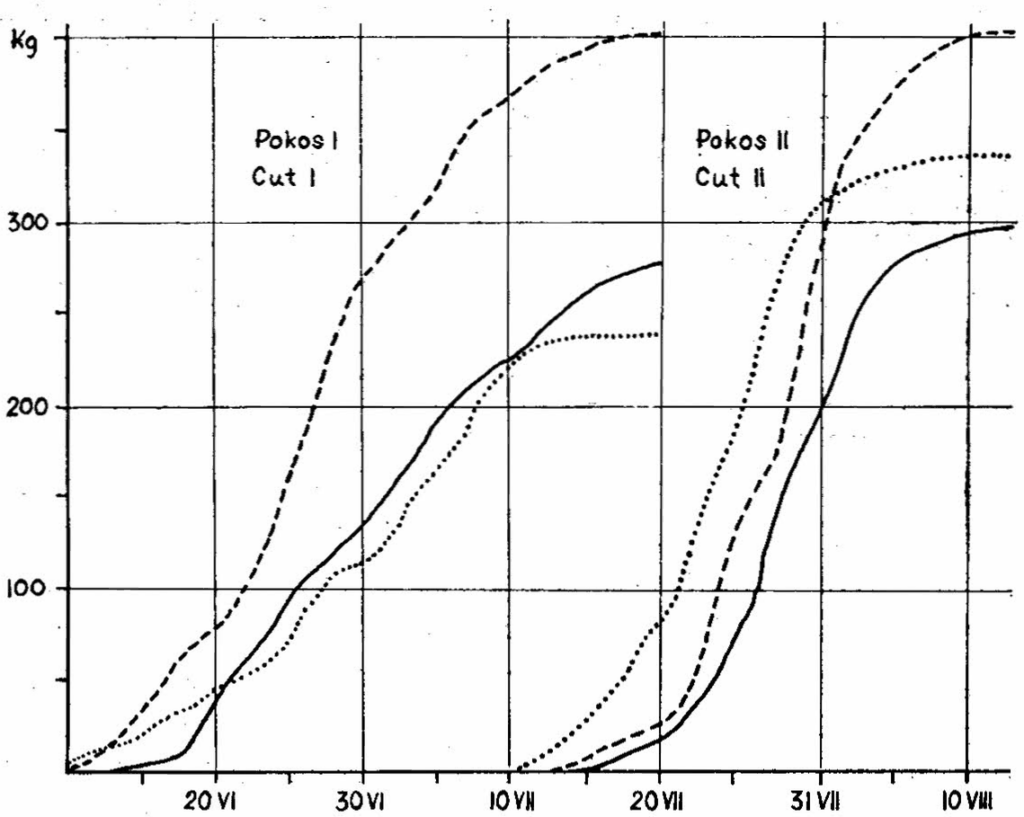
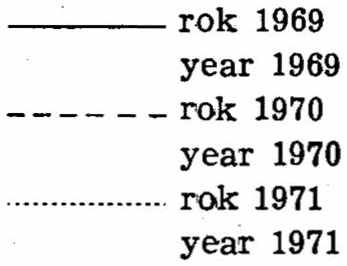
VI do 15 VII, a koniczyny pokosu II — w około 3-tygodniowym okresie, od 15 VII do 10 VIII (ryc. 5). Ilość nasion z główek rozpoczynających kwitnienie jednego dnia w tym okresie wahała się od 2 do 25 kg z 1 ha dla pokosu I i od 2 do 40 kg z 1 ha dla pokosu II.
DYSKUSJA
Większość przedstawionych w tej pracy wyników można w mniej lub bardziej przybliżony sposób porównać z danymi innych autorów.
Kwitnienie. Dodatni wpływ chłodniejszego i bogatszego w opady lata na wysokość porostu koniczyny i liczbę pędów na jednostce powierzchni (tab. 2) był podobny do opisanego przez Jelinowską (1968). Nie potwierdzono natomiast wyników wyżej cytowanej autorki, ani też wniosków Skirdego (1960), że w latach ciepłych i uboższych w opady koniczyna wytwarza więcej główek kwiatowych na jednostce powierzchni. Nie jest to jednak sprzeczność istotna, jeżeli wziąć pod uwagę,
strona 222że w jednym ciepłym i suchym roku (1969) koniczyna w Puławach została przerzedzona przez mrozy w czasie bezśnieżnej zimy, a w drugim (1971) — ucierpiała w lecie od suszy.
Dobowy rytm rozkwitania kwiatów koniczyny oraz dzienna dynamika rozkwitania była w Puławach (ryc. 1) na ogół podobna do określonej w Svalöf (Jabłoński 1962). W Puławach jednak nie zaznaczył się tak wysoki szczyt w liczbie rozkwitających kwiatów w godzinach południowych, o czym zadecydowały zepewne odmienne warunki klimatyczne.
Sezonową dynamikę rozkwitania łanu, mierzoną w niniejszej pracy liczbą nowo rozkwitających każdego dnia główek oraz kwiatów na 1 m2, zaznaczanych etykietami oraz przez obcinanie końca żagielka, można porównać z danymi Paateli (1962), który obrywał codziennie nowo rozkwitłe główki oraz z danymi Dennisa i Haasa (1967a), którzy określali co kilka dni liczbę główek jednocześnie kwitnących na 1 m2. Dane w tej pracy (ryc. 2) są jednak bardziej szczegółowe, informują bowiem nie tylko ile główek, ale też ile kwiatów rozkwitało na 1 m2 w poszczególnych dniach. Biorąc pod uwagę liczbę główek rozkwitających na 1 m2 stwierdzić należy, że w naszych warunkach proces rozkwitania koniczyny przebiega bardziej równomiernie, nie wykazuje tak dużych skoków z dnia na dzień, jak w warunkach Finlandii.
Okres rozkwitania głównej masy główek jest u nas dla koniczyny pokosu II (ten się liczy w praktyce) o kilka do kilkunastu dni krótszy niż w Danii (Dennis i Haas 1967a), co uważane jest za zjawisko korzystne z punktu widzenia produkcji nasion (Jelinowska 1968, Bawolski 1962, Staszewski 1971). Z wynikami Paateli (1962) nie można naszych danych porównywać pod tym względem, ponieważ stosowane przez tego autora obrywanie główek na tych samych poletkach mogło pociągać za sobą wytwarzanie nowych kwiatostanów przedłużających okres kwitnienia.
Dodatni wpływ wyższej temperatury na liczbę rozkwitających kwiatów w kwiatostanie (tab. 3) był u koniczyny czerwonej podobny jak u lucerny mieszańcowej (Jabłoński 1970).
Potwierdzono również udokumentowaną przez Bawolskiego (1961) prawidłowość, że koniczyna drugiego pokosu wytwarza znacznie większe główki niż koniczyna pokosu pierwszego, co wiąże się z długością dnia, na którą roślina ta jest bardzo wrażliwa (Ryńska, Staszycki, Staszewski — cyt. za Staszewskim 1971). Z fotoperiodyzmem wiąże się zapewne również stopniowe zmniejszanie się liczby kwiatów w główkach w miarę przekwitania koniczyny pokosu II, podczas gdy w pokosie I dzieje się przeważnie odwrotnie (tab. 4). Zmniejszanie się liczby kwiatów w główkach pokosu II w miarę przekwitania roślin miało przebieg podobny jak w doświadczeniach Dennisa i Haasa (1967a), którzy obserwowali wprawdzie koniczynę jednokośną, ale kwitnącą w tym samym czasie (lipiec—sierpień) co drugi odrost naszej dwukośnej.
strona 223Dla wyników dotyczących składu populacji główek pod względem ich wielkości i długości rozkwitania (tab. 5) oraz dla wyników przedstawiających dynamikę rozkwitania główek różnej wielkości (tab. 6) nie znaleziono odpowiedników w literaturze. Pozwalają one jednak lepiej rozumieć niektóre inne szczegóły biologii kwitnienia i zapylania koniczyny.
Proces nagromadzania się nektaru w kwiatach koniczyny, trwający w Puławach od czwartego dnia życia kwiatu, nie różnił się od obserwowanego w Svalöf (Jabłoński 1962), ale spadek ilości nektaru w kwiatach, wiążący się z długością ich życia (tab. 7), zachodził znacznie wcześniej niż w Szwecji (już po 6—8 dniach), o czym decydowały zapewne głównie warunki klimatyczne.
Zapylanie. Dominacja na kwiatach koniczyny pszczoły miodnej nad trzmielami jest zrozumiała, ponieważ w pobliżu plantacji stały duże pasieki doświadczalne Oddziału Pszczelnictwa IS. Jak bowiem ogólnie wiadomo, a co zostało udokumentowane przez Mielniczenkę (1954), Ponomariewą (1960), Honczarenko (1965) oraz innych, liczebność pszczół miodnych na koniczynie zależy od sąsiedztwa pasiek i od obfitości pożytku z innych roślin w okolicy.
Przebieg dziennej dynamiki oblotu koniczyny przez owady zapylające był ogólnie podobny do przedstawionego przez Górala (1969), ale rozpiętość w rozpoczynaniu i kończeniu pracy między trzmielami, a pszczołą miodną była mniejsza. Wynikała ona z wcześniejszego rozpoczynania w Puławach pracy przez pszczoły i wcześniejszego kończenia jej przez trzmiele. Dość wyrównana intensywność oblotu koniczyny przez owady zapylające w godzinach od 9 do 16 (ryc. 3) pozwala wysunąć wniosek, zgodny z ustaleniami w pracy Dylewskiej i innych (1970) w odniesieniu do lucerny, że w tej porze dnia można wykonywać obserwacje porównawcze zagęszczenia owadów na różnych plantacjach koniczyny w ciągu jednego dnia, bądź obserwacji na tej samej plantacji w ciągu okresu jej kwitnienia.
Dane dotyczące sezonowej dynamiki oblotu koniczyny przez owady zapylające (ryc. 4) wykazują nieco mniejsze skoki z dnia na dzień w liczbie osobników na jednostce powierzchni niż to podaje Dennis i Haas (1967a) dla warunków Danii. Świadczy to, że nasze warunki klimatyczne są bardziej sprzyjające dla pracy owadów pszczołowatych na koniczynie czerwonej.
Dzięki jednocześnie prowadzonym obserwacjom sezonowej dynamiki oblotu koniczyny przez owady i dynamiki rozkwitania łanu można było stwierdzić stosunkowo dużą zgodność przebiegu tych zjawisk w zależności od układu warunków atmosferycznych. Jednakże intensywność oblotu koniczyny przez owady wykazywała większe wahania pod wpływem zmieniających się warunków pogody niż proces rozkwitania łanu. Wypływa stąd wniosek potwierdzający zdania entomologów (m. in. Dylewskiej i współautorów 1970), że porównawcze badania terenowe,
strona 224trwające kilka lub kilkanaście dni i obejmujące wiele plantacji, należy wykonywać w okresie pełni kwitnienia, przy ustalonej możliwie ładnej pogodzie. Zebrane wyniki potwierdziły też niektóre dane szczegółowych badań Honczarenko (1965), że liczebność pszczół miodnych na koniczynie może, w przeciwieństwie do trzmieli, ulegać znacznym wahaniom nawet w okresie dość ustalonej pogody. Zjawisko to wiąże się prawdopodobnie z nagłym brakiem pożytku z innych roślin w okolicy (np. wykoszenie łąk lub koniczyn na paszę, względnie zaoranie mieszanek z roślinami miododajnymi), albo z wahaniami w wysokości słupka nektaru w kwiatach koniczyny.
Stopień wiązania nasion, wynoszący w omawianych badaniach (tab. 8) 52—77% liczby wytwarzanych kwiatów, należy uznać za dość wysoki w porównaniu z danymi innych autorów. Brak większych różnic w stopniu zawiązywania nasion przez koniczynę I i II pokosu jest sprzeczny z wynikami Bawolskiego (1961), ale nie odbiega od danych Jelinowskiej (1968) i Górala (1969). Zmniejszanie się procentu kwiatów wydających nasiona (w stosunku do wszystkich wytworzonych) w miarę późniejszej fazy kwitnienia, wiążące się nie tyle ze zmianami w intensywności oblotu koniczyny przez owady (ryc. 4) co z warunkami pogody w czasie zapylania (tab. 8), występowało wyraźniej niż w badaniach Górala (1969). Wypływa stąd wniosek popierający wyniki badań m. in. Nüescha (1959), Seifferta i Skirdego (1959), Bawolskiego (1961), Jelinowskiej (1968), że kwitnienie koniczyny nasiennej nie powinno wypadać zbyt późno oraz, że ze zbiorem nie należy czekać, aż dobrze dojrzeją główki z ostatniej fazy kwitnienia. Zdecydowanie za tym przemawia także fakt występowania bardzo wysokiego procentu nasion zaschniętych wśród nasion zawiązanych w późno kwitnących główkach (tab. 9).
Stwierdzony niższy stopień wiązania nasion przez starsze kwiaty koniczyny niż przez młode (tab. 10), nie świadczy wcale o pogarszaniu się warunków dla wrastania łagiewki pyłkowej czy procesów zapładniania w miarę upływu wieku kwiatu do chwili zwiędnięcia jego rurki korony. Bardziej prawdopodobną przyczyną tego zjawiska jest chyba to, że starszy kwiat koniczyny, w którym ustał już proces wydzielania nektaru, nie ma (w przeciwieństwie do młodego) szansy na wielokrotne odwiedziny przez owady, a więc i na dobre zapylenie. Za takim tłumaczeniem przemawiają też wyniki uzyskane dla lucerny (Jabłoński 1970), u której zarówno młody, jak i stary kwiat w jednakowym stopniu zawiązują nasiona, ale też kwiaty tej rośliny, niezależnie od wieku, mają w zasadzie tylko raz szansą na kontakt z ciałem zapylającego je owada.
Tendencję do nieco lepszego wykształcania nasion (większego ciężaru 1000 nasion) u koniczyny pokosu I niż II, można, zgodnie z tym co pisze Nüesch (1959), tłumaczyć bardziej sprzyjającymi warunkami pogody
strona 225w okresie ich wzrostu i dojrzewania, a przede wszystkim wyższą temperaturą (tab. 11 i ryc. 4).
Przebieg ilościowego kształtowania się plonu nasion koniczyny w miarę przekwitania łanu (ryc. 5) miał ogólnie podobny charakter do określonego przez Dennisa i Haasa (1967a) w Danii dla koniczyny jednokośnej. W porównaniu z tamtą formą, nasza koniczyna dwukośna nie ma tak długiej wstępnej i końcowej fazy kwitnienia, a dla normalnie pozostawionego na nasiona pokosu drugiego krócej też trwa u niej okres masowego kwitnienia, ważny dla produkcji nasion tej rośliny.
PODSUMOWANIE I WNIOSKI
Przeprowadzone badania pozwoliły zgłębić wiedzę o niektórych szczegółach biologii kwitnienia, nektarowania, zapylania i plonowania koniczyny czerwonej, we wzajemnym ich dynamicznym związku, na tle przebiegu ważniejszych czynników pogody w okresie kwitnienia i dojrzewania nasion.
Uzyskane wyniki potwierdziły między innymi obserwacje praktyków i badania licznych naukowców, że ciepła słoneczna pogoda w okresie kwitnienia i dojrzewania nasion, przy dostatku wilgoci w glebie, wpływa korzystnie na plonowanie nasiennej koniczyny czerwonej.
Kwiaty z ostatniej i przedostatniej fazy kwitnienia koniczyny czerwonej (pokosu drugiego), zawiązują nasiona słabiej niż kwiaty kwitnące wcześniej, mimo licznego nawet oblotu przez owady zapylające, a ponadto dają znacznie wyższy procent pośladu. Wiąże się to ze stopniowym obniżaniem się temperatury pod koniec lata.
Do zwiększenia plonów nasion koniczyny czerwonej mogłoby się prawdopodobnie przyczynić przesunięcie okresu jej kwitnienia na wcześniejszą porę, przez stosowanie koszenia pierwszego odrostu nie w początku pełni kwitnienia, lecz w momencie rozkwitania pierwszych główek.
W przyszłej pracy należałoby zbadać zdolność zawiązywania nasion przez koniczynę czerwoną przy maksymalnym jej zapylaniu oraz określić zagęszczenie owadów pszczołowatych na jednostce powierzchni, potrzebne do należytego zapylenia wszystkich wytwarzanych przez tę roślinę kwiatów.
LITERATURA
Akerberg E., Stapel Ch. (1964) — A survey of pollination and seed growing of red clover in Europa. 2nd Internat. Symp. on Pollinat., s. 1—25.
Bawolski S. (1961) — Wpływ terminu koszenia pierwszego pokosu na plon nasion koniczyny czerwonej. Pam. Puł., 1: 169—180.
strona 226Čumakov V., Husarowa M. (1964) — Vyzkum kvitnutia opelovania a doopelovania detelinovin. Vyd. Slov. Akad. Vied. Bratislava, s. 11—129.
Demianowiczowa Z. (1957) — O oblatywaniu przez pszczoły dwu odmian koniczyny czerwonej. Pszczeln. Zesz. Nauk., 1(2) : 79—93.
Dennis B. A., Haas H. (1967a) — Pollination and seed-setting in diploid and tetraploid red clover (Trifolium pratense L.) under danisch conditions. I. Royal Vet. and Agr. College. Copenhagen, Denmark, s. 93—117.
Dennis B. A., Haas H. (1967b) — Pollination and seed-setting in diploid and tetraploid red clover (Trifolium pratense L.) under danish conditions. II. Royal Vet. and Agr. College. Copenhagen, Denmark, s. 118—133.
Dylewska M. i inni (1970) — Badania nad metodami określania liczebności owadów zapylających na plantacjach lucerny nasiennej. Wiad. Ekol., 16(3) : 231—245.
Góral S. (1965) — Wpływ niektórych czynników na zapylanie i osadzanie nasion u di- i tetraploidalnej koniczyny czerwonej. Post. Nauk. Roln., 6(96) : 21—30.
Góral S. (1968) — Wpływ nektarowania i oblotu owadów na osadzanie nasion u di- i tetraploidalnej koniczyny czerwonej (Trifolium pratense L.). Cz. I. Nektarowanie. Roczn. Nauk. Roln., t. 94—A—3: 457—473.
Góral S. (1969) — Wpływ nektarowania i oblotu owadów na osadzanie nasion u di- i tetraploidalnej koniczyny czerwonej. (Trifolium pratense L.). Cz. II. Zapylanie i osadzanie nasion. Roczn. Nauk. Roln., t. 95—A—1: 113—137.
Hawkins R.P. (1965) — Factors affecting the yield of seed produced by different variaties of red clover. J. agric. Sci., Camb., 65(2) : 245—253.
Honczarenko J. (1965) — Trzmiele (Bombus Latr.) zapylające koniczynę czerwoną (Trifolium pratense L.) w okolicach Szczecina. Soc. Scient. Stetinensis, s. 1—64.
Jabłoński B. (1962) — Próba oceny nektarowania koniczyny czerwonej przy selekcji nowych odmian. Pszczeln. Zesz. Nauk., 6(2) : 81—90.
Jabłoński B. (1970) — Badania biologii kwitnienia i zapylania lucerny mieszańcowej (Medicago media Pers.). Pszczeln. Zesz. Nauk., 14(1-2-3) : 1—74.
Jelinowska A. (1968) — Ważniejsze zagadnienia agrotechniczne i hodowlane w nasiennictwie koniczyny czerwonej. Biul. Branż. Hod. Rośl. i Nas., 5 : 4—16.
Lampeter W., Krusche M. (1966) — Arbeitsleistung der Honigbiene und der Hummelarten beim Beflug von Luzerne und Rotklee. Mat. 4 Symp. Łąk., Lipsk, s. 363—376.
Łączyńska-Hulewicz T. (1958) — Badania nad samopłodnością koniczyny czerwonej di- i tetraploidalnej. Rocz. Nauk. Roln., t. 79-A-1: 151—158.
Mielniczenko A. N. (1964) — Uprawlenie cwietieniem klewiera w celiach ułuczszenia jego cwietow i powyszenia urożajnosti siemian. Ucz. Zap. Gork. Uniw., 25: : 3—12.
Nüesch E. (1959) — Untersuchungen über einige Faktoren die den Samenertrag beim Rotklee beeinflussen. Mitt. Schweiz. Landwirt., 7(6) : 83—90.
Paatela J. (1962) — Charakteristics of some diploid and tetraploid varieties of the late red clover (Trifolium pratense V. subnudum subv. serotinum). Acta Agraria Fennica, 99,4 : 1—31.
Ponomariewa E. G. (1960) — Srawnitielnoje izuczenie razlicznych prijomow priwleczenia pczeł na opylenie krasnogo klewiera. Opylenie sielskochoz. rast. pczełami. Moskwa, s. 295—305.
Ruszkowski A., Biliński M. (1968) — Oblot koniczyny czerwonej przez trzmiele. Pam. Puł., 31 : 201—220.
strona 227Seiffert M., Skirde W. (1959) — Untersuchungen über die Rotklees im Samenbau. Ztschr. f. Acker — u. Pfl. Bau, 108(1—2) : 253—271.
Skirde W. (1960) — Temperatur und Rotkleeblüte. Grünland, 9(12) : 80—84.
Skirde W. (1966) — Grundlagen der Samenertragsbildung bei Rotklee. Ztschr. f. Acker. u.Pfl. Bau, 124(1) : 59—71.
Smaragdowa N. P. (1969) — Klewier i pczeły w nieczernoziemnoj połosie. Izd. Mosk. Uniw., s. 1—120.
Sokołowska B. P. (1960) — O wysokich urożajach krasnogo klewiera i biołogiczeskich osobiennostiach opylenia jego cwietkow. Opylenie sielskochoz. rast. pczełami. Moskwa, s. 259—275.
Staszewski Z., Jakubowska B. (1971) — Wybrane zagadnienia z biologii koniczyn — przegląd piśmiennictwa. Biul. IHAR, 1—2 : 57—63.
Švec J. (1968) — Prispievok k vyskumu sekrecie nektaru dateliny lucnej (Trifolium pratense L.). Vedecke prace Vyzk. Ust. Vcel. v Dole, s. 101—139.
ИССЛЕДОВАНИЕ ПО ЦВЕТЕНИЮ И ОПЫЛЕНИЮ КРАСНОГО КЛЕВЕРА
Б. Яблоньски
Исследования проводились в 1969—1971 гг в Отделе пчеловодства Института садоводства в Пулавах. Двухкосную форму клевера (сорт грушевский) культивировали на легкой подзолистной почве. Агротехнические приёмы не разнились от общепринятых. Однако, хотя в Польше оставляют на семена только второй укос, исследования охватывали также период первого укоса.
Исследованию подвергнуло разные подробности биологии цветения, нектаровыделения, опыления и урожайности красного клевера и динамическую взаимосвязь этих моментов на фоне некоторых факторов погоды в периоде цветения и дозревания культуры.
Подтверждено результаты наблюдений практиков и исследований многих авторов, что тёплая, солнечная погода в периоде цветения и созревания семян, при исходии достаточной влажности почвы благоприявствует урожайности семян клевера.
Между прочим было установлено, что цветки последней и предпоследней фазы цветения клевера второго укоса, несмотря на достаточное число посещений насекомых, слабее завязывают семена, а кроме того дают более высокий процент недоразвитых семян. Это является последствием постепенного понижения температуры в конце лета.
Должно быт перенесение второго цветения красного клевера на более раннее время, при помощи ускорения срока первого кошения плантации, содействовало бы это увеличению урожая семян.
INVESTIGATIONS ON BIOLOGY OF BLOOMING AND POLLINATION OF RED CLOVER (TRIFOLIUM PRATENSE L.).
Bolesław Jablonski
Summary
Investigations were carried out from 1969 to 1971 in Bee Department at Pulawy. Red clover yielding two crops of hay a year (variety Hruszowska) were cultivated on the light podsolic soil. Agricultural conditions were similar to those used in wide practice. Even that for seeds crop Poland is left usually only second regrowth was taken under the consideration.
strona 228Different details from biology of blooming of red clover were investigated such as nectar secretion, pollinating and seeds setting in their mutual dynamic connection with weather conditions during blooming and ripening of seeds.
The results of many scientific workers as well as observations of seed growers were proved that warm and sunny weather during blooming and ripening of seeds with sufficient amount of moisture has great influence on red clover seed crop.
It has been stated among the others that flowers of red clover from the last and the one before last phase of blooming of second cut even after numerous visiting by insects had worse seeds setting and gave more undeveloped seeds. It is due to gradual temperature drop by the end of summer.
To increase crop of red clover seeds it could be probably necessery to bring forward period of its blooming to earlier period by means of earlier of the first regrowth.
Errata — błędy druku znalezione podczas digitalizacji
- s. 203: „śieżo” → świeżo
- s. 205, ryc. 1: „jednogodzinych” → jednogodzinnych
- s. 205, ryc. 1: „countnig” → counting
- s. 206, ryc. 2: „Srednia” → Średnia
- s. 208: „stopniu do warunków” → stopniu od warunków
- s. 211: „intensywnej niż w drugiej” → intensywniej niż w drugiej
- s. 214, ryc. 4: „Dyamics” → Dynamics
- s. 215: „koniczny” → koniczyny
- s. 215, ryc. 4, pod wykresami pokosu II: „pokos I. cut” → pokos II. cut
- s. 217, tab. 9: „phasa” → phase
- s. 217, tab. 9: „hummidity” → humidity
- s. 218: „z tab. 8, z danymi meteorologicznymi” → z tab. 9
- s. 218: „faz okresu kwitnienia (tab. 8)” → (tab. 9)
- s. 219, tab. 10: „rippening” → ripening
- s. 219, tab. 10: „hummidity” → humidity
- s. 220, tab. 11: „from the year od 1969″ → from the year of 1969
- s. 222: „zepewne” → zapewne
- s. 222: „Bawolski 1962″ → Bawolski 1961
- s. 223: „Mielniczenkę (1954)” → Mielniczenkę (1964)
- s. 224: „(tab. 8) 52—77%” → (tab. 9)
- s. 224: „w czasie zapylania (tab. 8)” → (tab. 9)
- s. 224: „późno kwitnących główkach (tab. 9)” → (tab. 10)
- s. 224: „niż przez młode (tab. 10)” → (tab. 11)
- s. 224: „szansą na kontakt” → szansę na kontakt
- s. 225: „(tab. 11 i ryc. 4)” → (tab. 12 i ryc. 4)
- s. 226, literatura: „danisch” → danish
- s. 226, literatura: „variaties” → varieties
- s. 226, literatura: „Charakteristics” → Characteristics
- s. 227, streszczenie: „благоприявствует” → благоприятствует
- s. 227, streszczenie: „Должно быт” → Должно быть
- s. 228, summary: „necessery” → necessary