

PRZEBIEG KOPULACJI U PSZCZÓŁ
tekst: Jerzy Woyke
Pszczelnicze Zeszyty Naukowe, Rok II, Nr 1, marzec 1958 — Jerzy Woyke
strona 1PSZCZELNICZE ZESZYTY NAUKOWE ROK II. NR 1 MARZEC 1958
Jerzy Woyke
Zakład Pszczelnictwa S. G. G. W., Skierniewice
WSTĘP
Kopulacja pszczół odbywa się w powietrzu, w dużej otwartej przestrzeni. Uniemożliwia to kontrolę doboru par rodzicielskich. Poznanie przebiegu kopulacji jest niezbędnym etapem do udoskonalenia techniki sztucznego unasieniania matek pszczelich, jako jedynej drogi właściwych prac hodowlanych.
Zagadnienie przebiegu kopulacji pszczół ma jeszcze bardzo wiele niewyjaśnionych momentów. Przypisać to należy w pierwszym rzędzie dwóm czynnikom:
- Parowanie odbywa się na zewnątrz ula, w powietrzu i jak przyjmuje większość autorów bardzo wysoko.
- Sam proces kopulacji przebiega tak szybko i trwa tak krótko, że prawie nic nie można zaobserwować, nawet w wypadku spostrzeżenia kopulującej pary.
Dotychczasowe nasze wiadomości o przebiegu kopulacji tworzą się z wniosków, opartych głównie na znajomości budowy i działania organów rozrodczych matki i trutnia i w mniejszym stopniu na wyglądzie matki, wracającej z lotu weselnego.
Dotychczas nie ma jednolitości poglądów prawie na żadną fazę przebiegu parowania.
Jeśli jeszcze dotychczas nie można dokładnie opisać poszczególnych faz kopulacji, to w pracy naszej staraliśmy się, przynajmniej na podstawie znajomości działania aparatu kopulacyjnego trutnia i śladów, jakie przynosi ze sobą matka wracająca z lotu weselnego, powiedzieć coś dokładniejszego o ostatniej fazie kopulacji. Staraliśmy się więc głównie dojść do wniosku, jak tworzy się t. zw. znak parowania, z którym matka wraca po kopulacji do ula.
W tym celu zbadaliśmy kilkaset matek wracających z lotu godowego, oraz staraliśmy się poznać dokładnie działanie aparatu kopulacyjnego trutnia. O ile możności chcieliśmy zbadać połączoną matkę z trutniem i trutnie bezpośrednio po kopulacji. Staraliśmy się również doprowadzić w sztuczny sposób do podobnego oddzielenia części aparatu kopulacyjnego trutnia jak zachodzi to w czasie kopulacji.
strona 2Wyniki niniejszej pracy dotyczące sposobu tworzenia się znaku parowania podano pierwszy raz do wiadomości na zebraniu pszczelarzy w Rogowie w dn. 27 stycznia 1954 r.
PRZEGLĄD LITERATURY
Pierwsze dokładniejsze badania nad biologią parowania pszczół przeprowadził Huber (1789 i 1791).
Do połowy ubiegłego wieku uważano, że matka znajduje się w czasie kopulacji nad trutniem, gdyż aparat kopulacyjny trutnia po wynicowaniu zgina się ku górze. Leucart (1867) opierając się na obserwacji Klipstein’a (1867) wyraził pogląd, że matka znajduje się pod trutniem, a wprowadzenie aparatu kopulacyjnego do odwłoka matki odbywa się jednocześnie z wynicowaniem.
Wolff (1876) podaje rysunek parki os w czasie kopulacji w pozycji litery S. Przypuszcza on, że podobnie dzieje się i u pszczół. Przebieg parowania w takiej pozycji dokładniej opisuje Spiller (1935). Shafer (1917) i Bishop (1920a i b) podają, że parowanie zachodzi „twarzą w twarz”.
Dotychczas nie ma zgodności poglądów co do pozycji parowania. Wszyscy poważniejsi autorzy zgadzają się, że w czasie parowania zachodzi wynicowanie aparatu kopulacyjnego trutnia. Nie ma jednak zgodności co do stopnia wynicowania. Wolff (1876), Michalis (1900), Bishop (1920a), Snodgrass (1925), Fyg (1952), Kuriennoj (1953) uważają, że w czasie parowania zachodzi całkowite wynicowanie. Natomiast Zander (1922, 1946), Arnhart (1936b, 1938), Is’hak Ogly (1939), Laidlaw (1944), Woyke (1955b, c) podają, że nasienie wydobywa się z aparatu kopulacyjnego przed jego całkowitym wynicowaniem.
Leuckart (1867, 1873), Stahala (1877), Bishop (1920b) podają, że rożki aparatu kopulacyjnego trutnia wchodzą do kieszeni kopulacyjnej matki, tymczasem Wolff (1876), Arnhart (1938) oraz autorzy ostatnich czasów: Laidlaw (1944), Fyg (1952), Kuriennoj (1953), Woyke (1955b, d) uważają, że rożki obejmują odwłok matki z zewnątrz.
Prawie do ostatnich czasów podawano za Leuckart’em (1860, 1867, 1873) i Zander’em (1922, 1946), że u płciowo dojrzałego trutnia, znajduje się w bulwie wypełniony nasieniem spermatofor, który następnie w czasie kopulacji zostaje przeniesiony do matki. Tymczasem Bishop (1920a) wykazał, że wypełnienie bulwy nasieniem następuje dopiero w chwili kopulacji. Potwierdza to Laidlaw (1944) i Woyke (1955b, c).
Początkowo uważano, za Leuckart’em (1873), że bulwa aparatu kopulacyjnego wchodzi w czasie kopulacji aż do pochwy matki, Bishop
strona 3(1920b) uważa, że do pochwy wchodzi jedynie koniec całkowicie wynicowanego aparatu, a bulwa pozostaje w komorze żądłowej. Autorzy, którzy przyjmują, że w czasie kopulacji nie zachodzi całkowite wynicowanie aparatu kopulacyjnego muszą przyjąć, że szyjka i niewynicowana bulwa tworzą koniec aparatu kopulacyjnego, który wchodzi do komory żądłowej lub komory kopulacyjnej.
Huber (1791) podał, że w czasie parowania następuje oderwanie bulwy aparatu kopulacyjnego trutnia i pozostawienie jej w otworze odwłoka matki. Dönhoff (1856) twierdzi, że matka uwalnia się od trutnia w powietrzu przez odgryzienie jego aparatu kopulacyjnego. Leuckart. (1867) uważa, że matka wielokrotnie odpycha nogami, zwisającego od tyłu trutnia. Powoduje to odcięcie przez chitynowe płytki wewnętrznej warstewki powłoki bulwy, w wyniku czego spermatofor z płytkami i z najbliższą warstwą oddziela się od aparatu kopulacyjnego trutnia i pozostaje w matce. Dzierżon (1853, 1856, 1861, 1877) uważa, że „podobnie jak pszczoła, która uwięzła na żądle, stara się uwolnić przez okrężne ruchy, tak i matka stara się uwolnić od trutnia przez ruch obrotowy.” Czyli uważa, że matka ukręca aparat kopulacyjny trutnia. Z tą ukręconą częścią aparatu matka wraca następnie do ula. Podobnie Bishop (1920a i b) podaje, że matka uwalnia się od trutnia przez ukręcenie części jego aparatu kopulacyjnego.
Obecnie jednak powszechnie uważa się za Arnhart’em (1938) Laidlaw’em (1944) i Kuriennoj’em (1953), że chitynowe płytki bulwy przebijają częściowo wynicowany aparat, lub następuje eksplozja częściowo wynicowanego aparatu, w wyniku czego zachodzi urwanie bulwy i niewynicowana bulwa pozostaje w matce. Przedni koniec bulwy urywa się w okolicy przejścia w kanał wytryskowy lub matka odgryza go (Laidlaw 1944).
Ostatnie prace Triasko (1957a, b), Woyke i Ruttner (1958) potwierdzają wyniki Woyke’go (1954), zgodnie z którymi w czasie kopulacji następuje wysunięcie części bulwy z wnętrza nierozerwanego aparatu kopulacyjnego.
W związku z wykrytą ostatnio przez Triasko (1951, 1956) Taber’a (1954), Woyke’go (1955b, d, e, 1956a, b) wielokrotną kopulacją w czasie jednego lotu wyłoniły się nowe zagadnienia.
Triasko (1951) początkowo podała, że matka w czasie lotu weselnego kopuluje z trutniami do chwili całkowitego napełnienia jajowodów. Pomiary objętości jajowodów, czynione natychmiast po powrocie matek z lotu weselnego przez Woyke’go (1955b i d, 1956a i b), a następnie również przez Triasko (1956) wykazały, że bardzo często matka wraca z lotu weselnego przed całkowitym napełnieniem jajowodów. Woyke (1956a i b) wykazał, że mniejszą ilość razy kopulują matki z bardziej
strona 4rozwiniętymi jajnikami. Wg tegoż autora (1956) przyczyną zakończenia wielokrotnego parowania w czasie jednego lotu może być stosunkowo duża objętość razem wziętych jajników i napełnionych jajowodów, lub niemożność wyrzucenia w locie znaku parowania.
Triasko (1951, 1956) uważa, że każdy truteń pozostawia w matce swoją bulwę, którą wyrzuca następny truteń. Woyke (1955, b, d) początkowo uważał, że jedynie ostatni truteń pozostawia w matce część bulwy, potem (1956a i b) doszedł do wniosku, że i poprzednie trutnie mogą pozostawiać swoje znaki parowania, chociaż nie czynią tego wszystkie.
Woyke (1956 a i b) stwierdził, że wiele matek po wielokrotnej kopulacji w czasie jednego lotu, wraca do ula bez części bulwy trutnia. Matki te przeważnie miały bardziej napełnione jajowody, niż matki wracające z częścią bulwy trutnia.
Trutnie znalezione po kopulacji mają według Leuckart’a (1867, 1873) i Triasko (1951, 1955, 1957b) całkowicie wynicowane aparaty kopulacyjne, lecz aparaty te są pozbawione chitynowych płytek.
MATERIAŁ I METODA BADAŃ
Badania nad przebiegiem kopulacji pszczół przeprowadzaliśmy w Zakładzie Pszczelnictwa Szkoły Głównej Gospodarstwa Wiejskiego w Skierniewicach w latach 1952—1957. Do badań tych wykorzystano również materiały zebrane w latach 1948—1951 w Zakładzie Ochrony Lasu i Entomologii Uniwersytetu Poznańskiego oraz w Zakładzie Zoologii II tegoż Uniwersytetu.
Łącznie przeprowadziliśmy badania nad około 2-tysiącami trutni i około 800 matkami. Zaobserwowaliśmy 1812 lotów godowych matek, z których 386 było lotami weselnymi t. j. takimi, podczas których matki kopulowały.
Badania dotyczące anatomicznej i histologicznej budowy ścianki znaku parowania przeprowadziliśmy na 60 znakach utworzonych z części aparatu kopulacyjnego trutnia.
Celem zbadania działania organów rozrodczych trutnia uciskaliśmy tułów wylatujących z ula trutni. W wyniku tego następowało wynicowanie aparatu kopulacyjnego. Pośrednie stadia uzyskiwaliśmy przez ucisk odwłoka. Aparat kopulacyjny wraz z odwłokiem utrwalaliśmy w alkoholu. Ułożenie niewynicowanej części aparatu kopulacyjnego wewnątrz części wynicowanej badaliśmy po dokonaniu skalpelem przekroju przez zewnętrzną powłokę i odpreparowaniu jednej połowy aparatu. Po potraktowaniu takiego aparatu kopulacyjnego 0,0025% roztworem
strona 5czerwieni Kongo zabarwiał się na przekroju jedynie schitynizowany oskórek powłoki, co bardzo ułatwiało prześledzenie ułożenia przezroczystej powłoki aparatu kopulacyjnego. Preparaty te przedstawiono na rysunkach tak, jak gdyby zewnętrzna powłoka była zupełnie przeźroczysta. W czerwieni Kongo silnie barwiły się również te części schitynizowanego naskórka wewnętrznego, z których uprzednio zsunął się niezawierający chityny oskórek powierzchniowy.
Kontrolę lotów godowych matek przeprowadziliśmy przy pomocy korytarzyków, zaopatrzonych w kratę odgrodową, umieszczonych przed wylotkami ulików weselnych. Wracające z lotów godowych matki dokładnie oglądaliśmy, a następnie część ich utrwaliliśmy.
Zarówno matki jak i trutnie przeznaczone do badań mikroskopowych utrwalaliśmy w następujących utrwalaczach: Carnoy, Gilson i Bounin. Wypreparowane narządy zatapialiśmy w parafinie lub celoidynie. Skrawki barwiliśmy hematoksyliną Heidenhein’a, Mayer’a, Erlich’a, Dielafield’a oraz czerwienią Kongo, eozyną i metodą Azan-Heidenhein’a.
WYNIKI
Budowa organów rozrodczych trutnia. Anatomię organów rozrodczych trutnia opisano już wielokrotnie. (Swammerdam 1738, Leuckart 1873, Michaelis 1900, Bishop 1920a, Zander 1922, Snodgrass 1925, 1944, 1956, Arnhart 1936a i b, 1937 Laidlaw 1944 i inni).
Histologię organów rozrodczych opisał Kożewnikow (1891a i b), Bishop (1920a) i Woyke (w druku od 1953). Morison (1928) opisał umięśnienie, unerwienie i rozkład tchawek.
Obecnie opiszemy budowę organów rozrodczych trutnia jedynie o tyle, o ile jest to potrzebne do dalszego zrozumienia całości, oraz podamy własne osiągnięcia.
Organa rozrodcze trutnia (ryc. 1) składają się z dwóch jąder (T), w których wykształcają się w stadium poczwarki plemniki. Plemniki opuszczają jądra w pierwszych dniach po wyjściu trutnia z komórki, a same jądra bardzo się zmniejszają ulegając degeneracji. Spiralnie biegnące nasieniowody (Vd) przeprowadzają plemniki do pęcherzyków nasiennych (Vs), w których pozostają one aż do momentu kopulacji. Pęcherzyki nasienne są rozszerzonymi częściami nasieniowodów o silnie umięśnionych ściankach. Końcowa, nierozszerzona część nasieniowodów łączy pęcherzyki nasienne z tylnymi końcami dwóch dużych, silnie umięśnionych gruczołów śluzowych (Gm), które wytwarzają śluz. Tylne końce gruczołów łączą się z kanałem wytryskowym (De). Specjalna zastawka, znajdująca się w tylnych końcach gruczołów, umożliwia przedostanie
strona 6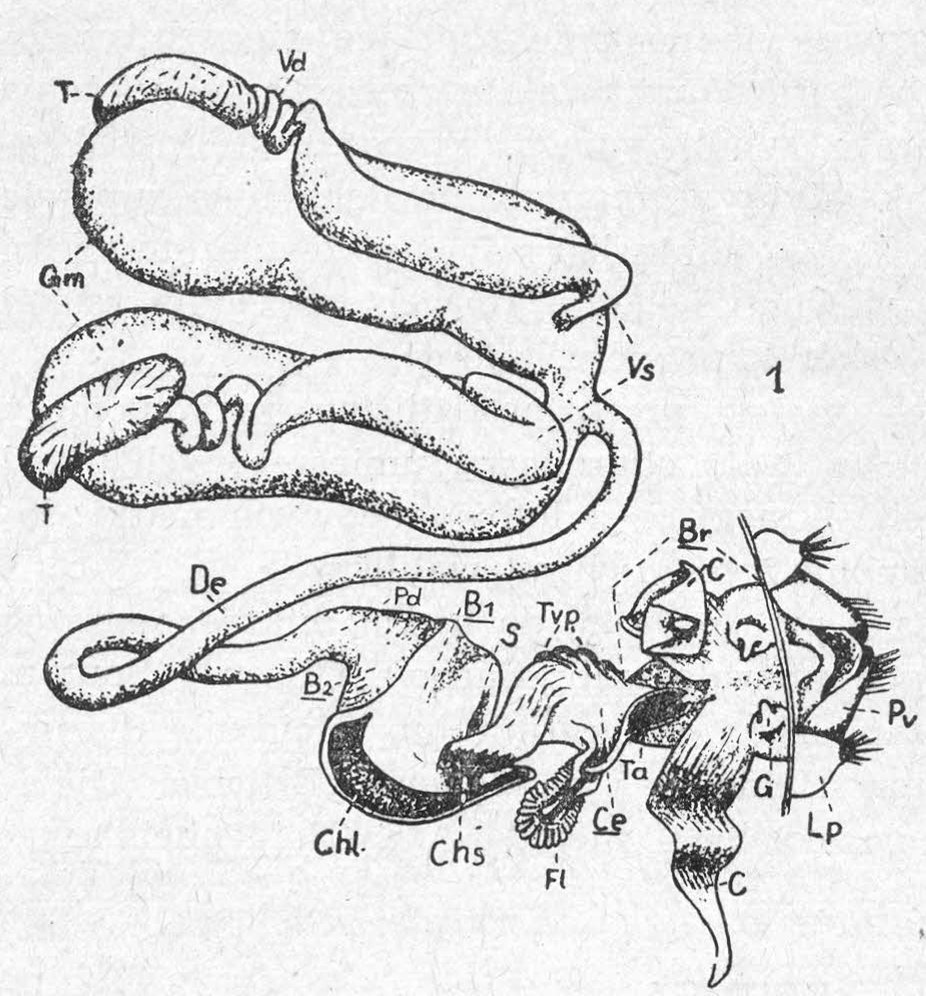
się plemników z pęcherzyków nasiennych, poprzez gruczoły, do kanału wytryskowego, bez mieszania się plemników ze śluzem gruczołów. Kanał wytryskowy nie jest umięśniony. Ścianki jego, zbudowane z nabłonka i schitynizowanego oskórka, bardzo grubieją w tylnym końcu (Pd), w miejscu połączenia kanału z aparatem kopulacyjnym. Aparatem kopulacyjnym zwiemy całą pozostałą część dróg rozrodczych znajdującą się między końcem kanału wytryskowego a otworem odwłoka. Aparat kopulacyjny dzieli się na trzy części: bulwę (B₁ i B₂), szyjkę (Ce) i mieszek, zwany ostatnio (Snodgrass 1956) przedsionkiem (Br). Cały aparat jest nie umięśniony. Ścianki jego składają się z nabłonka i przeźroczystego, schitynizowanego oskórka.
Bulwa, w przeciwieństwie do wielu opisów i rysunków, nie jest rozciągnięta, lecz jest silnie skurczona, gdyż w naturalnych warunkach do chwili kopulacji nie jest napełniona ani nasieniem, ani śluzem. Ścianki bulwy są tak silnie pofałdowane, że jedne części bulwy są wsunięte w drugie. Przednia część bulwy (B₂) ma cienkie ścianki, nie jest wzmocniona od wewnątrz żadnymi specjalnymi tworami i dlatego nazwaliśmy ją częścią cienkościenną. Tylna część bulwy (B₁) natomiast ma znacznie grubsze ściany, wzmocnione od wewnątrz warstwą wzmacniającą i dwiema parami tak zwanych płytek chitynowych. Pośrodku znajduje się para płytek podłużnych (Chr), zwróconych zaostrzonymi końcami ku tyłowi. Po bokach tych płytek znajduje się z każdej strony jedna
strona 7płytka szeroka (Chs). Tę partię bulwy nazwaliśmy częścią grubościenną.
Brzuszna ścianka tylnego końca bulwy zbliża się do chitynowych płytek, przesuwając otwór bulwy pod tylne końce płytek (przedstawiono to na podłużnym przekroju częściowo wynicowanego aparatu, ryc. 8, Ob). Na tylnej ściance bulwy znajduje się wybrzuszenie t. zw. woreczek (S). Woreczek jest normalnie przed kopulacją wklęśnięty do środka bulwy (ryc. 1. S), a nie wypukły, jak to podaje większość opisów i rysunków. Podobnie ścianki cienkościennej części bulwy są zaklęśnięte do wnętrza części grubościennej. Dzięki temu cała bulwa nie zajmuje zbyt wiele miejsca w ciele trutnia.
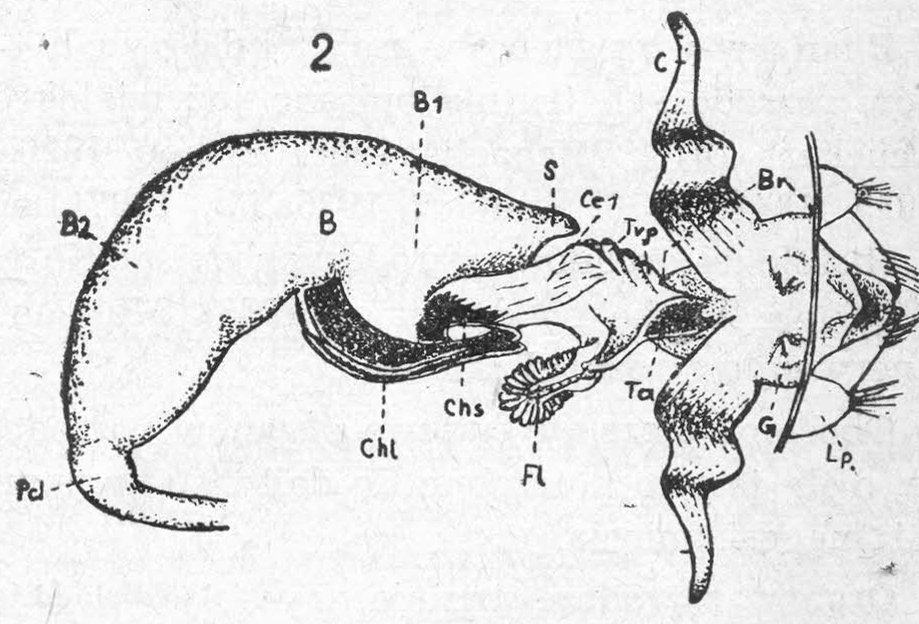
Dopiero po odpowiednim podrażnieniu trutnia, i to najczęściej w czasie wynicowywania aparatu, następuje napełnienie bulwy (ryc. 2, B) spermą i śluzem. Bulwa zwiększa wtedy znacznie swe rozmiary, a woreczek (ryc. 2, S) uwypukla się na zewnątrz.
Ścianki aparatu przy tylnym końcu bulwy są podgięte pod dwie szerokie płytki chitynowe, tworząc z każdej strony bulwy pod jednym podłużnym fałdzie (ryc. 2, Ce 1). Fałdy te przechodzą w środkową część aparatu t. zw. szyjkę (ryc. 1, Ce). Szyjka jest bardzo silnie bocznie spłaszczona. Na jednym brzegu szyjki mieści się wyrostek pierzasty (Fl), a na drugim 4—7 poprzecznych fałdów (Tvp). Ponieważ cała szyjka jest skręcona względem podłużnej osi aparatu o 90°, więc niektórzy nazywają brzeg z fałdami gdzie to skręcenie najwyraźniej widać, częścią spiralną. Brzeg ten jest stosunkowo mało spłaszczony. Nadzwyczaj silnie natomiast jest spłaszczony odcinek przeciwległego brzegu, zwarty między nasadą wyrostka pierzastego a polem trójkątnym.
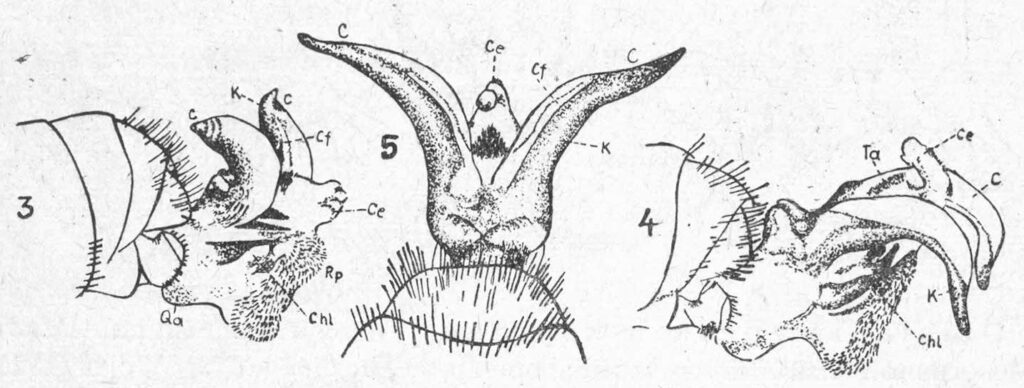
Trzecią część aparatu kopulacyjnego tworzy mieszek, czyli przedsionek (Br). Na grzbietowej ściance przedsionka znajduje się pole trójkątne (Ta), pokryte od wewnątrz przedsionka włoskami. Z górnych brzegów przedsionka odchodzą na boki dwa duże rożki (C), a jeszcze bardziej z tyłu znajdują się na ściance grzbietowej dwa małe garbki (G). Na ściance brzusznej przedsionka znajduje się pole prąciowe, czyli tarczowe
strona 8(ryc. 3, Rp) pokryte długimi włoskami, skierowanymi do wnętrza przedsionka. Zupełnie z tyłu, przy samym pancerzu, znajduje się pole kolczaste (ryc. 3, Qa) pokryte drobnymi kolcami, skierowanymi również do wnętrza przedsionka.
Otwór aparatu kopulacyjnego zamyka od zewnątrz 6 płytek, z góry tergit a z dołu sternit, oraz z boków para płytek parameralnych (ryc. 1, Lp) i para płytek walwalnych (Pv).
Działanie aparatu kopulacyjnego trutnia. Działanie organów rozrodczych trutnia opisują Leuckart (1873), Wolff (1876), Michaelis (1900), Bishop (1920a), Zander (1922), Arnhart (1936a i b), Snodgrass (1925, 1956), Fyg (1952), Woyke (1955b i c) i inni.
Dotychczasowe opisy podają mniej lub więcej dokładnie przebieg pierwszego stadium wynicowywania aparatu kopulacyjnego oraz wygląd już całkowicie wynicowanego aparatu. Brak natomiast opisu zmian, jakim ulega aparat kopulacyjny w ciągu całego procesu wynicowywania.
Poniższy opis dotyczy głównie przebiegu wynicowania aparatu kopulacyjnego trutnia, pobudzonego w sztuczny sposób do wynicowania.
Stwierdziliśmy zgodnie z Bishop’em (1920a) a w przeciwieństwie do wielu innych opisów, że sperma trutnia znajduje się do chwili kopulacji w pęcherzykach nasiennych, a śluz w gruczołach śluzowych. Bulwa aparatu kopulacyjnego przed kopulacją przedstawia się jak na ryc. 1, B₁ i B₂. Ścianki bulwy są skurczone i jedne jej części są powsuwane w drugie, a woreczek bulwy (S) jest wklęśnięty do jej środka.
Dopiero po odpowiednim podrażnieniu trutnia, np. przez ucisk tułowia lub przez wyłączenie centralnego systemu nerwowego przez odcięcie głowy, następuje u wielu trutni napełnienie bulwy. Najpierw kurczą się mięśnie pęcherzyków nasiennych (ryc. 1, Vs) wypychając spermę poprzez gruczoły śluzowe (Gm) do kanału wytryskowego (De) i dalej do bulwy (B₁ i B₂). Potem kurczą się mięśnie gruczołów śluzowych,
strona 9które wypychają do kanału wytryskowego i bulwy najpierw śluz a potem zrywają prawie cały nabłonek gruczołowy, wypychając go również do kanału wytryskowego. Nabłonek ten pcha przed sobą śluz, a ten z kolei spermę. W wyniku tego następuje całkowite napełnienie bulwy (ryc. 2, B). Woreczek uwypukla się na zewnątrz (S), a pozostałe ścianki rozprostowywują się i rozciągają się. Szczególnie silnie rozciąga się cienkościenna część bulwy (B₂). Spermę zmieszaną z płynem, znajdującym się uprzednio w bulwie, nazywamy nasieniem. Nasienie znajduje się obecnie wewnątrz bulwy w woreczku i w jej tylnej części. Śluz znajduje się bardziej z przodu, zerwany zaś z gruczołów nabłonek zajmuje przedni koniec bulwy i kanał wytryskowy.
W warunkach naturalnych bulwa napełnia się najprawdopodobniej dopiero w chwili kopulacji. Potwierdzają to obserwacje bardzo pobudliwych trutni, u których bulwa napełnia się dopiero w czasie wynicowywania aparatu.
Ponieważ aparat kopulacyjny nie posiada własnych mięśni, zostaje więc wypchnięty na zewnątrz odwłoka na skutek skurczu mięśni szkieletowych zmniejszających odwłok. Powoduje to zmniejszenie odwłoka i wzrost ciśnienia hemolimfy, które bezpośrednio wypycha aparat na zewnątrz.
Aparat w czasie wypychania wynicowuje się i dlatego te powierzchnie i pola, które przed wynicowaniem były wewnątrz, znajdują się po wynicowaniu na zewnątrz aparatu.
Najpierw rozchylają się płytki parameralne (Lp) i walwalne (Pv), potem wynicowuje się brzuszna ścianka przedsionka aparatu, (Snodgrass 1925 ryc. 93, D), na której znajduje się owłosione pole tarczowe
(ryc. 3, Rp). Na ściance grzbietowej ukazują się dwa małe garbki. Po dalszym wynicowaniu przedsionka wynicowują się z górnych, bocznych krawędzi dwa różki (ryc. 3, C), których końce zwracają się do góry
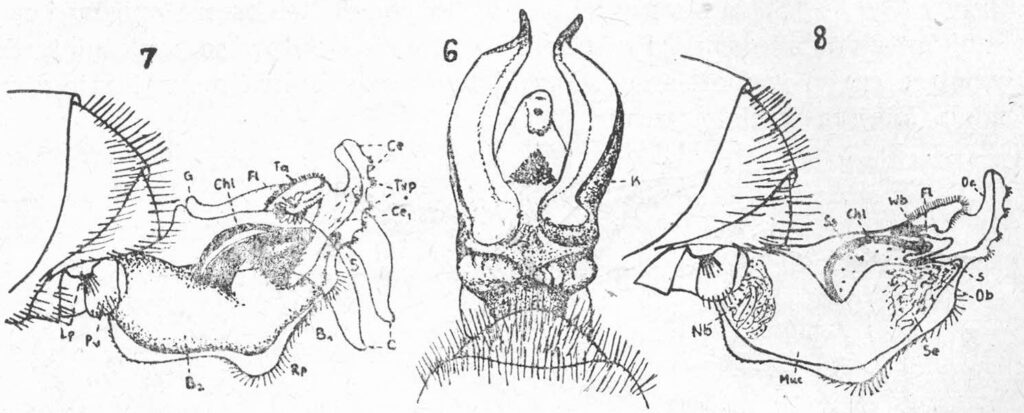
strona 10(ryc. 3) i na boki (ryc. 5). Do wnętrza wynicowanego przedsionka wsuwa się szyjka oraz bulwa, której chitynowe płytki przeświecają przez ścianki przedsionka (ryc. 3, Chl). Bulwa leży wewnątrz przedsionka tak, jak leżała w ciele trutnia, t. zn. ścianka bulwy z chitynowymi płytkami leży po lewej stronie ciała. Na grzbietowej ściance zaczyna wynicowywać się pole trójkątne oraz dolny brzeg szyjki (Ce), na którym znajdują się poprzeczne fałdy. Jednocześnie kleista warstwa, która pokrywa ściankę grzbietową i zewnętrzną oraz końce różków (ryc. 3 i 5, K), pęka na środkowej ściance podłużną szczeliną (ryc. 3 i 5, Cf). Mechanizm działania rożków pierwszy opisał Woyke (1955b i c). W wyniku wzrostu ciśnienia wewnątrz aparatu powstała na rożkach szczelina powiększa się do tego stopnia, że cała kleista warstwa przesuwa się na boczne, zewnętrzne ścianki rożków (ryc. 4 i 6, K). Obecnie więc ścianka grzbietowa i część bocznej zewnętrznej ścianki jest cieńsza i może rozciągać się bardziej niż pozostałe ścianki. W wyniku tego rożki wyginają się ku dołowi (ryc. 4), a ich końce zbliżają się ku sobie (ryc. 6). W czasie tego procesu rożki wykonują ruchy i przyjmują kształt jakby wygiętych obcęgów, obejmujących jakieś ciało (ryc. 6). Jednocześnie z wyginaniem rożków wynicowuje się prawie całe pole trójkątne (ryc. 4 Ta) oraz dolny brzeg szyjki zaopatrzony w 4—7 poprzecznych fałdów (ryc. 7 Tvp) pokrytych włoskami. Pozostała część bardzo silnie spłaszczonej szyjki nie wynicowuje się. Bulwa wsuwa się wewnątrz przedsionka jeszcze dalej do tyłu. U wielu trutni bulwa przekręca się wzdłuż swej podłużnej osi w ten sposób, że ścianka z chitynowymi płytkami obraca się częściowo ku dołowi (ryc. 4, Chl) i wchodzi we wgłębienie utworzone przez pole tarczowe. Aparat kopulacyjny wielu trutni przestaje się w tym stadium wynicowywać. Tak wynicowany aparat kopulacyjny nazywamy częściowo wynicowanym.
U innych jednak trutni bulwa wsuwa się pod wpływem zwiększonego ciśnienia jeszcze bardziej do tyłu przedsionka i jednocześnie przekręca się znowu wzdłuż swej podłużnej osi. Obecnie jednak ścianka, na której znajdują się chitynowe płytki, przekręca się z położenia boczno-brzusznego o około 135° lub z bocznego o 90° tak, że chitynowe płytki przemieszczają się na stronę grzbietową (ryc. 7, Chl).
Podłużne fałdy szyjki (ryc. 7, Ce1), odchodzące od każdej szerokiej płytki, obejmują z każdej strony tylną część bulwy, przykrywając prawie zupełnie wysunięty do tyłu woreczek (ryc. 7, S).
Wyrostek pierzasty (ryc. 7, Fl) znajdujący się na grzbietowej ściance szyjki mieści się obecnie pod polem trójkątnym i swą pofałdowaną stroną przykrywa od góry końce chitynowych płytek.
Na ryc. 7 jak i na ryc. 8 widać, że od bulwy odchodzi ku tyłowi na zewnątrz duży kanał. W rzeczywistości jest to bardzo silnie spłaszczona
strona 11część szyjki. Na zewnątrz otwiera się ona długą, wąską szczeliną, ciągnącą się od tylnego wierzchołka pola trójkątnego, poprzez wgłębienie, do końca wynicowanego brzegu szyjki (ryc. 8, Oc). Szczelina ta jest tak wąska i brzegi jej tak ściśle do siebie przylegają, że patrząc na aparat od zewnątrz trudno ją zauważyć.
Na przekroju przez aparat (ryc. 8) widać, dlaczego w tym stadium wynicowania nasienie nie wypływa z bulwy na zewnątrz. Otwór bulwy nie mieści się na jej tylnym końcu. Właściwy otwór bulwy w postaci szczeliny (ryc. 8, Ob) znajduje się między fałdami powłoki, na ściance grzbietowej, pod ostrymi końcami chitynowych płytek, u podstawy woreczka. Szczelina ta jest częściowo zakryta przez wystający ku tyłowi brzeg substancji spajającej (ryc. 8, Ss).
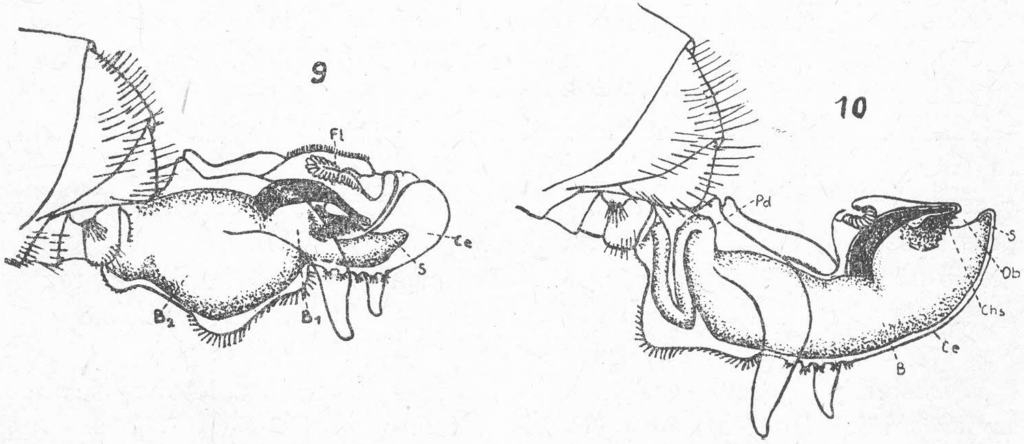
Najtrudniej wynicowuje się spłaszczona część szyjki. Do jej wynicowania potrzeba największego ciśnienia. W tym stadium wynicowania rożki są najbardziej wygięte i najbardziej sprężyste. Obecnie trzymałyby jakieś ciało z dużą siłą. W czasie wynicowania szyjki pęka obecna zewnętrzna warstewka jej powłoki. Pęknięcia te tworzą z każdej strony szyjki jedną lub kilka podłużnych szczelin, przebiegających przez owłosioną część szyjki (ryc. 12, Rc). W tak rozciągającą i jednocześnie dalej wynicowującą się szyjkę (ryc. 9, Ce) wchodzi woreczek i końce chitynowych płytek bulwy.
Pomimo, że wynicowała się część szyjki, na której znajduje się wyrostek pierzasty, to ten ostatni jednak nie wynicowuje się jeszcze (ryc. 9, Fl). W czasie dalszego wynicowania aparatu wynicowują się podłużne fałdy szyjki, odchodzące od szerokich płytek chitynowych. Fałdy te tworzą obecnie tylne części wynicowanego aparatu. Po przejściu grubościennej części bulwy przez spłaszczoną część szyjki, cała bulwa posuwa się wewnątrz wynicowującego się aparatu bardzo szybko do tyłu. W rezultacie ostre końce chitynowych płytek znajdują się wkrótce na końcu wynicowanego aparatu (ryc. 10). Ponieważ boczne fałdy, odchodzące od szerokich płytek chitynowych, prawie całkowicie już się wynicowały, a same płytki szerokie nie były do nich przyrośnięte, końce tych płytek sterczą więc obecnie wolno do tyłu (ryc. 10, Chs). Natomiast obydwa ostre końce podłużnych płytek chitynowych są objęte przez fałdy i dwa odpowiednie wybrzuszenia grzbietowej ścianki powłoki bulwy. Widać to dobrze na ryc. 8, Wb i na ryc. 13A, Wb, przedstawiającej dalsze stadium wynicowania. Wybrzuszenia te nie pozwalają płytkom chitynowym wysunąć się z aparatu, lecz stwarzają dla płytek punkt oparcia, wokół którego będą one obracać się podczas dalszego wynicowywania się aparatu.
Po całkowitym wynicowaniu się szyjki i uwolnieniu tych zaostrzonych końców płytek szerokich, wynicowuje się podstawa grzbietowej
strona 12ścianki woreczka. Powoduje to bardzo znaczne rozszerzenie, uprzednio szczelinowatego, otworu bulwy (ryc. 10, Ob). W rezultacie zaczyna wypływać z wnętrza bulwy nasienie, wypychane stamtąd przez śluz. Napełniona bulwa zajmuje jeszcze prawie całe wnętrze wynicowanego aparatu (ryc. 10, B).
Cienkie ścianki bulwy wynicowują się szybciej i łatwiej, niż napotykająca na znaczny opór ścianka grzbietowa z tkwiącymi w niej płytkami chitynowymi. W wyniku tego wynicowuje się najpierw woreczek (ryc. 11, S), a chitynowe płytki ustawiają się wewnątrz aparatu bardziej prostopadle względem jego podłużnej osi.
Nasienie i śluz, znajdujące się wewnątrz bulwy, nie napotykają już po wynicowaniu się woreczka na żaden opór i mogą z łatwością wydobywać się na zewnątrz (ryc. 12, Se). Zawartość bulwy jest wypychana do tyłu na zewnątrz przez siłę działającą od wewnątrz i od zewnątrz bulwy. Od wewnątrz działa siła skurczu mięśni gruczołów śluzowych. Kurczące się mięśnie gruczołów wywierają, w sposób uprzednio opisany, nacisk na zerwany nabłonek gruczołowy, który pcha przed sobą śluz. Śluz z kolei wypycha nasienie. Od zewnątrz działa na bulwę sprężystość jej rozciągniętej powłoki oraz ciśnienie hemolimfy, która znajduje się między wynicowaną a niewynicowaną częścią aparatu.
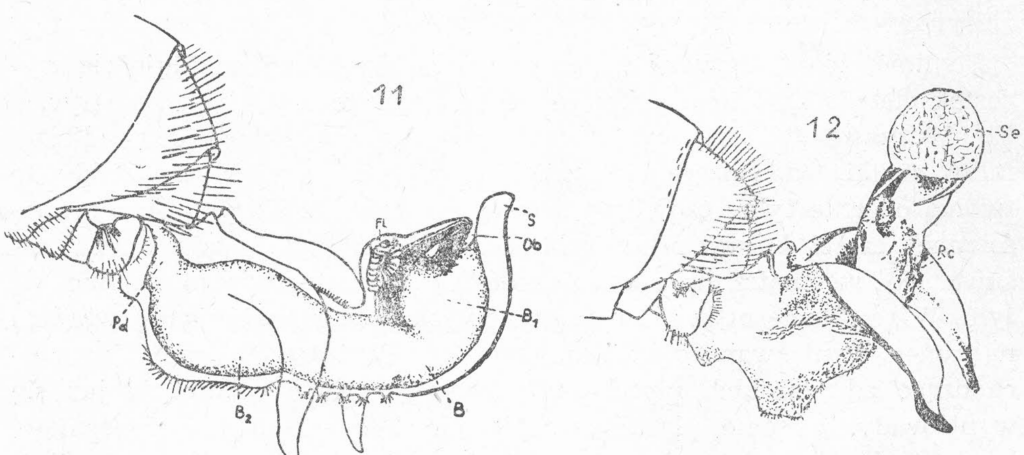
W wyniku działania tych sił oraz swobodnego ujścia na zewnątrz, zawartość bulwy raptownie wytryskuje z aparatu. Bulwa natomiast bardzo gwałtownie kurczy się (ryc, 13 B₁ i B₂). Jedynie tylna grubościenna część bulwy, zaopatrzona w chitynowe płytki i wzmocniona po bokach grubą warstwą wzmacniającą, nie może się kurczyć. Duże ciśnienie hemolimfy, panujące wewnątrz części wynicowanej powoduje, iż ścianka bulwy naprzeciw chitynowych płytek, nieusztywniona grubą warstwą wzmacniającą, zapada się stopniowo, w miarę opróżniania bulwy, do jej wnętrza (ryc. 13A, B₁).
strona 13Po przejściu bulwy przez szyjkę zmniejsza się ciśnienie hemolimfy, panujące w przedsionku, które początkowo było bardzo duże. W rezultacie różki zwalniają swój ucisk i nieco rozginają się. Po znacznym opróżnieniu bulwy i bardzo silnym jej skurczeniu powstaje wewnątrz
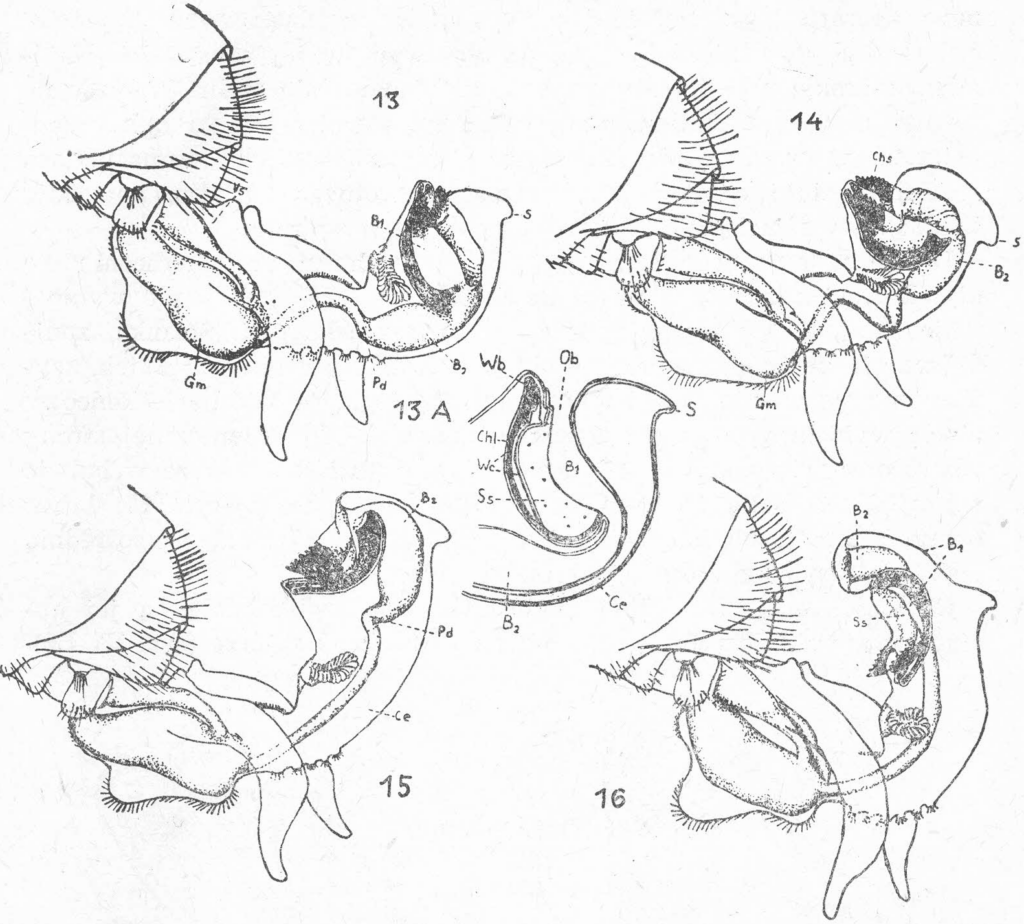
wynicowanej części aparatu dużo wolnej przestrzeni. Gruczoły śluzowe (ryc. 13, Gm) wraz z jednym lub dwoma pęcherzykami nasiennymi (Vs) wypadają więc u wielu trutni z odwłoka do wnętrza przedsionka.
W czasie dalszego wynicowywania aparatu chitynowe płytki bulwy ustawiają się poprzecznie do podłużnej osi aparatu (ryc. 14). Powłoka, która okrywała szerokie płytki, zsuwa się z nich i płytki te, w dużej części, sterczą wolno na zewnątrz aparatu (ryc. 14, Chs). Płytki podłużne są natomiast w dalszym ciągu całe okryte powłoką aparatu. Szerokie końce tych płytek obecnie zupełnie zamykają od przodu światło bulwy. Następuje więc przerwa w dopływie śluzu od przodu. Cienka
strona 14ścianka bulwy, naprzeciw chitynowych płytek zapada się więc jeszcze bardziej do wnętrza bulwy, między jej boczne wzmocnione ścianki.
Podczas dalszego wynicowywania aparatu grubościenna część bulwy wynicowuje się jeszcze bardziej, tak, że w końcu szerokie końce podłużnych płytek chitynowych znajdują się na tylnym końcu wynicowanego aparatu (ryc. 15). Końce te w dalszym ciągu zwężają jeszcze światło bulwy, utrudniając tym samym wypływ jej zawartości. Natomiast szerokie płytki chitynowe są już prawie całe wolne stercząc na zewnątrz. W tym stadium wynicowują się również ścianki bulwy zaopatrzone w warstwę wzmacniającą. Ponieważ warstwa wzmacniająca jest sprężysta i dąży do zachowania pierwotnego kształtu, powoduje to dodatkowe zaciskanie końca wynicowanego aparatu.
Dalsze wynicowanie aparatu (ryc. 16) zachodzi po odwróceniu się płytek znowu łatwo i szybko. Cienkościenna część bulwy nie wynicowuje się jednak równomiernie na całej swej długości. Ścianka, znajdująca się bezpośrednio za szerokimi końcami podłużnych płytek, wynicowuje się wolniej, niż ścianka naprzeciwległa. W rezultacie końcowy otwór wynicowującego się aparatu zwraca się do wewnętrznej strony odwróconych płytek (ryc. 17) i tu wypływa pozostała jeszcze w bulwie zawartość. Opisane tu stadium wynicowania aparatu (ryc. 17) łatwo pomylić przy niedość dokładnym zbadaniu ze stadium bezpośrednio poprzedzającym odwrócenie się płytek (ryc. 14).
Cienkościenna część bulwy wynicowuje się szybko dalej, a jej koniec zwraca się do tyłu i unosi się z nad płytek ku górze (ryc. 18, B₂).
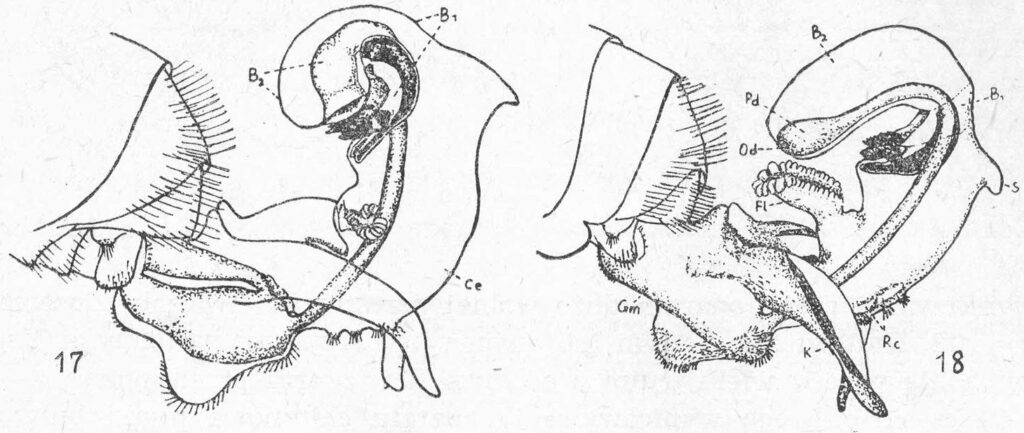
Wynicowanie aparatu ustaje dopiero wtedy, gdy wynicuje się cała bulwa, a na końcu wynicowanego aparatu znajdzie się pogrubiona ścianka końca kanału wytryskowego (ryc. 18, Pd).
Wyrostek pierzasty zaczyna wynicowywać się dopiero po całkowitym wynicowaniu się bulwy (ryc. 18, Fl). Wynika z tego, że do jego wynicowania jest potrzebne duże ciśnienie. Wynicowujący się wyrostek pierzasty
strona 15najpierw jest zwrócony ku tyłowi. Potem, w miarę wynicowywania się poprzecznych fałdów, wydłuża się jego obecna tylna ścianka, a cały wyrostek pierzasty zwraca się ku przodowi.
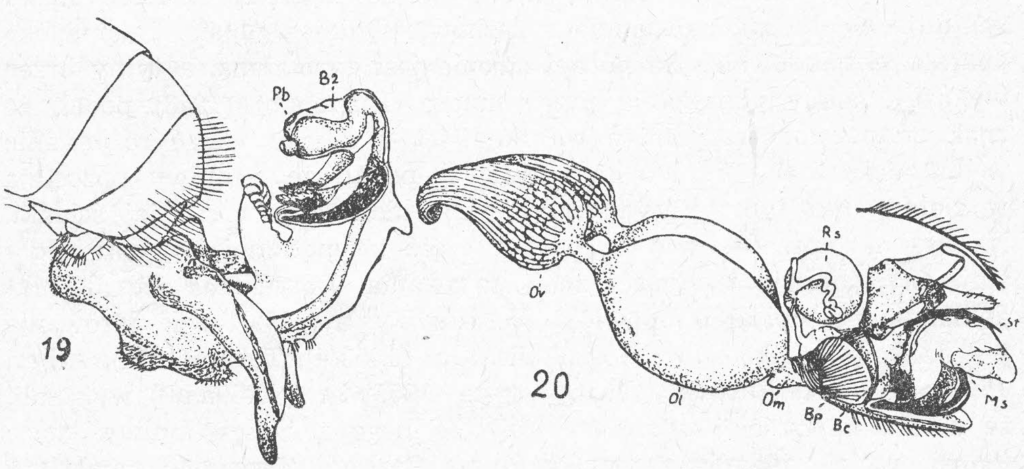
Ciśnienie hemolimfy wewnątrz wynicowanego aparatu jest jeszcze u wielu trutni tak duże, że cienkościenna część bulwy pęka na końcu (ryc. 19, Pb). Daje się przy tym słyszeć wyraźny trzask. Według dotychczasowych niedokładnych obserwacji podawano, że trzask ten słychać w momencie wydobywania się bulwy z przedsionka. W rezultacie pęknięcia końca bulwy hemolimfa wypływa z wnętrza wynicowanego aparatu, a bardzo rozciągnięta cienkościenna część bulwy silnie kurczy się (ryc. 19, B₂). Sprężysta warstwa wzmacniająca, odchodząca od chitynowych płytek, zaciska obecnie wnętrze aparatu. Pęknięcie całkowite
wynicowanego aparatu zachodzi u wielu trutni nawet przed całkowitym wynicowaniem wyrostka pierzastego.
Znak parowania. Janscha (1770) pierwszy stwierdził, że matka przylatująca z lotu weselnego ma przy końcu odwłoka t.zw. znak parowania. Pösl (1784) oraz Huber (1791) zidentyfikowali ten znak, jako oderwaną część aparatu kopulacyjnego trutnia. Huber podaje, że przy znaku parowania pozostaje kawałek kanału wytryskowego, a od strony otworu płciowego matki opisuje jakiś organ, który identyfikuje ze znanym dziś woreczkiem. (Opisany przez Hubera organ był prawdopodobnie jedynie śluzem). Na skutek krytyki Spitzner’a (1795) zapomniano zupełnie o znaku parowania. Znak parowania odkrywa ponownie Gundelach (1842), a następnie Dzierżon (1845) i Berlepsch (1853), który znak ten przesyła Siebold’owi. Siebold (1854) opisuje, że oprócz „penisa” pozostają w otworze odwłoka matki również rożki aparatu kopulacyjnego. Leuckart (1860 i 1873) opisuje w sumie trzy znaki. Według niego oprócz spermatoforu pozostaje w matce jedynie część bulwy
strona 16z płytkami chitynowymi. Dalej podaje, że ścianki bulwy są żółte, więc prawdopodobnie miały styczność z rożkami, do czego jeszcze wrócimy. W 1873 r. dochodzi do wniosku, że przy znaku pozostaje warstewka ścianki odcięta z wnętrza bulwy ostrymi końcami płytek chitynowych. Inni badacze nie potwierdzają tego. Shafer (1917) opisał dwa znaki parowania, u których bulwy były wynicowane. Podobnie Bishop (1920b) opisał dwa znaki, które były wynicowanymi bulwami, oraz jeden — niewynicowaną bulwą wraz z kanałem wytryskowym. Następni badacze nie stwierdzili wynicowania bulwy w znaku parowania. Zander (1922) i Arnhart (1935, 1938) podają, że w ciele matki jako znak parowania pozostaje tylko bulwa wraz z mniejszym lub dłuższym kawałkiem kanału wytryskowego. Laidlaw (1944) nie znalazł przy znakach kanału wytryskowego. Podaje on, że na zewnętrznej powłoce znaku znajduje się kleista substancja z rożków. Wydaje mu się, że powłoka aparatu eksplodowała. Na górnej stronie jest rozpłatana, a tylny brzeg wykazuje ślady obgryzania przez matkę. Kuriennoj (1953) podał, że znak od przodu przypomina rozetkę liści, a z tyłu widać rozerwanie w kształcie litery T. Woyke (1955b i c) podał, że z bulwy pozostają w ciele matki tylko płytki chitynowe i nieznaczna część jej ścianki. Na rysunku przedstawił jak wielka część zewnętrznej powłoki pozostaje przy bulwie tworzącej znak parowania. Dotychczas jednak nikt dokładnie nie opisał tej powłoki. Według Fyg’a (1952) znak parowania jest jedynie grudką śluzu. S. i F. Ruttner (1953/4), Taber (1954), Alber, Jordan, F. i H. Ruttner (1955), Woyke (1955b i c i 1956a i b) wykazali, że matka najczęściej wraca z lotu weselnego z częścią bulwy, może jednak wrócić jedynie z grudką śluzu. Czasem zdarza się nawet, że wraca bez jakiegokolwiek widocznego znaku parowania, co stwierdzili Taber (1954) i Woyke (1956a i b).
Zaobserwowaliśmy 1812 lotów godowych matek, z których 386 było lotami weselnymi. Zobaczyliśmy 366 razy matkę wracającą z lotu weselnego ze znakiem parowania, tkwiącym wewnątrz końca odwłoka. Dopiero po pewnym okresie obserwacji (w 345 wypadkach) zwróciliśmy uwagę na to, co przedstawia ten znak. Stwierdziliśmy wtedy, że 262 razy była to część aparatu kopulacyjnego, a 83 razy była to jedynie grudka śluzu, w końcu 20 razy nie zauważyliśmy żadnego znaku parowania, pomimo, że potem okazało się, iż matki te były unasienione; musiały więc odbyć lot weselny i wrócić bez widocznego znaku parowania. Spośród sumy tych trzech ostatnich liczb, przedstawiających 365 stwierdzonych lotów weselnych matki wróciły więc w 71% wypadków z częścią bulwy, w 23% wypadków jedynie ze śluzem i w 6% wypadków bez widocznego znaku.
Grudka śluzu (Woyke 1956b ryc. 2 i 4) czasem była tak wielka, że
strona 17wypełniała komorę kopulacyjną, komorę żądłową wraz z jej fałdami oraz wystawała jeszcze z końca odwłoka. Czasem natomiast była ona tak mała, że chowała się w komorze żądłowej i można ją było zauważyć dopiero po rozwarciu końca odwłoka matki.
Gdy matka wracała z lotu weselnego z częścią aparatu kopulacyjnego trutnia, to taki znak parowania był zawsze widoczny, gdyż koniec odwłoka matki nie domyka się. Obecność charakterystycznych płytek chitynowych nie pozostawiała wątpliwości, iż była to część bulwy trutnia. (ryc. 20, 21, Ms). Część ta jest niewynicowana.
Jak będzie to dalej dokładniej opisane, chitynowe płytki znaku są w matce obrócone ku stronie brzusznej, a ostre ich końce zwrócone ku przodowi matki (ryc. 20—21). Dlatego dla ułatwienia opisu, ściankę znaku zaopatrzoną w chitynowe płytki będziemy nazywali dolną, a koniec zwrócony w kierunku głowy matki, to znaczny koniec, przy którym są ostre końce płytek — przednim. Koniec znaku przedstawiamy na ryc. 22 i 23 z lewej strony rysunku będzie więc końcem przednim.
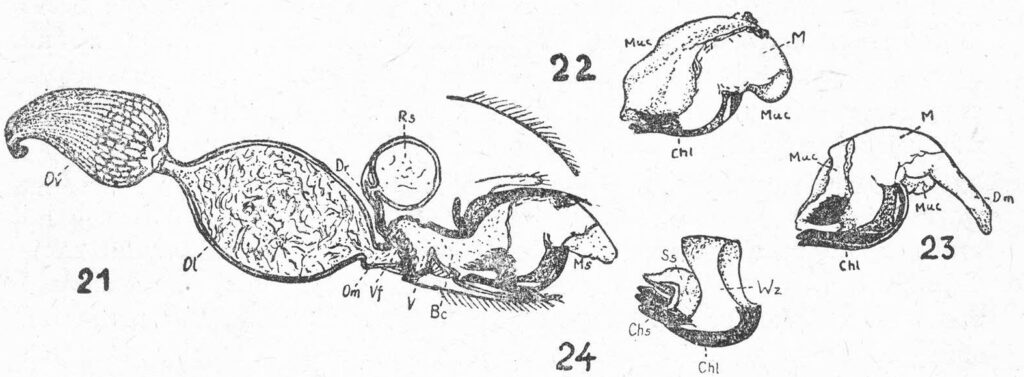
Część bulwy aparatu kopulacyjnego trutnia pozostawiona w otworze odwłoka matki pogrążona jest w śluzie z gruczołów śluzowych trutnia. Śluz ten obejmuje zwłaszcza przednią część znaku. W matce śluz znajduje się w zagłębieniach komory kopulacyjnej i komory żądłowej, a nawet wchodzi do odbytu. Przedni koniec znaku parowania wygląda różnie w zależności od tego ile śluzu wyjmiemy wraz z częścią bulwy. Znak ten wypreparowany z utrwalonych matek jest jakdyby odlewem tej części matki, w której tkwi. Część bulwy tkwiąca w matce, w śluzie, kształtem swym przypomina niewynicowaną bulwę trutnia. Jest ona jedynie nieco zdeformowana przez matkę. Tylny koniec znaku wystający z odwłoka matki kończy się albo tępo (ryc. 20, 21, 22) albo krótszą lub dłuższą nitką (ryc. 23 Dm).
W ogromnej większości wypadków u badanych matek znajdował się wewnątrz znaku jedynie śluz z gruczołów śluzowych. Nasienie natomiast gromadziło się w pochwie, w jajowodzie środkowym i głównie
strona 18w jajowodach bocznych matki. W nielicznych jednak wypadkach znaleźliśmy w przedniej lub środkowej części znaku oprócz śluzu niewielkie ilości nasienia.
Ścianki znaku częściowo są utworzone przez część ścianek bulwy aparatu kopulacyjnego. Substancja spajająca chitynowe płytki oraz łukowato odchodząca od nich warstwa wzmacniająca tworzą wewnętrzną część ścianki. Zewnętrzna część ścianki jest utworzona z części powłoki bulwy. Fakt ten stanowi między innymi dowód, że partia bulwy, która tworzy znak parowania nie jest wynicowana. Zewnętrzna powłoka znaku jest koloru pomarańczowego. Okrywa ona częściowo płytki chitynowe, prawie całą warstwę wzmacniającą oraz częściowo śluz (ryc. 22, 23 M).
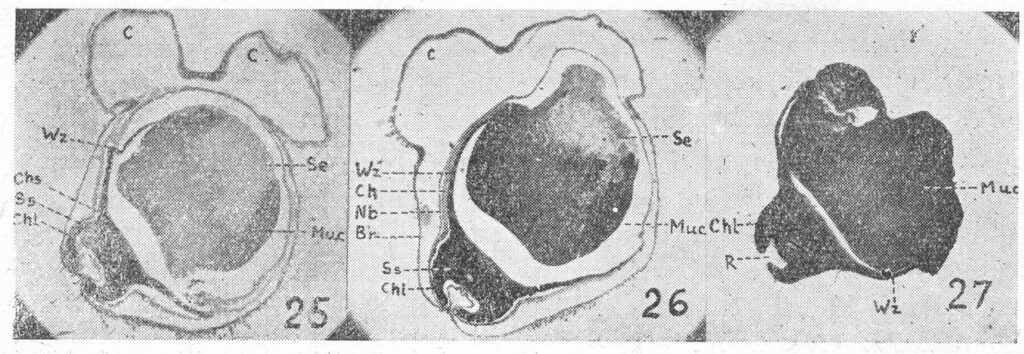
Przebieg linii brzegu powłoki przedstawia się następująco: najbardziej do przodu wysunięta część powłoki znajduje się na przedniej ściance bulwy pomiędzy przednimi brzegami płytek szerokich i ostrymi końcami płytek podłużnych. Znajdująca się tu niewielka część powłoki tworzy jak gdyby wierzchołek kąta, którego ramiona wyznaczone przez linię brzegu powłoki, biegną ku tyłowi. Jedno ramię kieruje się ku dołowi, drugie ku górze. Dolna krawędź brzegu powłoki przechodzi ukośnie przez podłużne płytki i dąży w kierunku rynienki (ryc. 27, R), znajdującej się między leżącymi obok siebie brzegami płytek podłużnych. Powłoka okrywająca znak wchodzi czasem aż do rynienki. Przeważnie jednak powłoka znaku jest na dolnej stronie pęknięta i jej krawędź nie dochodzi nawet do brzegów płytek, między którymi znajduje się rynienka. Linia brzegu biegnie stąd do tyłu znaku przechodząc przez szeroki koniec podłużnych płytek (ryc. 22 i 23), lub przez ich górny zewnętrzny róg. W ten sposób jedynie niewielka część podłużnych płytek jest okryta powłoką. U pojedyńczych matek zdarza się nawet, że powłoka ta jest zupełnie ściągnięta z płytek podłużnych. Od szerokiego końca podłużnych płytek brzeg powłoki biegnie dalej falistą, nieregularną linią ku tylnemu końcowi znaku. Linia brzegu na niektórych znakach przebiega prawie poziomo, na innych odgina się ku górze lub ku dołowi, osiągając wreszcie górną ściankę znaku.
Drugie ramię wyznaczone przez linię brzegu powłoki, a wychodzące z pomiędzy płytek podłużnych i szerokich przechodzi ukośnie przez płytki szerokie. Od tylnego górnego rogu szerokich płytek odchodzi przedni brzeg warstwy wzmacniającej od wewnątrz bocznej ścianki bulwy. Powłoka, okrywająca znak, okrywa również i warstwę wzmacniającą. Przednia krawędź powłoki biegnie począwszy od szerokich płytek albo równo z przednim brzegiem warstwy wzmacniającej, albo nieco poza nim. Brzeg powłoki biegnie nieregularną linią ku górnej stronie znaku. Linia brzegu odgina się na jednych znakach mniej, na
strona 19drugich więcej, ku tyłowi. Powłoka okrywająca znak od góry jest przeważnie na górnej ściance podłużnie pęknięta (ryc. 22). Szczelina ta z przodu jest bardzo szeroka, a następnie zwęża się ku tyłowi. Brzegi powłoki są poszarpane i porozsuwane. Szczelina ta powstała w wyniku ruchów aparatu żądłowego. W nielicznych znakach górna ścianka powłoki nie jest rozerwana w tylnej części znaku, gdzie nie dosięgło żądło. Sama szczelina, jak i pomarszczenie jej brzegów są tym mniejsze, im wcześniej znaki parowania zostały wyjęte z komory żądłowej matki. Zewnętrzna powłoka znaku znacznie dokładniej pokrywa warstwę wzmacniającą, aniżeli płytki chitynowe. Powyższy fakt przemawia za tym, iż w czasie kopulacji w pierwszym rzędzie odrywa się część powłoki przylegająca bezpośrednio do warstwy wzmacniającej.
Cała zewnętrzna powłoka, okrywająca znak jest, jak wspomniano, koloru pomarańczowego. Kolor ten jest podobny do koloru lepkiej warstewki zsuwającej się z rożków w czasie wynicowywania aparatu. Wielu badaczy uważa, że zabarwienie powłoki pochodzi od znajdującej się na rożkach kleistej substancji, która w jakiś sposób dostała się w czasie kopulacji z różków na znak parowania. Ponieważ jednak inne części znaku nie są pokryte tą kleistą substancją, a jednocześnie cała zewnętrzna powłoka znaku jest koloru pomarańczowego, uważamy, że pomarańczowy kolor powłoki znaku nie pochodzi z rożków, lecz jest to kolor tej części powłoki bulwy, która pozostaje przy znaku. Cała powłoka jest bardzo podobna do warstewki zsuwającej się w czasie wynicowania z rożków.
Przy żadnym ze zbadanych znaków nie znaleźliśmy fragmentów kanału wytryskowego. Nie było go ani przy znakach, które kończyły się tępo, ani przy znakach, które kończyły się wydłużoną białą nicią (ryc. 23, Dm). Nić ta utworzona była zawsze tylko ze śluzu. Ponieważ nie opisywano dotychczas jaka część powłoki organów rozrodczych trutnia wchodzi w skład znaku, więc prawdopodobnie identyfikowano tą śluzową nitkę z kanałem wytryskowym, do którego jest ona bardzo podobna.
Oprócz wielu znaków, które wyglądały podobnie, jak wyżej opisane, znaleźliśmy kilka, które nieco różniły się. W czterech znakach spotkaliśmy przy ich tylnym końcu, wystającym z odwłoka matki, jakąś inną substancję niż śluz. Na podstawie znajomości działania organów rozrodczych trutnia należało się spodziewać, że będzie to nabłonek gruczołów śluzowych trutnia. W rzeczywistości przy końcu wielu znaków można znaleźć niewielkie ilości nabłonka podobnego do nabłonka z gruczołów śluzowych lub pęcherzyków nasiennych. We wspomnianych czterech znakach, znajdująca się przy końcach znaków masa była jednak koloru żółtawego i jak okazało się pod mikroskopem nie był to nabłonek.
strona 20Masa ta utworzona była z nasienia. Nasienia tego było mniej więcej tyle ile posiada jeden truteń. Znajdowało się ono na tylnej, dolnej stronie znaku, na zewnątrz od śluzu. Oblewało również z zewnątrz tylną część płytek podłużnych i powłokę znaku. Można by przypuścić, że u tych trutni nastąpiła w czasie kopulacji zmiana kolejności działania pęcherzyków nasiennych i gruczołów śluzowych w ten sposób, że najpierw nastąpił wytrysk śluzu, a potem plemników. W jajowodach i pochwie tych matek znajdowało się już dużo nasienia. Tylny
koniec znaku po utrwaleniu i odpreparowaniu znajdującego się na zewnątrz nasienia nie różnił się od innych znaków, pozostawionych przez trutnie, u których nastąpiła normalna kolejność wytrysku.
Z wszystkich powyższych faktów należy wyciągnąć wniosek, iż nasienie to pochodzi od innego trutnia, niż znak parowania tkwiący w matce. Wynika z tego, iż matka posiadająca w komorze żądłowej znak, parowała się z następnym trutniem. Nie zdołały one jednak w czasie kopulacji wyrzucić znaku poprzednika i w rezultacie, nasienie ostatniego trutnia znalazło się z tyłu, na zewnątrz znaku.
Znak parowania matki a bulwa aparatu kopulacyjnego trutnia. Z wyżej przytoczonych opisów, podanych w wyniku badań anatomicznych oraz histologicznych (ryc. 25, 26 i 27) — widać, że w wypadku gdy znak parowania stanowi koniec aparatu kopulacyjnego trutnia, mamy do czynienia z bulwą tego aparatu. Zgodnie z tym co podaliśmy dawniej (Woyke 1955b i d) „z bulwy pozostają w ciele matki tylko chitynowe płytki i niewielka część ścianki”. Przy znaku parowania nie ma więc całej cienkościennej części bulwy. Pozostaje część grubościenna. Należy jednak dokładniej wyjaśnić, jaka część ścianki bulwy wchodzi w skład znaku parowania. Ułożenie powłoki na powierzchni znaku opisaliśmy w poprzednim rozdziale. Należy więc jedynie dokładniej porównać mikroskopową budowę ścianki grubościennej części bulwy z budową ścianki znaku parowania.
Mikroskopowa budowa ścianki grubościennej części bulwy przedstawia się następująco (ryc. 28). Na cienkiej błonce podstawowej (Mp)
strona 21znajduje się cylindryczny nabłonek o jednym rzędzie jąder (Nb). Nabłonek ten wydzielił do środka bulwy grubą warstwę przezroczystego, schitynizowanego oskórka (Ch₁ i Ch₂). W warstwie tej widać prostopadle do powierzchni biegnące pory, wypełnione ziarnistością. Znacznie wyraźniej widać równolegle do powierzchni biegnące blaszki. W świetle spolaryzowanym (ryc. 28) można wyróżnić w warstwie tego przezroczystego schitynizowanego oskórka dwa słoje. Przy odpowiednim ustawieniu nikoli można doprowadzić do tego, że jeden słój pozostaje ciemny (Ch₁), podczas gdy drugi wyraźnie świeci się (Ch₂). Słój przezroczystej schitynizowanej warstwy oskórka, leżący obok nabłonka jest grubszy i posiada luźną budowę. Poszczególne blaszki tego słoja są ułożone faliście. Słój leżący dalej od nabłonka jest znacznie cieńszy i posiada bardziej zbitą budowę. Około ³/₄ grubości całej przeźroczystej schitynizowanej warstwy oskórka przypada na słój położony obok nabłonka, a około ¹/₄ na słój leżący dalej od nabłonka. Z jednej strony bulwy znajdują się pod przeźroczystą schitynizowaną warstwą oskórka dwie pary ciemnych, nieprzeźroczystych płytek chitynowych (ryc. 25, 26, Chl i Chs).
U płciowo dojrzałych trutni para podłużnych płytek chitynowych jest dość mocno przyrośnięta do tej przeźroczystej, schitynizowanej warstwy oskórka. Natomiast płytki szerokie bardzo łatwo oddzielają się od tej warstwy oskórka. Wszystkie cztery płytki połączone są od wewnątrz bulwy dużą ilością galaretowatej substancji spajającej (ryc. 25, 26, Ss).
Od zewnętrznych brzegów płytek chitynowych odchodzi warstwa wzmacniająca (ryc. 25, 26, Wz). Warstwa ta staje się coraz cieńsza w miarę oddalania się płytek. Na ściance naprzeciw płytek warstwa wzmacniająca przechodzi w cienką warstewkę, którą od wewnątrz pokryta jest cała bulwa.
W sposób dalej omówiony można wypreparować z wnętrza bulwy, bez rozrywania jej ścianek, dwie pary płytek wraz z warstwą wzmacniającą. Cały ten preparat tworzy wtedy swego rodzaju nieprzerwaną obrączkę (ryc. 24).
Triasko (1957a) wyróżniła jeszcze i narysowała prócz 1) błony podstawowej, 2) nabłonka, 3) przeźroczystej chityny (schitynizowanej warstwy oskórka) i 4) płytek chitynowych, następujące struktury pod płytkami chitynowymi oraz rynienką: 5) warstwę przeźroczystej chityny, 6) warstwę wielojądrowego nabłonka, 7) znowu warstwę przeźroczystej chityny, 8) warstwę bardziej homogennej chityny i na koniec 9) galaretowatą substancję, która odpowiada t.zw. przez nas substancji spajającej.
Jak widać na ryc. 25 i 26 pod chitynowymi płytkami i rynienką
strona 22nie ma, prócz substancji spajającej, tych opisanych przez Triasko struktur. W dodatku, w całym aparacie kopulacyjnym nigdzie nie ma wielojądrowego nabłonka. Przedstawiona przez Triasko rekonstrukcja powstała na skutek nieprawidłowej interpretacji podłużnego przekroju bulwy. Na przykład gdy przekrój podłużny przeprowadzono w bliskości rynienki, znajdującej się pomiędzy podłużnymi płytkami, wtedy przekrojono dodatkowo dwa razy tę samą przeźroczystą schitynizowaną warstwę oskórka i jeden raz przekrojono stycznie nabłonek, co wywołało złudzenie, że pod chitynowymi płytkami znajduje się wielojądrowy nabłonek.
Opisany przez nas wyżej mikroskopowy obraz grubościennej części bulwy porównamy obecnie z mikroskopową budową znaku parowania, który odpowiada właśnie tej części bulwy.
Wnętrze znaku parowania wypełnia, jak wiemy, śluz (ryc. 27, 29 Muc). Budowa ścianki znaku przedstawia się następująco: najbardziej wewnętrzną strukturę ścianki znaku tworzy warstwa wzmacniająca (ryc. 27, 29 Wz), oraz substancja spajająca (ryc. 27, Ss), łącząca płytki chitynowe. Te części ścianki znaku są więc identyczne z odpowiednimi częściami ścianki bulwy trutnia. Na zewnątrz płytek i warstwy wzmacniającej znajduje się powłoka okrywająca znak (ryc. 29, Ch₂). Powłoka ta zbudowana jest z warstwy przezroczystego schitynizowanego oskórka. Warstwa przezroczystego schitynizowanego oskórka znaku jest jednak o wiele cieńsza od takiejże warstwy bulwy. Grubość przezroczystej schitynizowanej warstwy oskórka w różnych częściach aparatu kopulacyjnego trutnia i znaku parowania matki przedstawiono w poniższej tabeli:
Tabela 1
Grubość przeźroczystej schitynizowanej warstwy oskórka powłoki w różnych częściach bulwy aparatu kopulacyjnego trutnia i znaku parowania matki.
| Lp. | Miejsce pomiaru | Napełniona bulwa aparatu kopulacyjnego trutnia [w mikronach] | Znak parowania matki [w mikronach] |
|---|---|---|---|
| 1 | Na podłużnych płytkach chitynowych | 9,5—12,5 | 2,5 |
| 2 | Na warstwie wzmacniającej i płytkach szerokich w pobliżu płytek podłużnych | 23,5—32,5 | 4,5—9,5 |
| 3 | Na warstwie wzmacniającej i płytkach szerokich na bocznej ściance bulwy | 12,5—16,5 | 2,5 |
| 4 | Na ściance naprzeciw chitynowych płytek | 4,5— 7,0 | 1,5—2,5 |
strona 23dwie kolumny wartości („Napełniona bulwa aparatu kopulacyjnego trutnia” oraz „Znak parowania matki”) objęte są wspólnym podnagłówkiem w mikronach.
Największa część przezroczystej schitynizowanej powłoki znaku parowania posiada grubość 2,5—3,5 mikrona, natomiast grubość przezroczystej schitynizowanej warstwy oskórka powłoki bulwy trutnia wynosi w analogicznym miejscu 11,5 mikronów. Z powyższych danych widzimy, że przezroczysta schitynizowana warstwa oskórka powłoki bulwy trutnia jest około cztery razy grubsza od przezroczystej schitynizowanej powłoki znaku parowania. Przy znaku parowania nie pozostała więc cała przeźroczysta schitynizowana warstwa oskórka powłoki bulwy trutnia. Pod mikroskopem w świetle spolaryzowanym widać (ryc. 29), że przy znaku parowania pozostał jedynie cienki, zbity słój przezroczystej schitynizowanej warstwy oskórka (ryc. 29, Ch₂). Słój ten leżący bezpośrednio przy płytkach chitynowych i warstwie wzmacniającej opisaliśmy już przy omawianiu budowy ścianki bulwy trutnia (ryc. 28, Ch₂). Na załączonych mikrofotografiach słój ten wyraźnie widać, zarówno w ściance bulwy trutnia (ryc. 28, Ch₂), jak i w ściance znaku parowania (ryc. 29, Ch₂).
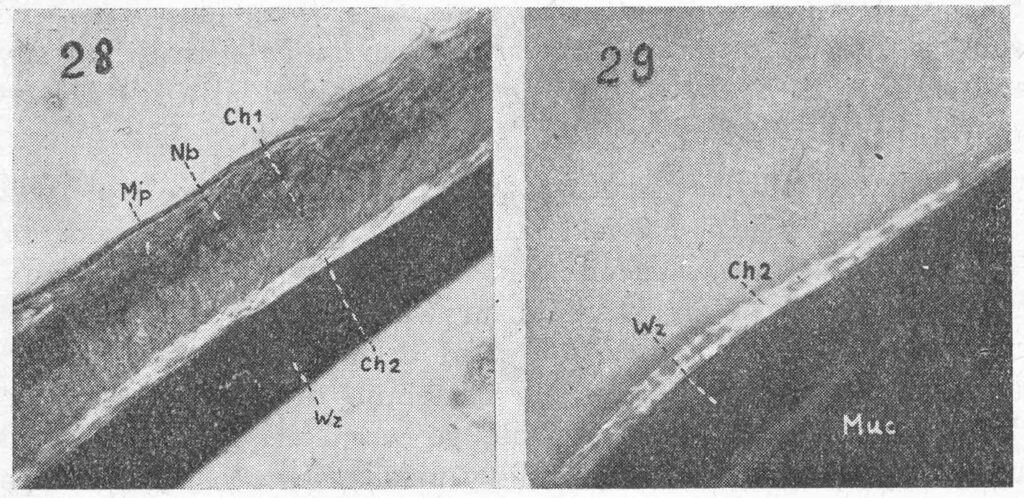
W ściance bulwy trutnia znajdował się na zewnątrz od grubego słoja przezroczystej schitynizowanej warstwy oskórka jeszcze nabłonek i błona podstawowa. Natomiast w ściance znaku parowania, poza stwierdzonym brakiem tego grubego słoja oskórka, nie znaleziono również śladu nabłonka i błony podstawowej. W rezultacie grubość powłoki znaku parowania (ryc. 29, Ch₂) jest osiem lub więcej razy cieńsza od grubości całej powłoki bulwy trutnia (ryc. 28, Ch₂ + Ch₁ + Nb + Mp).
Widać, że w ściance bulwy trutnia nastąpiło w czasie oddzielania znaku rozwarstwienie między dwoma opisanymi słojami przezroczystej schitynizowanej warstwy oskórka powłoki bulwy. Odmienny przebieg włókien chityny w obydwóch słojach znacznie ułatwiał to rozwarstwienie. Przy znaku parowania, oprócz płytek chitynowych złączonych substancją spajającą i warstwy wzmacniającej pozostał jedynie cienki, przylegający do nich słój przeźroczystej schitynizowanej warstwy oskórka.
strona 24Reszta ścianki bulwy, t.zn. gruby słój oskórka, leżący przy nabłonku, nabłonek i błona podstawowa, musiała więc pozostać przy aparacie kopulacyjnym trutnia.
Triasko (1957a) podaje, że oddzielenie chitynowych płytek od ścianki bulwy ułatwiają zwakuolizowane komórki nabłonka. Ponieważ jednak między nabłonkiem a płytkami chitynowymi znajduje się przeźroczysta schitynizowana warstwa oskórka i rozwarstwienie nie zachodzi między nabłonkiem a pozostałymi warstwami, więc też zwakuolizowany nabłonek nie może mieć bezpośredniego wpływu na oddzielenie się płytek chitynowych od powłoki bulwy. Zwakuolizowane komórki nabłonka nie mogą również mieć bezpośrednio wpływu na rozstawienie oskórka powłoki.
Z wyżej podanych przez nas faktów widać, że powłoka okrywająca z zewnątrz znak parowania nie jest, jak się powszechnie uważa, po prostu obgryzioną względnie oberwaną powłoką bulwy trutnia. Powłoka znaku jest jedynie wewnętrzną warstewką powłoki bulwy trutnia. Powłoka okrywająca znak jest więc zarówno ze względu na swe właściwości jak i pochodzenie tworem analogicznym do kleistej warstewki odwarstwiającej się i zsuwającej się z rożków w czasie wynicowywania aparatu.
Kształt i brzegi powłoki znaku pozwalają wnioskować, że w pierwszym rzędzie odwarstwia się z powłoki bulwy wewnętrzna warstewka, przylegająca do warstwy wzmacniającej, oraz w mniejszym stopniu do chitynowych płytek. Warstewka ta urywa się następnie przy końcu znaku. Tak więc uwzględniwszy wygląd całego znaku dochodzimy do wniosku, że w czasie kopulacji nie następuje urwanie części aparatu kopulacyjnego trutnia i pozostawienie go w matce, lecz opisany znak parowania wysuwa się z wnętrza bulwy nie rozrywając jej. Sam aparat kopulacyjny trutnia po kopulacji powinien więc być cały i nieprzerwany.
Ułożenie znaku parowania w odwłoku matki. Ponieważ nie ma dotychczas jednolitej nomenklatury dla poszczególnych części dróg rodnych matki, przyjmujemy w zasadzie nomenklaturę Snodgrass’a (1956).
Boczne jajowody (ryc. 20, Ol), odchodzące od dwóch jajników (ov), łączą się ku tyłowi w jeden wspólny jajowód środkowy (ryc. 20, 21, Om). Jajowód środkowy przechodzi ku tyłowi w pochwę (ryc. 21, V). Na granicy między jajowodem środkowym a pochwą wystaje z dolnej ścianki fałt zastawkowy (ryc. 21, Vf), a z górnej odchodzi przewód zbiorniczka nasiennego (ryc. 21, Dr). Pochwa otwiero się ku tyłowi otworem płciowym do komory kopulacyjnej (ryc. 20, 21, Bc). Z komory kopulacyjnej dochodzą na boki dwie kieszenie kopulacyjne (ryc. 20, Bp).
strona 25Komora kopulacyjna przechodzi ku tyłowi w komorę żądłową. Te dwie komory oddzielone są od siebie fałdem ich ścianki.
Już Huber (1791) podał, że tkwiąca w końcu odwłoka matki bulwa trutnia jest niewynicowana i mieści się pod żądłem. Płytki chitynowe znajdują się pod otworem pochwy, zwrócone swymi ostrymi końcami ku przodowi. Siebold (1854) znalazł w matce prócz bulwy jeszcze inne części aparatu kopulacyjnego. Leuckart (1860, 1873) znalazł tylko bulwy i podaje, że tkwią one w pochwie, obrócone płytkami chitynowymi ku stronie brzusznej a ostrymi końcami płytek zwrócone ku przodowi. (Za pochwę uważa łącznie to, co dziś nazywamy pochwą i komorą kopulacyjną). Bishop (1920b) opisał dwa całkowicie wynicowane aparaty kopulacyjne trutni, z których jeden tkwił w komorze kopulacyjnej matki, a drugi aż w pochwie.
Inni autorzy, którzy podali opisy lub ilustracje części organów trutnia, tkwiących w matce, Zander (1922), Arnhart (1935, 1938), Is’hak Ogly (1939), Laidlaw (1944), S. i F. Ruttner (1953/54), Woyke (1955b, d, e, 1956a), znajdowali tylko bulwy niewynicowane, ułożone podobnie jak opisali Huber i Leuckart. Istnieje jedynie niezgodność co do tego, jak głęboko bulwa tworząca znak tkwi w matce. Is’hak Ogly podaje podobnie jak Leuckart, że bulwa tkwi głębiej w matce, bo w przedsionku pochwy (mianem tym oznacza dzisiejszą pochwę i komorę kopulacyjną). Natomiast Zander, Arnhart, Laidlaw i Woyke podali, że bulwa znajduje się w komorze żądłowej, a ostre końce chitynowych płytek dotykają jedynie do przedniej ścianki komory żądłowej.
Nie zajmujemy się tu ułożeniem znaku parowania w wypadku, gdy stanowił on jedynie grudkę śluzu. Znak taki i jego ułożenie w matce opisaliśmy już uprzednio.
U wszystkich zbadanych przez nas matek, wracających z lotu weselnego ze znakiem parowania, utworzonym z części bulwy trutnia, można było stwierdzić, że część ta była niewynicowana i znajdowała się między wzniesionym i wysuniętym nieco do tyłu żądłem, a siódmym (ostatnim z zewnątrz widocznym) brzusznym półpierścieniem odwłoka. Chitynowe płytki znaku znajdowały się na stronie brzusznej, wypukłymi powierzchniami na zewnątrz, a ostrymi końcami zwrócone ku przodowi matki.
Po porównaniu większej ilości matek wracających ze znakiem parowania można stwierdzić, że część bulwy, która pozostała w matce tkwi u różnych matek niejednakowo głęboko. U niektórych matek tylny koniec znaku chowa się w komorze żądłowej i z trudem jedynie widać rozszerzone końce podłużnych płytek chitynowych bulwy. Jednak u większości matek tylny koniec znaku wystaje z końca odwłoka matki, a tylna część płytek chitynowych znaku jest dobrze widoczna (ryc. 20,
strona 26Ms). U matek tych znak parowania tkwi jedynie tak głęboko, że tylny koniec chitynowych płytek jest wepchnięty równo z tylnym brzegiem końca odwłoka lub nawet z niego wystaje.
W czasie zabijania matek część ich wypycha znak bardziej do tyłu, na zewnątrz. Po odpreparowaniu chitynowego pancerza widać wyraźnie to co można zauważyć już u żywych matek. Mianowicie u bardzo wielu matek znak ten nie tkwi symetrycznie do podłużnej płaszczyzny przekroju matki (Woyke 1956b, ryc. 3). Tylny koniec płytek jest przesunięty na jeden bok. Płytki podłużne również nie leżą zupełnie poziomo, lecz są ustawione nieco skośnie, tak, że ich szeroki koniec unosi się ku górze, w kierunku żądła.
U matek, u których znak tkwił głęboko przedni koniec zarówno płytek podłużnych jak i szerokich wchodził do komory kopulacyjnej. Gdy znak tkwi niesymetrycznie do komory kopulacyjnej wchodzi tylko koniec płytki podłużnej i jednej szerokiej.
Najczęściej można jednak spotkać po rozpreparowaniu odwłoka matki obraz przedstawiony na ryc. 20 i 21. Mianowicie przedni koniec podłużnych płytek chitynowych nie wchodzi do komory kopulacyjnej. Koniec ten albo dotyka od tyłu do fałdu oddzielającego komorę żądłową od komory kopulacyjnej (Zander 1922, ryc. 176), albo wchodzi pod wepchniętą ku przodowi ściankę tego fałdu (ryc. 20 i 21). Końce szerokich płytek chitynowych wchodzą natomiast do komory kopulacyjnej (ryc. 20, 21). Jeżeli znak tkwi niesymetrycznie jedna szeroka płytka może wchodzić głębiej, druga może nie wchodzić wcale. Warstwa wzmacniająca odchodząca od płytek chitynowych i obejmująca z boku zawartość bulwy dotyka przednim brzegiem do tylnego końca komory kopulacyjnej.
Sztuczne oddzielanie znaku parowania od aparatu kopulacyjnego trutnia. Dotychczas nie udało się nikomu doprowadzić w sposób sztuczny do takiego oddzielenia pewnej części bulwy od aparatu kopulacyjnego trutnia, aby otrzymać znak parowania podobny do uprzednio przez nas opisanego. Dlatego przeprowadziliśmy w tym kierunku odpowiednie badania, rozumiejąc, że sztuczne oddzielenie takiego znaku z bulwy trutnia może przyczynić się do ugruntowania, wysuniętych przez nas uprzednio, hipotez. Najpierw chcieliśmy się przekonać, czy możliwe jest takie rozwarstwienie powłoki bulwy trutnia, aby na zewnątrz od chitynowych płytek i warstwy wzmacniającej pozostał jedynie wewnętrzny słój przezroczystej schitynizowanej warstwy oskórka powłoki, podobnie jak ma to miejsce przy znaku parowania.
Nawet u trutni zakonserwowanych w alkoholu udaje się przeprowadzić następujący zabieg. Najpierw można oddzielić z powłoki bulwy
strona 27zewnętrzną warstwę, która okazuje się nabłonkiem. Potem można zdjąć drugą, dość grubą warstwę, utworzoną z przezroczystej schitynizowanej warstwy oskórka. Na zewnątrz od chitynowych płytek i warstwy wzmacniającej bulwy pozostaje jednak jeszcze trzecia, cienka warstewka powłoki. Warstewka ta utworzona jest również z przezroczystej schitynizowanej warstwy oskórka. Pozostająca cienka warstewka powłoki tworzyła przy niewynicowanej bulwie aparatu kopulacyjnego wewnętrzny słój oskórka (ryc. 28 Ch₂). Ta obecnie pozostała warstewka powłoki tak rozpreparowanej bulwy posiada budowę mikroskopową, podobną do budowy zewnętrznej powłoki naturalnego znaku parowania. Okazuje się więc, że można w sposób sztuczny tak rozwarstwić powłokę bulwy, aby na zewnątrz chitynowych płytek i warstwy wzmacniającej znajdował się jedynie ten słój oskórka powłoki, który pozostaje przy znaku parowania.
Udaje się w końcu zdjąć również tą trzecią warstewkę powłoki bulwy. Po zdjęciu tego słoja pozostają wtedy z bulwy jedynie chitynowe płytki, połączone substancją spajającą i odchodząca od nich warstwa wzmacniająca (ryc. 24). Wbrew dotychczasowym opisom i rysunkom warstwa wzmacniająca obejmuje nietylko boki bulwy, lecz przechodzi również na ściankę, naprzeciw płytek chitynowych. Gruba warstwa wzmacniająca staje się w miarę oddalania od chitynowych płytek coraz cieńsza. Warstwa ta jest najcieńsza na ściance przeciwległej do płytek.
Tak więc warstwa wzmacniająca wraz z substancją spajającą i chitynowymi płytkami tworzy nieprzerwaną obrączkę (ryc. 24), która wyściela wnętrze bulwy. Przy znaku parowania obrączka ta obejmuje zawartość znaku.
Aparat kopulacyjny trutnia wynicowuje się w sposób uprzednio przez nas opisany, jeśli nic nie stoi na przeszkodzie całkowitemu jego wynicowaniu. W czasie kopulacji na pewno tak się nie dzieje.
Badaliśmy więc wynicowanie aparatu kopulacyjnego w warunkach zbliżonych do naturalnej kopulacji. W tym celu przystawialiśmy do końca odwłoka trutnia, wynicowującego aparat kopulacyjny, szklaną rurkę, przypominającą końcowy odcinek dróg rodnych matki.
Wynicowanie aparatu kopulacyjnego przebiegało w szklanej rurce do stadium przedstawionego na ryc. 12 podobnie, jak to uprzednio opisaliśmy. Gdy przekrój rurki był mniejszy od długości podłużnych płytek, to dalsze wynicowanie chwilowo ustawało. Nasienie wypchnięte przez śluz wytryskiwało jednak z końca aparatu pomimo niewynicowania się bulwy. Nawet w szklanej rurce nie występowało zmieszanie nasienia ze śluzem. Jeżeli w rurce znajdował się tylko sam koniec wynicowanego aparatu, lub gdy rurka ku odwłokowi rozszerzała się, to
strona 28już w tym stadium następowało wynicowanie wyrostka pierzastego. Dzieje się to przeciwnie, niż w czasie swobodnego wynicowywania się aparatu, gdzie wyrostek ten wynicowuje się dopiero po całkowitym wynicowaniu aparatu. Po częściowym opróżnieniu bulwy i na skutek zwiększonego ciśnienia hemolimfy wewnątrz aparatu kopulacyjnego, następowało w rurce odwrócenie chitynowych płytek bulwy. Chociaż podłużne płytki chitynowe mają 2,25 mm długości, to dzięki swej elastyczności odwracają się w rurce o przekroju 1,2 mm, a pomimo to nie oddzielają się od aparatu kopulacyjnego. Widać z tego, że płytki chitynowe bulwy mogą wynicowywać się w bardzo małej przestrzeni.
Warunki wynicowania aparatu kopulacyjnego w rurce różnią się jednak od takich warunków w drogach rodnych matki. Aparat kopulacyjny ma w rurce nieograniczone możliwości wynicowywania się ku tyłowi, czego nie ma w komorze żądłowej i kopulacyjnej matki. Aby warunki wynicowania upodobnić do tych, jakie panują w komorze żądłowej i kopulacyjnej matki, należy utrudnić wynicowanie aparatu do tyłu. W tym celu wystarczy ścisnąć palcami cienką powłokę bulwy znajdującą się na samym końcu aparatu (w stadium przedstawionym na ryc. 11—13 jest to woreczek), uciskając jednocześnie odwłok trutnia. Jeśli zbieg ten przeprowadzimy na wszystkich dalszych stadiach wynicowania aparattu, poczynając mniej więcej od stadium przedstawionego na ryc. 11, to zaobserwujemy, niezależnie od tego czy cała zawartość bulwy wypłynęła czy nie, następujące zjawisko.
Na skutek niemożności dalszego wynicowywania wzrasta wewnątrz aparatu kopulacyjnego ciśnienie hemolimfy, które oddziaływuje również na wszelkie dotychczas niewynicowane fałdy i wklęśnięcia powłoki.
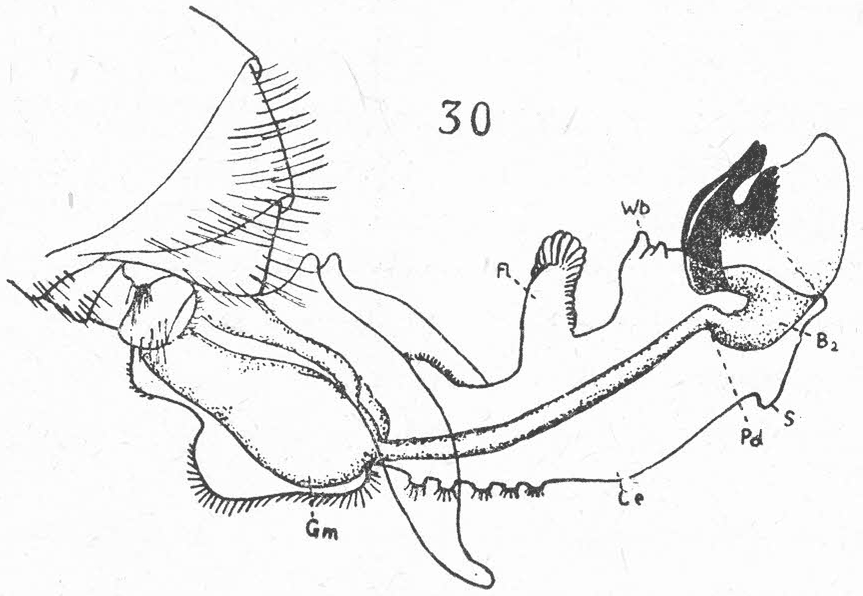
strona 29Wynicowuje się więc wyrostek pierzasty. Ponieważ ostre końce podłużnych płytek nie są obecnie zwrócone prosto do tyłu, zaczynają z nich ściągać się obejmujące je fałdy i wypukłości powłoki bulwy (ryc. 13A, Wb). Po odwinięciu się i wynicowaniu tych fałd i wypukłości (ryc. 30, Wb) ostre końce podłużnych płytek chitynowych sterczą wolno na zewnątrz podobnie jak i całe szerokie płytki chitynowe (ryc. 30).
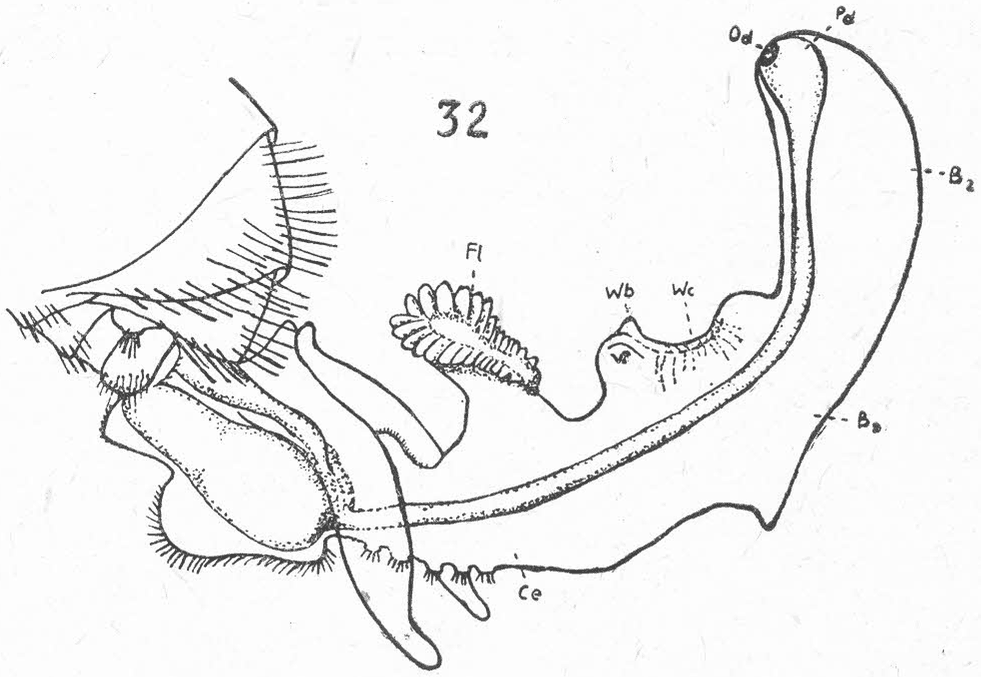
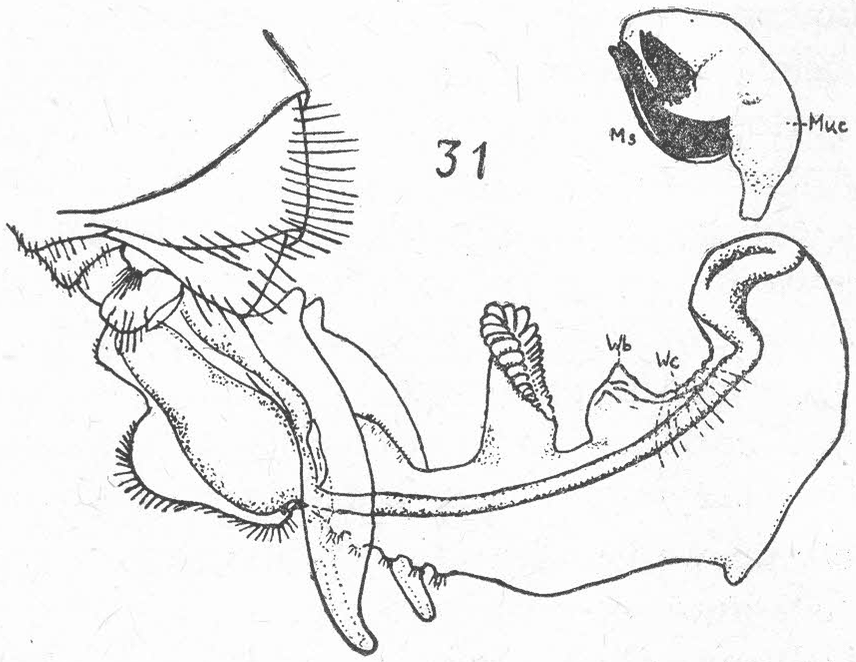
Potem powłoka aparatu oddziela się już łatwo od powierzchni całych płytek. Nieco trudniej następuje oddzielenie powłoki od szerokich końców podłużnych płytek i od warstwy wzmacniającej. W wyniku dalszego wynicowywania się aparatu następuje jednak całkowite oddzielenie powłoki od tak uformowanego sztucznego znaku i wypchnięcie znaku do tyłu na zewnątrz (ryc. 31). Aparat kopulacyjny, pozbawiony tego znaku nie rozrywa się, lecz wynicowuje się dalej. Kolejno wynicowują się poszczególne fałdy wyrostka pierzastego, w wyniku czego cały wyrostek odchyla się stopniowo ku przodowi (ryc. 30—32, Fl). Wynicowuje się również cienkościenna część bulwy (ryc. 32, B₂). Część ta stanowiąca obecnie końcowy odcinek wynicowanego aparatu, nie jest tak bardzo zgięta ku przodowi, jak ma to miejsce u aparatów niepozbawionych chitynowych płytek (ryc. 18, B₂). W tym miejscu aparatu, gdzie przedtym były chitynowe płytki, znajduje się obecnie podłużne wybrzuszenie (ryc. 32, Wc) z dwoma garbkami (ryc. 32, Wb). Garbki te tworzyły przed wynicowaniem się dwie wypukłości, które obejmowały ostre końce podłużnych płytek chitynowych.
Otrzymany sztuczny znak parowania jest podobny do znaków parowania znajdowanych w matce. Przy otrzymanym sztucznym znaku nie pozostaje jedynie tak duża warstewka powłoki jak w naturalnych znakach parowania. Spowodowane jest to prawdopodobnie różnicą warunków oddzielania np. czasem trwania oddzielania, stanem fizjologicznym trutnia itp.
Chitynowe płytki razem z warstwą wzmacniającą tworzą jednak nieprzerwaną obrączkę, która obejmuje znajdujących się wewnątrz
strona 30tego znaku śluz. Ten sztuczny znak jest więc podobny do naturalnych znaków parowania przed uszkodzeniem ich przez żądło matki.
Tak więc udało się na drodze eksperymentalnej oddzielić od aparatu kopulacyjnego trutnia znak (ryc. 31, Ms), podobny do naturalnych znaków parowania, przynoszonych przez matki.
Już po skończeniu naszych badań, Triasko (1957b) opisała znalezione przez siebie trutnie po kopulacji. Trutnie te miały aparat kopulacyjny całkowicie wynicowany, pozbawiony chitynowych płytek, lecz bulwa nie była urwana. Tak więc aparat kopulacyjny trutnia po locie weselnym był podobny do aparatu kopulacyjnego uzyskanego przez nas na drodze eksperymentalnej (ryc. 32).
Woyke i Ruttner (1958) opisali parkę trutnia i matkę złapaną przed rozłączeniem się po akcie kopulacji. Przy aparacie kopulacyjnym tego trutnia tkwił właśnie oddzielający się znak parowania w sposób uzyskiwany przez nas na drodze eksperymentalnej a przedstawiony na ryc. 30.
Powyższe fakty przemawiają za tym, że tworzenie się znaku parowania zachodzi w czasie naturalnej kopulacji pszczół, w sposób podobny do przeprowadzonego przez nas eksperymentalnie.
WNIOSKI
Przebieg kopulacji. Na podstawie opisanych przez nas wyników badań można wnioskować, iż kopulacja u pszczół ma następujący przebieg:
Po spotkaniu się matki z trutniem najpierw wynicowuje się przedsionek aparatu kopulacyjnego trutnia oraz rożki, których końce zwrócone są ku stronie grzbietowej i na zewnątrz (ryc. 3, 5). Po pęknięciu kleistej warstwy na rożkach i w czasie zsuwania się jej na zewnętrzną ściankę rożków, rożki odpowiednio wyginają się na dół (ryc. 4) i zbliżają do siebie (ryc. 6). obejmując mocno z zewnątrz odwłok matki. Tylny koniec szyjki częściowo wynicowanego aparatu (ryc. 7, Ce) wchodzi do komory żądłowej matki. Bulwa aparatu kopulacyjnego trutnia napełnia się nasieniem i śluzem dopiero w czasie kopulacji. Bulwa wsunięta do przedsionka aparatu kopulacyjnego trutnia początkowo z trudem przepycha się przez rozszerzającą się i wynicowującą się szyjkę (ryc. 9, Ce), przez którą w końcu gwałtownie przechodzi. W rezultacie zaostrzone końce chitynowych płytek znajdują się na końcu wynicowanego aparatu (ryc. 10) i dochodzą do komory kopulacyjnej matki. Dotyczy to szczególnie płytek szerokich. Wynicowujący się w dalszym ciągu koniec aparatu powoduje otwarcie się otworu bulwy (ryc. 10, Ob), znajdującego się przy zaostrzonych końcach płytek i uwolnienie od
strona 31powłoki końców płytek szerokich (ryc. 10, Chs). Następnie wynicowuje się woreczek (ryc. 11, S). Raptowne otwarcie końca bulwy i panujące wewnątrz aparatu ciśnienie powodują gwałtowny wytrysk nasienia (ryc. 12, Se), kierowany za pomocą szerokich płytek chitynowych (ryc. 20, 21) poprzez komorę kopulacyjną (Bc) do otworu płciowego matki. Nasienie, wypychane z bulwy przez śluz i nabłonek, przechodzi następnie poprzez pochwę i jajowód środkowy do jajowodów bocznych (ryc. 20, 21, Ol). Śluz jednak nie przedostaje się z bulwy do dalszych części dróg rodnych matki tak łatwo jak nasienie. Odpowiedni uchwyt końca aparatu kopulacyjnego trutnia przez matkę między siódmym półpierścieniem brzusznym i aparatem żądłowym nie pozwala wynicować się napełnionej śluzem bulwie. Na skutek zmniejszenia ciśnienia wewnątrz aparatu kopulacyjnego rożki uwalniają z uścisku koniec odwłoka matki. Nie następuje jednak teraz ani odgryzienie bulwy przez matkę, ani ukręcenie jej, ani eksplozja końca aparatu. Powłoka bulwy w dalszym ciągu wynicowuje się, pozostawiając niewynicowane płytki chitynowe bulwy wraz z warstwą wzmacniającą i znajdujący się między nimi śluz.
Najpierw fałd i wypukłości powłoki, obejmujące ostre końce podłużnych płytek (ryc. 13A, Wb), ściągają z płytek (ryc. 30, Wb), a potem łatwiej już wynicowuje się sama powłoka, oddziela się od całych płytek i reszty niewynicowującej się części bulwy, tworzącej znak parowania (ryc. 31, Ms), który pozostaje w matce (ryc. 20, 21). W chwili oddzielania się powłoki bulwy od warstwy wzmacniającej i płytek chitynowych rozwarstwia się przezroczysta schitynizowana warstwa oskórka powłoki bulwy. Część wewnętrznego słoja tej warstwy pozostaje przy znaku parowania. Tak więc następuje wysunięcie się niewynicowanego znaku parowania z wnętrza wynicowującego się, nierozerwanego aparatu kopulacyjnego trutnia.
Znak parowania tkwi u matki głównie w komorze żądłowej. Wynicowująca się w dalszym ciągu powłoka aparatu kopulacyjnego powoduje odsuwanie się trutnia od matki i rozdzielenie się parki. Prawdopodobnie wynicowujący się wyrostek pierzasty ułatwia oddzielenie się chitynowych płytek od powłoki aparatu kopulacyjnego lub wycofanie się powłoki aparatu z końca odwłoka matki. W czasie wytrysku nasienia z aparatu kopulacyjnego i oddzielania się znaku parowania wsuwają się do przedsionka aparatu gruczoły śluzowe, często wraz z obydwoma pęcherzykami nasiennymi, a czasem nawet i inne wnętrzności.
W czasie kopulacji następuje zakłócenie regularnego lotu i spadanie parki ku ziemi. Na ziemię spadają tylko niektóre parki, które nie zdołały się rozłączyć, lub połączyły się nisko nad ziemią.
Po oddzieleniu znaku parowania i wypadnięciu z matki aparatu kopulacyjnego
strona 32martwego trutnia, dochodzi do całkowitego wynicowania aparatu (ryc. 32). Aparat kopulacyjny takiego trutnia jest więc obecnie nieprzerwany i całkowicie wynicowany, a jedynie pozbawiony płytek chitynowych i warstwy wzmacniającej oraz części, przylegającej do nich, wewnętrznej warstewki oskórka powłoki bulwy. Jeśli po całkowitym wynicowaniu ciśnienia wewnątrz aparatu jest jeszcze duże, aparat kopulacyjny na końcu pęka i wiotczeje.
Matka ze znakiem parowania kopuluje w dalszym ciągu z następnymi trutniami. Na podstawie dotychczasowych danych można sobie wyobrazić wyjmowanie znaku parowania z poprzedniej kopulacji w następujący sposób. Matka częściowo wypycha znak z komory żądłowej, • W czasie kopulacji następuje zakłócenie regularnego lotu i spadanie parki ku ziemi. Na ziemię spadają tylko niektóre parki, które nie zdo- uchwytu przez matkę końca wynicowującego się aparatu kopulacyjnego • podobnie jak daje się to czasem zaobserwować w czasie zabijania matki ze znakiem parowania. Gdy matka z trutniem znajdzie się w odpowiedniej pozycji, zawadza ona znakiem o pole tarczowe wynicowującego się przedsionka, które jest pokryte włoskami skierowanymi względem matki do tyłu. W ten sposób matka uwalnia się od znaku, podobnie jak obserwujemy to po powrocie jej do ula, gdy zawadza tym znakiem o brzegi komórek plastra. Znak parowania albo przykleja się do przedsionka aparatu kopulacyjnego trutnia, albo do końca odwłoka matki. Prawdopodobnie też w wielu wypadkach spada na ziemię. Dalszy przebieg kopulacji może odbywać się podobnie jak wyżej opisaliśmy. Ponieważ jednak wiele matek wraca z lotu weselnego ze znakiem, utworzonym jedynie z grudki śluzu, należy przypuszczać, że nie u wszystkich trutni następuje w czasie kopulacji oddzielenie części bulwy aparatu kopulacyjnego.
Prawdopodobnie na skutek nie dość silnego i nieodpowiedniego uchwytu przez matkę końca wynicowującego się aparatu kopulacyjnego trutnia, nie następuje ściągnięcie wybrzuszeń powłoki bulwy z ostrych końców podłużnych płytek chitynowych. W rezultacie płytki te nie mogą wysunąć się z wnętrza wynicowującej się bulwy aparatu. W tym wypadku, po wytrysku nasienia, chitynowe płytki wywracają się wewnątrz matki wraz z resztą powłoki aparatu kopulacyjnego trutnia. Nie daje to w efekcie oddzielenia części bulwy od aparatu kopulacyjnego. Dalsze wynicowanie aparatu kopulacyjnego trutnia prowadzi do wypchnięcia całego aparatu z ciała matki. W komorze żądłowej matki pozostaje wtedy znak parowania jedynie w postaci grudki śluzu.
Ze znakiem parowania w postaci grudki śluzu przylatywały najczęściej matki, które miały bardzo napełnione jajowody lub bardzo rozwinięte jajniki. Czynnikami, które wpływają na przerwanie dalszych
strona 33kopulacji w czasie danego lotu mogą być poza innymi — stosunkowo duża suma objętości jajników i napełnionych nasieniem jajowodów, lub niemożność wyrzucenia poprzedniego znaku parowania.
STRESZCZENIE
W latach 1948—1957 zbadano około 2000 trutni i 800 matek. Zaobserwowano 1812 lotów godowych. Ściankę znaku parowania zbadano w 60 znakach utworzonych z części aparatu kopulacyjnego trutnia.
- Zbadano budowę i działanie organów rozrodczych trutnia. Wykazano, że rożki aparatu kopulacyjnego w czasie wynicowania wykonują ruchy jakgdyby okłębiające jakieś ciało. Nasienie wydobywa się z aparatu przed jego całkowitym wynicowaniem (ryc. 12).
- Na 365 stwierdzonych lotów weselnych, podczas których matki zostały unasienione, nie zauważono w chwili ich powrotu do ula w 6% wypadków żadnego znaku parowania, w 23% znak parowania był jedynie grudką śluzu, a w 71% był napełnioną śluzem częścią bulwy aparatu kopulacyjnego trutnia. Część ta jest niewynicowana i tkwi w komorze żądłowej i kopulacyjnej matki jak przedstawiono na ryc. 20 i 21.
- Powłoka okrywająca pozostawioną w matce część bulwy jest około 8 razy cieńsza od powłoki bulwy aparatu kopulacyjnego trutnia. Powłoka znaku jest jedynie wewnętrznym słojem schitynizowanego oskórka powłoki bulwy trutnia.
- Udało się na drodze eksperymentalnej uzyskać znak podobny do naturalnego znaku parowania, bez rozrywania aparatu kopulacyjnego trutnia. Zdołano również rozwarstwić oskórek powłoki bulwy trutnia w ten sposób, że na zewnątrz od utworzonego znaku pozostał jedynie wewnętrzny słój oskórka, podobnie jak ma to miejsce przy naturalnym znaku parowania.
- Na podstawie uzyskanych wyników opisano prawdopodobny przebieg kopulacji. W czasie kopulacji rożki aparatu kopulacyjnego trutnia przytrzymują odwłok matki z zewnątrz. Nasienie wydobywa się z aparatu kopulacyjnego przed jego całkowitym wynicowaniem. Część bulwy tworząca znak parowania nie jest jak uważano dotychczas urwaną częścią aparatu kopulacyjnego trutnia. Znak parowania nie urywa się, lecz wysuwa się z wnętrza nierozerwanego aparatu kopulacyjnego. W czasie wysuwania znaku odwarstwia się jedynie wewnętrzny słój oskórka powłoki bulwy aparatu kopulacyjnego, który pozostaje przy znaku parowania. Nierozerwany aparat kopulacyjny wynicowuje się dalej po oddzieleniu znaku parowania, powodując tym oddzielenie się parki.
LITERATURA
Alber M., Jordan R., Ruttner F. u. H., 1955: Von der Paarung der Honigbiene. Z. f. Bienenforsch., 3: 1—28
Arnhart L., 1935: Ein von der Bienenkönigin bei der Begattung gespisster Penis. Arch. f. Bkd., 16: 126—128.
Arnhart L., 1936a: Die Kloake der Drohne von Apis mellifica, L. Arch. f. Bkd., 17: 49—62.
Arnhart L., 1936b: Der ausgestülpte Penis der Drohne von Apis mellifica, L. Arch. f. Bkd., 17: 63—71.
Arnhart L., 1937: Der unausgestülpte Penis der Drobne von Apis mellifica, L. Arch. f. Bkd., 18: 1—23.
Arnhart L., 1938: Bau der Kloake der Königin von Apis mellifica und Bedeutung derselben für die Begattung. Arch. f. Bkd., 19: 49—69.
Arnhart L., 1939: Die Bedeutung der Deckschuppen der Drobne bei der Begattung der Königin (Apis mellifict L.). Arch. f. Bkd., 20: 169—171.
Berlepsch A., 1853. Eichst. Bienenztg., s.: 45. (z Leuckart’a 1873).
Berlepsch A., 1873: Die Biene und ihre Zucht mit beweglichen Waben w gegenden ohne Spötsommertracht. Quedlinburg u. Leipzig, Ernst 3 Aufl.
strona 34Betts A. D., 1939: The mating flight: à summary of present knowledge. Bee World, 20: 20—24, 33—36.
Bishop G. H., 1920a: Fertilization in the honeybee: I. The malesexual organs, their histological structure and physiological functioning. J. exp. Zool., 31: 225—256.
Bishop G. H., 1920b: Fertilization in the honeybee: II. Disposal of the sexual fluids in the organs of the female. J. exp. Zool., 31: 267—286.
Buttel-Reepen H., 1920: Eine Begattung der Königin im Sitzen? Arch. f. Bkd., 2: 175—179.
Ciesielski T., 1885: Przebieg zapładniania się matki. Bartnik Postępowy, 11: 244—249.
Crane E., 1954: The drone. Bee World, 35: 113.
Dönnoff E., 1856. Eichst. Bienenztg. (z Bee World, 1939, 20. 35).
Dzierzon J. Eichst. Bienenztg., 1845 s.: 120; 1853 s.: 96; 1856 s.: 242; 1861 s.: 96. (z Leuckart’a, 1873), i (z Bienenztg., Beck, Nörlingen, 1861).
Dzierzon J. 1861. w Schmid A. u. Kleine G.: Die Bienenztg. oder Die Dzierzon sche Theorie und Praxis der rationellen Bienenzucht. Nördlingen, C. H. Beck.
Dzierzon J. 1877: Fehlschlüsse bezüglich der Begattung der Königin. Eichstädt. Bienenztg., 33: 77—79.
Fyg W., 1944: Von der Begattung und Ausflügen der Bienenkönigin. Schweiz. Bienenztg., 70: 76—86.
Fyg W., 1952: The process of natural mating in the honeybee. Bee World, 33: 129—139.
Grabowski B., 1885: Zapładnianie się matek. Bartnik Postępowy, 11: 50—51.
Gundelach, 1842 Naturgesch.: 93 (z Leuckarta 1873).
Hubert F., 1789, 1791: Neue Beobachtungen an Bienen. H. 1 Von der Befruchtung der Bienen. Ausg. von Kleine. Einbeck, Ehlers, 1856.
Is’hak-Ogly S., 1936: Ueber das Eindringen des Spermts in die Samenblase der Bienenkönigin und einige hiermit zusammenhängende Probleme der Begattung bei den Honigbienen. Berlin, Inaugural Dissertation.
Janscha A., 1771: Abhandlung von Schwärmen der Biene. Wien, Weippl.
Jordan R., 1936. Der deutsche Imker, s.: 15—25. (z Bee World, 1939, 20: 36).
Klipstein E., 1867: Begattung der Bienenkönigin im Flug und hoch in der Luft oder auf der Erde im Sitz? Eichstädt. Bztg., 23: 201—203.
Koschevnikov G., 1891a: Zur Anatomie der männlichen Geschlechtsorgane der Honigbiene. Zool. Anz., 14: 393—396.
Kożewnikow G., 1891b: Strojenje organow razmnożenja trutnia. Izw. Impier. Obszcz. Lub. Jest. Antropol. i Entnogr. 67, Trudy Zool. Otd. Obszcz. T. 6, Dniew. Zool. Otd. obszcz. i Zool. Muz., 6: 1—11.
Köhler F., 1955: Untersuchungen zum Problem der künstlichen Begattung der Bienenkönigin (Apis mellifica L.). Würzburg, Inaugural-Dissertation.
Köhler F., 1956: Fehlleistung bei der Kopula als Ursache von Infertilität der Bienenkönigin (Apis mellifica L.) Naturwiss., 43: 542—543.
Kuriennoj N. M., 1953: O spariwanji matok s trutniami. Pczełowodstwo, 30/10/19—25.
Laidlaw H. H. Jr., 1944: Artificial insemination of the queen bee (Apis mellifera L.): Morphological basis and results. J. Morph., 74: 439—465.
Leuckart R., 1860: Zur Naturgeschichte der Bienen. 1 Das Begattungszeichen der Königin. Eichstädt. Bienenztg. 16: 229—31.
Leuckart R., 1867: Uber die Begattung der Bienenkönigin. Eichstädt. Bienenztg., 23: 249—254.
Leuckart R., 1873: Geschlechtlichkeit der dreierlei Bienenwesen. u. Weise der Befruchtung der Königin. W Berlepsch A.: Die Biene u.s.w. Quedlinburg, Ernst 3 Auflage: 12—32, u. 37—49.
Leuenberger F., 1936: Begattung der Bienenkönigin. Schweiz. Bienenztg., 59: 105.
Mann, 1892: Die Art und Weise der Befruchtung der Königin. Eichstädt. Bienenztg., 48: 171.
Michaelis G., 1900: Bau und Entwicklung des männlichen Begattungapparates der Honigbiene. Z. wiss. Zool., 67: 439—446.
Morison G. D., 1928: The muscles of the adult honey-bee. Part. II. Quart. J. Micr. Sci., 71: 563—651.
Pollmann A., 1869: Die Begattung der Königin. Eichstädt. Bienenztg., 25: 16—17.
Pösl, 1784: Wald und Gartenbienenzucht, München.
Reaumur M., 1740: Memoires pour servir a l’Histoire der Insectes. t. V.
Roberts W. C., 1944: Multiple mating of queen bees proved by progeny and flight tests. Glean Bee Cult., 72: 255—259.
Ruttner F., 1954: Merfache Begattung der Bienenkönigin. Zool. Anz., 153: 99—105.
Ruttner F., 1955: Einfache und mehrfache Paarung der Königin, erweisen aus der Nachkommenschaft. Bienenvater, 76: 5—10; 50—56; 123—127; 159—164; 198—202.
Ruttner F., 1956a: The mating of the Honeybee. Bee World, 37: 2—15; 23—24.
Ruttner F., 1956b: Zur frage der
strona 35Spermaübertragung bei der Bienenkönigin. Insect. Soc., 3: 351—359.
Ruttner S. u. F., 1953/4: Über die Paarung der Bienenkönigin. Osterr. Imker, 3: 206—211; 4: 3—4; 27—30.
Schneider-Orelli O., 1941: Über den Hochzeitsflug der Bienen und Hummeln. Schweiz. Bienenztg., 64: 577—580.
Shafer G. D., 1917: A study of the factors which govern mating in the honeybee. Michigan Agr. Col. Exp. Sta., Div. of Ent., Technical Blll., 34: 1—19.
Siebold H., 1854. Eichstädt. Bienenztg. 30: 230 (z Leuckart’a, 1873 s.: 42.
Snodgrass R. E., 1925: Anatomy and Physiology of the honeybee. New York — London, Mc.Graw-Hill Book Co. Inc.
Snodgrass R. E., 1933: Morphology of the insect abdomen. Part. II. The genital ducts and the ovipositor. Smithsonian Misc. Coll., 89: 148.
Snodgrass R. E., 1941: The male genitalia of Hymenoptera. Smithsonian. Misc. Coll., 99: 1—86.
Snodgrass R. E., 1942: The sceletomuscular mechanismus of the honeybee. Smithsonian Misc. Coll., 103: 1—120.
Snodgrass R. E., 1956 Anatomy of the honeybee. Ithaca, New York, Comst. Publ. Ass.
Spiller J., 1935: The marriage flight. Bee World, 16: 21—22; 128.
Spitzner, 1795: Kritischen Geschichte der Meinung von dem Geschlechte der Bienen. Leipzig.
Stahala J., 1877: Beitrag zur Lösung der Frage über den Begattungsakt der Königin. Eichstädt., 33: 22—23.
Swammerdamm J., 1738: Biblia naturae. Leyden.
Taber S. III, 1954: The frequency of multiple mating of queen honey bees. J. econ. Ent., 47: 995—998.
Triasko W. W., 1951: Priznaki osiemiennosti pczelinych matok. Pczełowodstwo, 28(11): 25—31.
Triasko W. W., 1955: Poliandria u miedonosnoj pczeły. Trudy Nauczno-Issled. Inst. Pczełow., Moskwa, Selhozgiz: 59—71.
Triasko W. W., 1956: Powtornoje i mnogokratnoje spariwanje matok. Pczełowodstwo, 33(1): 43—50.
Triasko W. W., 1957a: Szlejf pczelinoj matki i jewo priroda. Pczełowodstwo, 34(4): 22—28.
Triasko W. W., 1957b: O trutniach spariwszichsja s matkami. Pczełowodstwo, 34(12): 29—34.
Wolff O. J., 1876: Uber den Begattungsact der Biene. Eichstädt. Bienenztg., 32: 201—205.
Woyke J., 1950: Histologiczna budowa pęcherzyków nasiennych pszczoły domowej (Apis mellifica L.). Spraw. Pol. Akad. Um., 51(4): 234.
Woyke J., 1954: O przebiegu kopulacji u pszczół. Referat wygłoszony na kursie hodowli pszczół „Centrali Las” w Rogowie 27. I. 1954.
Woyke J., 1955a: Wpływ lotów na pobudliwość płciową trutni. Pszczelarstwo, 6(5): 1—3.
Woyke J., 1955b: Multiple mating of the honeybee queen (Apis mellifica L.) in onenuptial flight. Bull. Acad. Polon. Sci., Cl. II. 3(5): 175—180.
Woyke J., 1955c: Działanie narządów rozrodczych trutnia. Pszczelarstwo 6(7): 4—6.
Woyke J., 1955d: Kilkakrotna kopulacja matki pszczelej. Pszczelarstwo 6(8):
Woyke J., 1955e: Matka po powrocie z lotu godowego. Pszczelarstwo 6(12): 2—5.
Woyke J., 1956a: Zmiany anatomiczno-fizjologiczne a przebieg kilkakrotnej kopulacji matki. Pszczelarstwo 7(1): 1—4.
Woyke J., 1956b: Anatomo-physiological changes in queen-bees returning from mating flights, and the process of multiple mating. Bull. Acad. Sci. Polon., Cl. II, 4(3): 81—87.
Woyke J., 1956c: Anatomische Untersuchungen von Königinnen und Drohnen und die mehrfache Paarung ger Königinnen. XVI Intern. Bienenzüchter-Congress, Wien.
Woyke J., 1956d: Mnogokratnoje spariwanje pczelinoj matki wo wremja odnowo bracznowo wyleta. Pczełowodstwo 33(8): 32—36.
Woyke J., 1958a: Die Ursachen mehrmaliger Hochzeitsflüge der Königinnen. Pszczeln. Zesz. Nauk. 2.
Woyke J., 1958b: Przyczyny powtórnych wylotów matek pszczelich (po norwesku) Nord. Bitidskr. (w druku)
Woyke J., 1958c: Histologiczna budowa organów rozrodczych trutnia. Pozn. Tow. Przyj. Nauk. (w druku)
Woyke J. & Ruttner F., 1958: An anatomical study of the mating process in the honeybee. Bee World, 39: 3—18.
Zander E., 1900: Beiträge zur Morphologie der Männlichen Geschlechtanhängen der Hymenopteren. Zeischr. wiss. Zool., 70: 192—225.
Zander E., 1920: Wan werden die Drohnen begattungsfähig? Arch. f. Bkd., 2: 45—50.
Zander E., 1921: Das Leben der Biene. Stuttgard, E. Ulmer, 2 Aufl.
Zander E., 1922 (2 aufl.), 1946 (3 Aufl.): Der Bau der Biene. Stuttgard, E. Ulmer.
Zander E., Löschel u. Maier, 1916: Die Ausbildung des Geschlechtes bei der Honigbiene (Apis mellifica L.). Zeitschr. f. angew. Entom., 3. 1—20.
strona 36OPIS RYCIN
- Organa rozrodcze trutnia w wieku 21 dni (bulwa nienapełniona).
- Niewynicowany aparat kopulacyjny po napełnieniu bulwy.
- i 4. Częściowo wynicowany aparat kopulacyjny. Mechanizm działania rożków (widok z lewego boku).
- i 6. Częściowo wynicowany aparat kopulacyjny. Mechanizm działania rożków (widok z góry).
- Wnętrze częściowo wynicowanego aparatu kopulacyjnego.
- Częściowo wynicowany aparat kopulacyjny w przekroju.
- Aparat kopulacyjny podczas wynicowywania się szyjki.
- Aparat kopulacyjny po całkowitym wynicowaniu się szyjki, podczas wynicowywania się woreczka i otwierania tylnego otworu bulwy.
- Aparat kopulacyjny po wynicowaniu się woreczka bulwy.
- Aparat kopulacyjny w chwili wytrysku nasienia z bulwy.
- Aparat kopulacyjny po wytrysku nasienia i większej części śluzu.
- A. Przekrój przez bulwę po wytrysku nasienia i śluzu.
- Aparat kopulacyjny podczas wywracania się chitynowych płytek.
- Aparat kopulacyjny po wywróceniu się chitynowych płytek.
- i 17. Aparat kopulacyjny podczas wynicowywania się cienkościennej części bulwy.
- Całkowicie wynicowany aparat kopulacyjny.
- Całkowicie wynicowany aparat kopulacyjny po pęknięciu cienkościennej części bulwy.
- Organa rozrodcze matki bezpośrednio po kopulacji.
- Przekrój przez organa rozrodcze matki bezpośrednio po kopulacji.
- Znak parowania zakończony tępo (widok z ukosa z góry).
- Znak parowania zakończony wydłużoną nitką (widok z lewego boku).
- Pierścień utworzony z płytek chitynowych i łukowatej warstwy wzmacniającej po całkowitym odpreparowaniu powłoki bulwy.
- Przekrój poprzeczny przez częściowo wynicowany aparat kopulacyjny (jak na ryc. 4.) na wysokości szerokich płytek chitynowych.
- Przekrój poprzeczny przez częściowo wynicowany aparat kopulacyjny (jak na ryc. 4.) na wysokości środka grubościennej części bulwy.
- Przekrój poprzeczny przez znak parowania.
- Boczna ścianka bulwy aparatu kopulacyjnego trutnia.
- Boczna ścianka znaku parowania.
- Aparat kopulacyjny podczas wysuwania znaku godowego.
- Aparat kopulacyjny bezpośrednio po oddzieleniu znaku parowania.
- Całkowicie wynicowany aparat kopulacyjny po oddzieleniu znaku parowania.
OBJAŚNIENIA SKRÓTÓW
| Skrót | Znaczenie |
|---|---|
| B | Bulwa aparatu kopulacyjnego |
| B₁ | Grubościenna część bulwy |
| B₂ | Cienkościenna część bulwy |
| Bc | Komora kopulacyjna |
| Bp | Kieszeń kopulacyjna |
| Br | Przedsionek |
| C | Rożki |
| Cf | Szczelina po pęknięciu kleistej warstwy na rożkach |
| Ce | Szyjka |
| Ce₁ | Podłużny fałd szyjki |
| Ch | Przezroczysta schitynizowana warstwa oskórka powłoki aparatu kopulacyjnego |
| Ch₁ | Słój przezroczystej schitynizowanej warstwy oskórka powłoki leżący przy nabłonku |
| Ch₂ | Słój przezroczystej schitynizowanej warstwy oskórka powłoki leżący przy warstwie wzmacniającej |
| Skrót | Znaczenie |
|---|---|
| Chl | Podłużne płytki chtinowe |
| Chs | Szerokie płytki chitynowe |
| De | Kanał wytryskowy |
| Dm | Tylny nitkowaty koniec znaku parowania utworzony ze śluzu |
| Dr | Przewód zbiorniczka nasiennego |
| Fl | Wyrostek pierzaty |
| G | Garbki |
| Gm | Gruczoły śluzowe |
| K | Kleista warstwa na rożkach |
| Lp | Płytki parameralne |
| M | Powłoka znaku parowania |
| Mp | Błona podstawowa nabłonka |
| Ms | Znak parowania |
| Muc | Śluz |
| Nb | Nabłonek |
| Ob | Tylny otwór bulwy |
| Oc | Zewnętrzny otwór szyjki |
| Od | Otwór kanału wytryskowego (Gonoporus) |
| Ol | Jajowód boczny |
| Om | Jajowód środkowy |
| Ov | Jajnik |
| Pb | Pęknięty koniec bulwy |
| Pd | Tylny koniec kanału wytryskowego |
| Pv | Płytki walwalne |
| Qa | Pole kolczaste |
| R | Rynienka |
| Rp | Pole tarczowe |
| Rc | Szczeliny powłoki szyjki |
| Rs | Zbiorniczek nasienny |
| S | Woreczek bulwy |
| Se | Nasienie |
| Ss | Substancja spajająca |
| St | Żądło |
| T | Jądro |
| Ta | Pole trójkątne |
| Tvp | Poprzeczne fałdy szyjki |
| V | Pochwa |
| Vd | Nasieniowód |
| Vf | Fałd zastawkowy pochwy |
| Wz | Pęcherzyki nasienne |
| Wc | Wypukłości powłoki bulwy, które obejmują zaostrzone końce podłużnych płytek chitynowych |
| Wb | Wybrzuszenie powłoki bulwy, które okrywa podłużne płytki chitynowe |
| Vs | Warstwa wzmacniająca |
ПРОЦЕСС СПАРИВАНИЯ У ПЧЕЛ.
И. Войке
Резюме
От 1948 до 1957 года автор наблюдал 1812 брачных полетов, исследовал около 2000 трутней, 800 маток и наружные стенки 60 шлейфов, образованных частями копулятивных аппаратов трутней. Получено следующие результаты.
- Исследование строения половых органов трутня (Рис. 1,2) позволило установить следующие фазы их действия.
В начале частичного выворачивания копулятивного аппарата (Рис. 3) наружный, клейкий слой покрывающий рожки лопает и сдвигается с них. Рожки выгибаются принимая вид щипцов с изогнутыми концами.
В моменте выворачивания шейки наружный слой ее оболочки тоже лопается. Через шейку продвигается луковица (Рис. 11), в которую переходит сначала сперма, а потом слизь. Одновременно оболочка копулятивного аппарата отделяется от широких хитиновых пластинок (Рис. 10, Chs), обнажая их, но продолжает полностью покрывать продольные пластинки.
При выворачивани мешочка луковицы заднее её отверстие открывается (Рис. 10, Ob), что делает возможным извержение семени (Рис. 12 Se), выталкиваемого из луковицы наружу слизью и эпителием сорваным мышцами слизастых желез с их стенок. После прохождения луковицы через шейку нажим рожков ослабевает. Когда семеизвержение уже произошло и луковица уменьшилась (Рис. 13) слизастые железы вместе с семенными пузырьками выпадают из брошка в полость вестибюля (Рис. 13, Gm, Vs).
Вслед за этим наступает дальнейшее выворачивание луковицы, которое ведет к полному выворачиванию копулятивного аппарата (Рис. 18).
strona 38- На 365 брачных полетов, во время которых произошло достоверное осеменение, в 6% случаев у маток не было найдено никакого шлейфа, в 23% шлейф состоял только из слизи, а в 71% это была наполненная слизью часть луковицы трутня (Рис. 20). Хитиновые пластинки обращены к центральной стороне брюшка матки. Такой шлейф либо целиком помещается в камере жала, либо острые концы хитиновых пластинок вдвигаются в копулятивную сумку. Высовывающийся иногда из матки удлиненный, тонкий конец шлейфа (Рис. 25), это не семеизвергательный канал, а всего лишь нить слизи. Внутри шлейфа обычно нет ничего, кроме слизи, иногда лишь можно там найти эпителий слизистых желёз.
Автор нашел 4 шлейфа у которых задние концы были облиты семенем инных трутней.
- При шлейфе, образовавшемся из луковицы трутня, остается только часть оболочки луковицы. Слой прозрачной хитинизированой кутикулы, составляющий оболучку шлейфа (Рис. 29, Ch₂), около 4 раз тоньше, чем хитинизированый слой луковицы трутня (Рис. 28, Ch₂ + Ch₁). Оболочка шлейфа, в отличие от оболочки луковицы трутня, лишена снаружей эпителия (Рис. 28, Nb) и вследствие этого более чем 8 раз тоньше нерасслоенной оболочки луковицы (Рис. 28, Mp + Nb + Ch₁ + Ch₂). Следовательно оболочка шлейфа это всего лишь внутренний слой кутикулы луковицы.
- Автору удалось искуственным путем так расслоить оболочку луковицы, что надхитиновыми пластинками и укрепляющим слоем остался толко тонкий внутренний слой кутикулы, такойже, как на шлейфе. Соответствующим сжатием конца копулятивного аппарата удалось также довести до того, что невывернувшийся укрепляющий слой вместе с пластинками выдвигались из выворачивающегося копулятивного аппарата (Рис. 30). После отделения такого „искусственного шлейфа” (Рис. 31) неразорваный копулятивный аппарат выворачивался полностью (Рис. 32).
- На основании выше приведенных фактов автор пришел к следующим выводам о ходе копуляции. Во время спаривания изгибающиеся рожки копулятивного аппарата трутня охватывают конец брюшка матки. Выворачивающаяся шейка популятивного аппарата входит в камеру жала.
Луковица, в которую сперва поступает сперма а потом слизь, проходит через выворачивающуюся шейки, так что острые концы хитиновых пластинок будут находится на конце аппарата. Конец этот немного входит в копулятивную сумку матки. Во время выворачивания мешочка луковицы заднее её отверстие открывается (Рис. 10, Ob), после чего происходит извержение семени, выталкиваемого слизью и эпителием слизистых желез во влагалище и яйцеводы матки. Одновременно нажим рожков на брюшко матки ослабевает. Теперь уже продолжает выворачиваться только оболочка копулятивного аппарата. Она стягивается сперва с острых концов широких и продольных хитиновых пластинок (Рис. 30), а потом кутикула её начинает расслаиватся таким образом, что наружный слой остается при хитиновых пластинках и укрепляющем слое. В результате из выворачивающегося копулятивного аппарата выдвигается невывернутая его часть — шлейф (Рис. 31), который остается в камеру жала матки, слегка вдвигаясь и в копулятивную сумку (Рис. 20). Таким образом, ни отрывания луковицы, ни отрызания её маткой не происходит. В моменте выхода семени из луковицы, слизитые железы вместе с семенными пузырьками выпадают из брюшка
strona 39в полость вестибюля копулятного аппарата. Лишенный шлейфа, но неразорваный копулятивный аппарат выворачивается до конца (Рис. 32), что ведет к отодвиганию трутня от матки и разделению их.
Удаление шлейфа, оставленного предшественником, перед повторной копуляцией в течение тогоже полета, происходит при помощи задевания конца шлейфа о покрытую щетинками поверхность щитовидного поля копулятивного аппарата следующего трутня.
Если при спаривании не произошло выдвигания и отделения образующей шлейф части луковицы, матка возвращается в улей со шлейфом состоящим только из слизи.
ОБЪЯСНЕНИЕ РИСУНКОВ
- 1 — Половые органы трутня в возрасти 24 дней (луковица не наполнела).
- 2 — Невывернувшийся копулятивный аппарат с наполненной луковицей.
- 3—19 — Очередные стадии выворачивания копулятивного аппарата (Рис. 8 13 — продольн. разрез).
- 20 и 21 — Половые органы матки непосредственно после копуляции (Рис. 21 — продольн. разрез).
- 22 и 23 — Шлейф.
- 24 — Кольцо образованное дугообразным укрепляющим слоем и хитиновыми пластинками, после удаления оболочки луковицы.
- 25 и 26 — Поперечный разрез частично вывороченного (как на рис. 4) копулятивного аппарата.
- 27 — Поперечный разрез шлейфа.
- 28 — Разрез боковой стенки луковицы (фотомикрография в поляризованном свете).
- 30—31 — Разрез боковой стенки шлейфа (фотомикрография в поляризованном свете).
- 30—31 — Отделение шлейфа от копулятивного аппарата.
- 32 — Копулятивный аппарат полностью вывернувшийся после отделения шлейфа.
ОБОЗНАЧЕНИЯ НА РИСУНКАХ
В — луковица; B₁ — толстостенная часть луковицы; B₂ — тонкостенная часть луковицы; Bc — копулятивная сумка; Bp — Кармашки коп. сумки; Br — вестибюль; C — рожки; Cf — щель образованная лопнувшим, клейким слоем рожков; Ce — шейка; Ce₁ — продольная складка шейки; Ch — прозрачный хитинизированный слой кутикулы оболочки копулят. аппарата; Ch₁ — прозр. хит. слой кут. обол. прилегающий к эпителию; Ch₂ — прозр. хит. слой кут. обол. прилег. к укрепляющему слою; Chl — продольная хитиновая пластинка; Chs — широкая хитиновая пласт.; De — семеизвергательный канал; Dm — задн. нитковидный конец шлейфа образов. из слизи; Dr — задн. нитковидный конец шлейфа образов. из слизи; Dr — проток семеприемника; Fl — перистый придат.; G — бугорки; Gm — слизистые жел.; K — желтый клейкий слой на рожках; Lp — парамеральные пластинки; M — наружная оболочка шлейфа; Mp — базальная мембр.; Ms — шлейф; Мис — слизь; Nb — эпителий; Ob — отверстие ведущее из луковицы к шейке; Oc — заднее отверстие часточно вывороченного копул. ап.; Od — Отверстие семеизверг. канала; Ol — парный яйцевод; Om — непарный яйцев.; Ov — яичник; Pb — лопнувший конец луковицы; Pd — конец семеизверг. кан. соединяющийся с луков; Pv — вальварная пластинка; Rp — щитовидное поле (четырехугольное п.-Тряско 1957); Rc — щель в оболочке шейки; Rs — семеприемник; S — мешочек луковицы; Se — семя; Ss — студенистая скрепляющая субстанция; St — жало; T — семенник; Ta — треугольное
strona 40поле; Tvp — поперечные складки шейки; V — влагалище; Vd — семепровод; Vf — зубец влагалища; Vs — семенной пузырек; Wb — выпуклости оболочки лук. обнимающие острые концы продол. хит. пласт.; Wc — вздутие обол. луков. покрывающее прод. хит. пласт; Wz — укрепляющий слой.
THE PROCESS OF MATING IN THE HONEYBEE
J. Woyke
Summary
The author examined from 1948 till 1957 about 2000 drones and 800 queens. He observed 1812 flights of queens. He made a close anatomical and histological study of the wall of 60 mating signs which contained parts of the bulb of the endophallus.
The results are following:
- At first the author investigated the structure of the reproductive organs of drones (Fig. 1. and Fig. 2.). Then he stated the following function of them: During the evertion of the endophallus the cornusa turn upwards (Fig. 3, C) and sidewards (Fig. 5. C). Then the cornuxa bend downwards (Fig. 4, C) and their apices converge (Fig. 6). The cornua are made to bend by the increased pressure inside the organ and as a result of the bursting of the external viscous layer covering the cornua. The sac of the bulb of the endophallus (Fig. 9, S) and the ends of the chitinized plates enter the everting cervix (Fig. 9, Ce) dilating it and, in consequence, rupturing the thin outer layer of its wall, producing one or more long fissures through the hairy areas on each side of it (Fig. 12, Rc). After this part of the endophallus has passed through the narrow part of the cervix, the whole bulb pushes very quickly backwards inside the everting endophallus. The ends of the broad chitinized plates now protrude freely, externally (Fig. 10, Chs), but the pointed ends of the long chitinized plates are wrapped in two folds of the dorsal wall. After complete eversion of the middle portion, and the freeing of the pointed ends of the broad plates the dorsal wall of the sac of the bulb everts. This causes a considerable widening of the slit-like aperture of the endophallus (Fig 10, Ob), as a result, semen begins to flow out (Fig. 12, Se), from inside the bulb, being pushed out by the mucus and epithelium (Fig. 10, Nbl) which, almost as a whole, is torn off the mucous glands. The cornua weaken their embrace.
After ejaculation, the membranous part of the bulb, which has so far been much dilated (Fig. 11, B) collapses (Fig. 13, B1). It frequently happens that the two mucous glands and seminal vesicles are now pushed into the empty space within the base of the endophallus. (Fig. 13, Gm, Vs).
After the eversion of the chitinized plates (Fig. 15), the full eversion of the endophallus (Fig. 18) is completed quickly and comparatively easily.
- The author have examined to this time 365 mated queens on their return from the mating flight. In 71% of queens examined, the mating sign contained parts of the bulb of the endophallus; in 23% it consist only of mucus, and in 6% the queens returned with no signs revealed. It was not until they began to lay that they were found to have been inseminated. Position of the mating sign in the abdomen of the queen is shown on Fig. 20 and Fig. 21. In almost all
queens the mating sign is filled only with mucus of the drones mucous glands.
The posterior end of the mating sign either finishes off bluntly (Fig. 22) or with a short or long tread (Fig. 23, Dm). This tread consists exclusively of coagulated mucus and never contains the ejaculatory duct.
The outermost covering of the mating sign (Fig. 29 Ch₂) thus consist not of a transparent, yellow layer (Fig. 22, 23, M) which lies closely to the bow of the bulb and also covers partly the chitinized plates.
On transverse sections througt the mating sign (Fig. 27) one finds a chitinized layer (Fig 29, Ch₂) which is however 4 times thinner than the chitinized layer in the bulb of the endophallus (Fig. 28, Ch₂ + Ch₁). No epithelium is to be found in the covering of the mating sign (Fig. 29) as it is in the bulb wall (Fig. 28, Nb) So the covering of the mating sign (Fig. 29 Ch₂) is about 8 times thinner, than that in the intact bulb of endophallus (Fig. 29, Ch₂ + Ch₁ + Nb + Mp).
The outermost covering of the mating sign (Fig. 29 Ch₂) thus consist not of the whole bulb wall, but only of the innermost chitinized layer of the bulb covering (Fig. 28, Ch₂). This makes it clear that the mating sign is not produced by the endophallus’ teoring off transversely, but by the longitudinal separation of the wall layers: the mating sign is pushed out backwards from the endophallus.
- It proved possible, by dissecting off the layers of the bulb wall, to produce a preparation similar to the mating sign that is a preparation consisting of the chitinized plates and the bow of the bulb, covered with a thin chitinized layer. This last structure formed in the uneverted bulb of the endophallus the thin inner chitinized layer of the bulb wall.
The author investigated next the eversion of the endophallus in circumstances more like natural mating. An almost similar body to the natural mating sign can be experimentally detached from the endophallus if complete eversion of the endophallus is prevented. The chitinized plates and the bow of the bulb, are pushed uneverted out of the endophallus (Fig. 30) under the pressure of the continuing eversion the tube of the endophallus is therefore generally undamaged (Fig. 32).
- The author give an account of the procedure of mating as he believe it to take place.
At the commencement of the mating the base of the endophallus and the cornua are the first organs to be everted. As the cornua bend downwards, and their points become closer, they probably embracing the queens abdomen.
The bulb, which only becomes filled with sperm and mucus during the cornua are the first organs to be everted. As the cornua bend downwards, (Fig. 7), and is now pushed slowly thence trough the everting cervix. The partially everted penis is introduced into the actively opened sting chamber of the queen, the point of the chitinized plates-now forming the end of the endophallus (Fig. 10) — reaching into the bursa copulatrix. As eversion proceeds, the points of the lateral chitinized plates push out of the endophallus, and the sac of the bulb begins to evert (Fig. 10, S). As a result, an opening is formed (Fig. 10, Ob) which leads to the lumen of the bulb, and out of this opening the sperm is ejested (Fig. 12, Se) under strong pressure. The semen is quided by the lateral chitinized plates into the vagina (Fig. 21, V), and from there past the depressed valvefold into the oviduct (Fig. 21, Ol). The viscous macus which follows can only move slowly, and does not normally extend as far as the oviducts.
strona 42The further eversion of the endophallus encounters resistance in the narrow sting chamber. The endophallus pushes against the queen’s abdomen, and the bulb wall is everted under increasing pressure from within. Its contents — the chitinized plates filled with mucus, and the bow of the bulb — are pushed out of the wall uneverted (Fig. 30). The separation takes place along the surface of a preformed chitinized layer in the bulb wall. The endophallus separates undamaged from the mating sign (Fig. 31, Ms) and with it the separation of the queen and drone is accomplished. When the mating is finished, the endophallus is fully everted, but it has lost its chitinized plates and the bow of the bulb (Fig. 32).
As soon as the queen is again in the mating position with another drone, the mating sign becoms attached to the hairs of the shield-shaped area (basal area) of the everting endophallus, which point backwards. One may assume that the chitinized plates do not become detached from the endophallus in all drones and then only a lump of mucus remains in the queen’s sting chamber.
EXPLANATION OF FIGURES
1 Reproductive organs of 21 days old drone; 2 Noneverted endophallus after filling up the bulb; 3—19 Stages in the eversion of the endophallus; Fig. 8 and Fig. 13 A are in section; 20, 21. Reproductive organs of the queen immediately after mating flight; 22, 23 Mating sign; 24 Chitinized plates with the bulb, prepared from the endophallus; 25, 26 Cross-section through partly everted endophallus (as in Fig. 4); 27 Cross-section through mating sign; 28 Section through bulb wall of drone; 29 Section through wall of mating sign (Fig. 28 and Fig. 29 photomicrographs taken with polarizing microscope); 30, 31 Separation of the mating sign from the endophallus; 32 Endophallus after the separation of the mating sign.
KEY TO ABBREVATIONS
| Symbol | Meaning |
|---|---|
| B | bulb of endophallus, |
| B₁ | the part of the bulb which is strengthened by the chitinized plates and the bow of the bulb, |
| B₂ | thin-walled part of the bulb, |
| Bc | bursa copulatrix, |
| Bp | bursal pouch, |
| Br | vestibulum of the endophallus, |
| C | cornua, |
| Cf | fissure in the sticky surface layer of the cornua, |
| Ce | cervix, of endophallus, |
| Ce₁ | longitudinal fold of cervix, |
| Ch | chitinized layer of the bulb wall, |
| Ch₁ | chitinized layer next to the epithelium, |
| Ch₂ | chitinized layer next to the bow of the bulb, |
| Chl | long chitinized plates, |
| Chs | broad chitinized plates, |
| De | ejaculatory duct, |
| Dm | thread-like end of the mating sign (mucus), |
| Dr | spermathecal duct, |
| Fl | fimbriate lobe, |
| G | hill of vestibulum, |
| Gm | mucous glands, |
| K | sticky surface layer of the cornua, |
| Lp | lamina parameralis, |
| M | covering of the mating sign, |
| Mp | basal membrane, |
| Ms | mating sign, |
| Muc | mucus, |
| Nb | epithelium, |
| Ob | posterior opening of bulb, |
| Oc | external opening of the cervix, |
| Od | opening of the ejaculatory duct; gonopore, |
| Ol | lateral oviduct, |
| Om | median oviduct, |
| Ov | ovary, |
| Pb | burst of the bulb’s end, |
| Pd | posterior end of the ejaculatory duct, |
| Pv | penis valve, |
| Qa | spiny area, |
| R | gutter, |
| Rp | shield-shaped area; ventral basal area (plate), |
| Rc | fissures in the outer layer of the cervix, |
| Rs | spermatheca, |
| S | sack of the bulb, |
| Se | semen, |
| Ss | connective substance, |
| St | sting, |
| T | testis, |
| Ta | triangular area, |
| Tvp | areas on transverse corrugations of the cervix, |
| V | vagina, |
| Vd | vas deferens, |
| Vf | valve-fold, |
| Vs | vesicula seminalis, |
| Wb | doming of the bulb wall, surrounding the pointed ends of the long plates, |
| Wc | stretching of the bulb wall for the chitinized plates, |
| Wz | bow of the bulb; reinforcing layer. |
Errata — błędy druku znalezione podczas digitalizacji
- s. 2: „Leucart” → Leuckart
- s. 2: „Michalis” → Michaelis
- s. 5: „Bounin” → Bouin
- s. 5: „Heidenhein’a” → Heidenhain’a
- s. 5: „Erlich’a” → Ehrlich’a
- s. 5: „Dielafield’a” → Delafield’a
- s. 6: „(Chr)” → (Chl)
- s. 17: „to znaczny koniec” → to znaczy koniec
- s. 24: „otwiero” → otwiera
- s. 28: „zbieg ten” → zabieg ten
- s. 28: „aparattu” → aparatu
- s. 33, piśmiennictwo: „Drobne” → Drohne
- s. 33, piśmiennictwo: „mellifict” → mellifica
- s. 33, piśmiennictwo: „w gegenden” → in Gegenden
- s. 33, piśmiennictwo: „Spötsommertracht” → Spätsommertracht
- s. 34, piśmiennictwo: „Dönnoff” → Dönhoff
- s. 34, piśmiennictwo: „Hubert F.” → Huber F.
- s. 34, piśmiennictwo: „Entnogr.” → Etnogr.
- s. 34, piśmiennictwo: „Merfache” → Mehrfache
- s. 35, piśmiennictwo: „Blll.” → Bull.
- s. 35, piśmiennictwo: „onenuptial” → one nuptial
- s. 35, piśmiennictwo: „ger Königinnen” → der Königinnen
- s. 35, piśmiennictwo: „Zeischr.” → Zeitschr.
- s. 35, piśmiennictwo: „Wan werden” → Wann werden
- s. 35, piśmiennictwo: „Stuttgard” → Stuttgart
- s. 37, objaśnienia skrótów, pęcherzyki nasienne: „Wz” → Vs
- s. 37, objaśnienia skrótów, warstwa wzmacniająca: „Vs” → Wz
- s. 37, streszczenie: „При выворачивани мешочка” → При выворачивании мешочка
- s. 37, streszczenie: „слизастых” → слизистых
- s. 38, streszczenie: „инных” → иных
- s. 38, streszczenie: „оболучку” → оболочку
- s. 38, streszczenie: „снаружей” → снаружи
- s. 38, streszczenie: „толко” → только
- s. 38, streszczenie: „такойже” → такой же
- s. 38, streszczenie: „популятивного” → копулятивного
- s. 38, streszczenie: „расслаиватся” → расслаиваться
- s. 38, streszczenie: „слизитые” → слизистые
- s. 39, streszczenie: „копулятного” → копулятивного
- s. 39, streszczenie: „тогоже” → того же
- s. 39, objaśnienie rycin: „30—31 — Разрез боковой стенки шлейфа” → 29 — Разрез боковой стенки шлейфа
- s. 39, objaśnienia skrótów: „Мис” → Muc
- s. 39, objaśnienia skrótów: „часточно” → частично
- s. 40, streszczenie: „evertion” → eversion
- s. 40, streszczenie: „cornusa” → cornua
- s. 40, streszczenie: „cornuxa” → cornua
- s. 40, streszczenie: „Nbl” → Nb
- s. 41, streszczenie: „tread” → thread
- s. 41, streszczenie: „througt” → through
- s. 41, streszczenie: „teoring” → tearing
- s. 41, streszczenie: „trough the” → through the
- s. 41, streszczenie: „ejested” → ejected
- s. 41, streszczenie: „quided” → guided
- s. 41, streszczenie: „macus” → mucus
- s. 42, streszczenie: „becoms” → becomes
- s. 42, objaśnienia skrótów: „ABBREVATIONS” → ABBREVIATIONS